記事
細胞生物学におけるメチレンブルー:標的、モデル、測定された作用
メチレンブルーには、実験的な裏づけのある分子的作用がいくつかあります。しかし、経路名を並べるだけでは、各実験が実際に何を明らかにしたのかが見えなくなります。精製酵素の阻害、培養細胞の酸素消費の変化、マウス脳内のタンパク質シグナルの減少は、それぞれ異なる観察です。必要な対照も、裏づけられる結論も異なります。
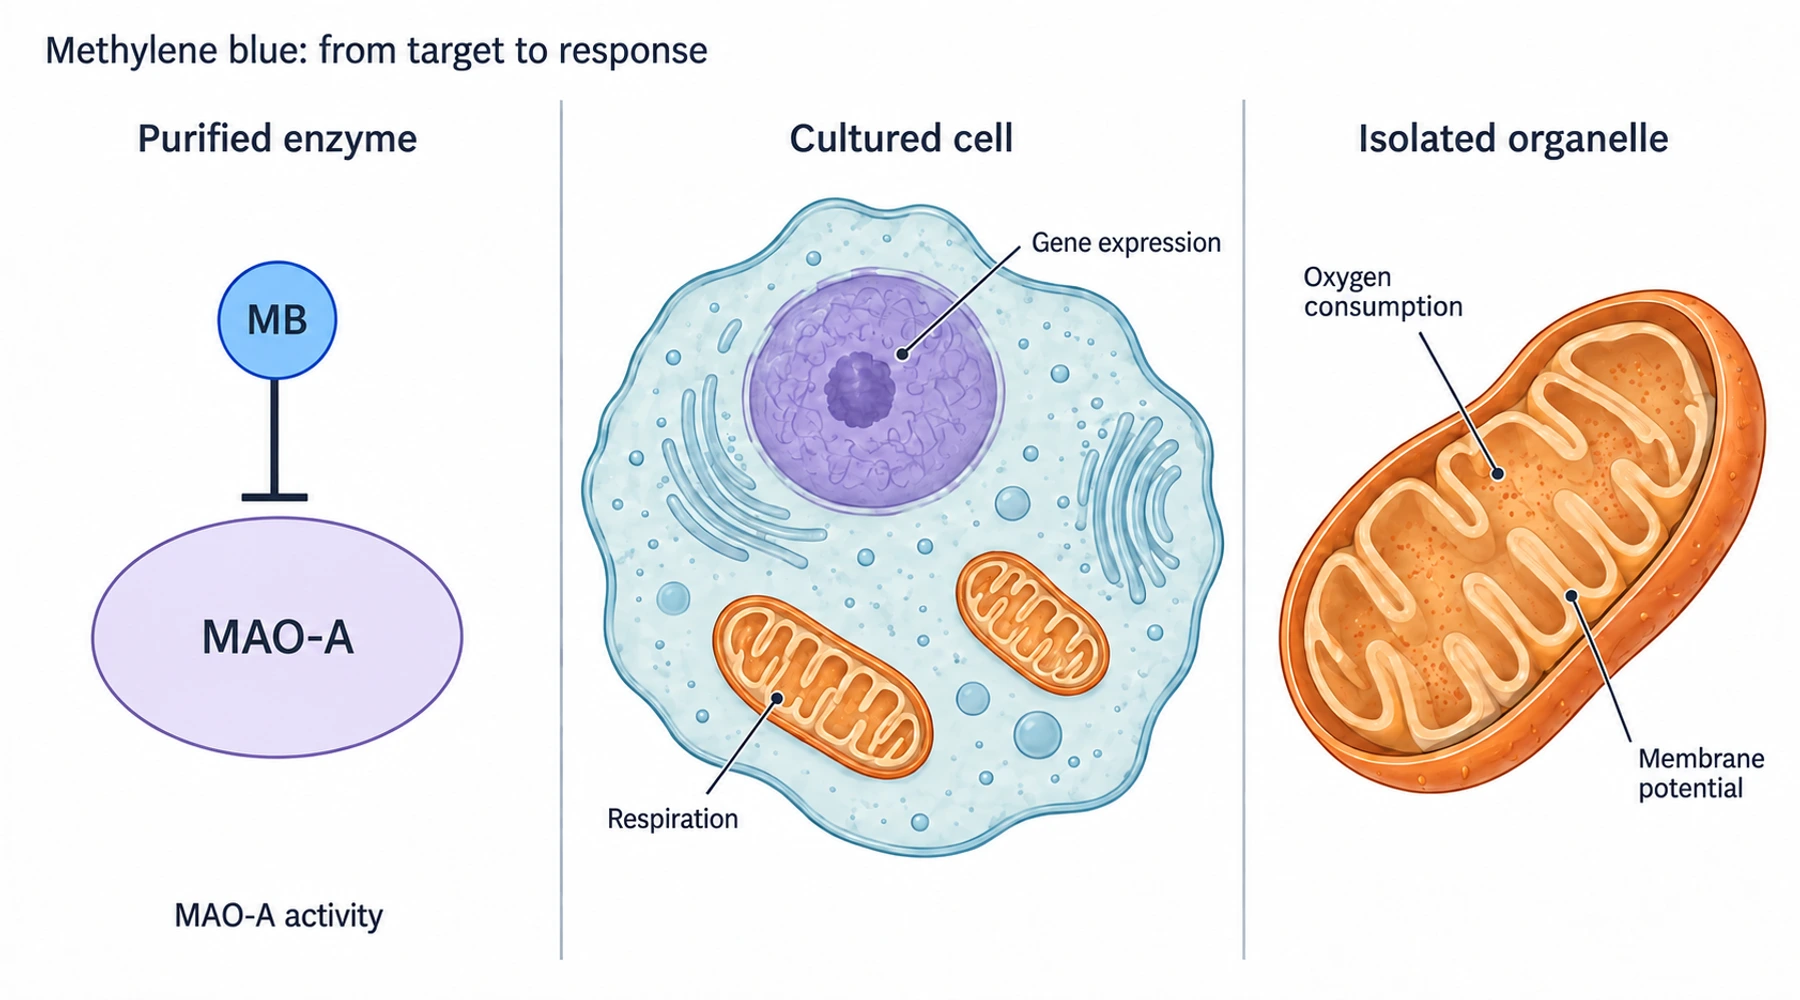
この研究索引では、それらの観察を過程、モデル、評価項目で整理します。添付のカバー画像は実験系の概念的なイラストであり、分子構造の決定結果でも顕微鏡画像でもありません。基礎となる化学については、酸化還元化学と生物学的メカニズムから読み始めてください。
まずエビデンスの区分を読む
生化学的エビデンスは、完全な細胞の外で、明確に定義されたタンパク質や反応を検証します。指定された条件下での阻害や電子移動を明らかにできます。細胞レベルのエビデンスには、取り込み、代謝、区画化、相互作用する経路が加わります。依存性のエビデンスは、想定される経路の構成要素を除くと応答が消失するかを問います。個体レベルのエビデンスは、循環、代謝、複数の組織を持つ動物での効果を測定します。
これらの区分は、単一の順位づけではなく、どの問いに答えたかを示します。ノックアウト実験は、メチレンブルーがその構成要素に直接結合することを示さずに、必要なシグナル伝達の構成要素を特定できます。動物の行動に関する結果は、その分子的原因を特定せずに表現型を明らかにできます。
リンク付き分子標的マップ
各行を横に読んでください。最初の列は経路の解説へリンクし、研究へのリンクは実験的な根拠を示します。これは作用機序の主要な根拠を選んでまとめたマップであり、報告されたすべての細胞作用を網羅する一覧ではありません。
| 過程または標的 | 実験系とエビデンスの種類 | 測定した評価項目と解釈 |
|---|---|---|
| MAOと神経伝達物質の代謝 | 精製した組換えヒトMAO-AおよびMAO-B;生化学的速度論 | Ramsayらは酵素阻害を測定しました。MAO-Aの感受性ははるかに高く、気分や脳内セロトニンに関する評価項目は測定していません。 |
| NOSとcGMPシグナル伝達 | 精製NO合成酵素、内皮細胞、単離血管;生化学的および機能的アッセイ | Mayerらは、シトルリン生成、cGMP産生、弛緩を区別しました。NOS阻害を、選択的な可溶性グアニル酸シクラーゼ阻害と言い換えることはできません。 |
| ミトコンドリア電子伝達 | 形質転換したマウス海馬HT-22細胞と生化学反応;細胞レベルおよび生化学的エビデンス | Wenらは、酸素消費、酸性化、ATP、酸化還元に依存する電子移動を測定しました。これらの評価項目は別々に測定されました。 |
| 複合体IIIの迂回 | 呼吸阻害薬を用いた単離マウス脳ミトコンドリア;細胞小器官の実験 | 複合体IIIに対するアンチマイシン研究では、複合体I阻害後には部分的な回復があったにもかかわらず、複合体IIIの遮断後には呼吸と膜電位を回復できないことが示されました。 |
| Nrf2とミトコンドリア生合成 | 野生型およびNrf2ノックアウトのマウス胚性線維芽細胞;遺伝的依存性 | Stackらは抗酸化応答の転写産物を測定しました。ノックアウト細胞で誘導が消失したことは、Nrf2への依存性を裏づけますが、Nrf2への直接結合を裏づけるものではありません。 |
| オートファジーとmTORシグナル伝達 | ヒトタウを発現するチャイニーズハムスター卵巣細胞;レポーターおよびノックダウン実験 | Congdonらは、LC3レポーター、キナーゼのリン酸化、タウを調べました。BECN1のノックダウンによって、観察されていたタウ低下応答が消失しました。 |
| タウの処理とタンパク質除去 | 精製Hsp70アッセイとヒトタウを発現するHeLa細胞;生化学的および細胞レベルのエビデンス | Jinwalらは、ATPアーゼ阻害とプロテアソーム依存的なタウ減少を関連づけました。これは、精製タウが線維を形成するのを防ぐこととは異なります。 |
| タウ凝縮体の形成 | 再構成した組換えタウの液滴;別途実施したSH-SY5Y細胞毒性アッセイ | 2023年の相分離研究は、in vitroで液滴形成とゲル化を測定した後、インキュベートしたタウ種に曝露した細胞の生存率をMTTで評価しました。細胞アッセイでは、細胞内の凝縮体形成を測定していません。 |
ダウンロード可能な分子標的マップは、一次研究へのリンク、エビデンスの区分、主要な実験条件を、再利用できるテキスト文書に保持しています。
一次実験が区別していること
酵素阻害にはアッセイの条件がある
精製ヒト酵素の研究では、強結合阻害の解析を用いて、MAO-Aの阻害定数をKi = 27 ± 3 nMと報告しました。明記されたアッセイ条件下でのMAO-AのIC50は164 ± 8 nMでした。KiとIC50は互換ではありません。後者は、半阻害を測定する際の酵素と基質の条件に依存します。いずれの数値も、ヒトへの投与量や予測される組織濃度ではありません。
NOSの比較も同様に有益です。精製NO合成酵素は、30 μMのメチレンブルーで、測定されたシトルリン生成活性をすべて失いました。同じ論文で、S-ニトロソグルタチオンにより刺激されたグアニル酸シクラーゼを半阻害するには、約60 μMが必要でした。したがって、細胞のcGMPが低下したことだけで、作用部位をグアニル酸シクラーゼと特定することはできません。それを活性化するNOの産生低下を反映している可能性があります。
呼吸はATP産生と同義ではない
HT-22の研究では、研究者はオリゴマイシン、FCCP、ロテノンを使って呼吸の挙動を調べました。また、ATPも独立して測定しました。比較に用いたFCCPは、細胞内ATPを低下させながら酸素消費を増加させました。これは、酸素消費の測定曲線だけではATPに関する問いに答えられない理由を直接示しています。酸素消費とATPの違いに関する専用ガイドは、この区別を扱います。
その後の単離マウス脳ミトコンドリアの研究では、ピルビン酸やリンゴ酸などの基質を使用しました。1 μMのメチレンブルーは、ロテノンで阻害された呼吸を部分的に回復させましたが、アンチマイシン処理後にはほとんど効果がありませんでした。この結果は、色素が常に複合体IとIIIの両方を迂回するという普遍的な主張に限界を示します。提案される電子移動の模式図には、動物種、ミトコンドリア標本、基質、阻害薬、アッセイ条件を併記する必要があります。
遺伝子応答は標的への直接作用の証拠ではない
Nrf2の実験では、0.1、1、10 μMのメチレンブルーが野生型マウス胚性線維芽細胞でHO1転写産物を増加させましたが、Nrf2ノックアウト細胞では応答がありませんでした。この遺伝的比較は、処理した細胞だけで発現を測定するよりも、経路への依存性について多くの情報を与えます。
それでも、起点となる分子的な出来事は未解明のままです。Nrf2依存的転写、ミトコンドリア生合成、NAD+/NADHバランスの変化、AMPKシグナル伝達は、実験でつながりが示されるまで、別々の項目として扱うべきです。ミトコンドリアに関する遺伝子1つの発現が増えても、細胞が機能するミトコンドリアをより多く作ったことを示すわけではありません。
タンパク質の処理には複数の経路がある
オートファジーの研究では、タウを発現するCHO細胞を0.01 μMのメチレンブルーに6時間曝露し、溶媒対照と比較しました。赤色と緑色のタンデムLC3レポーターは、初期の小胞と酸性化したオートリソソームを区別するのに役立ちました。バフィロマイシンは、フラックスを阻害する比較条件として用いられました。BECN1のノックダウンによって、オートファジー機構がタウの減少に寄与するかを検証しました。これらの実験は、LC3陽性の点状構造を単に数えるだけの方法を超えています。点状構造は、形成が増えた場合にも、処理が遅れた場合にも蓄積するためです。
これに対し、Hsp70の研究では、異なる細胞系でATPアーゼ活性とプロテアソーム依存的なタウ除去を調べました。2023年の凝縮体実験は、タウ分子がどのように液滴を形成し、物質としての性質を変えるかという、別の問いを検証しました。総タウ、リン酸化タウ、不溶性線維、ゲル状凝縮体は、それぞれ異なる評価項目です。これらを1つの「抗タウ」作用の主張にまとめると、検証しているメカニズムが失われます。
区別できていない点に基づいて次の実験を選ぶ
新しい論文を読む際は、経路図を解釈する前に、正確な化学種、濃度、曝露時間、溶媒、照明条件、モデル、比較対象、評価項目を抽出してください。アッセイを主張に合わせます。呼吸は呼吸フラックス、ATPは利用可能なエネルギー、酵素速度論は阻害、遺伝的摂動は経路への依存性を評価するものです。
用量反応ガイドは、濃度によって方向が変わる応答を扱います。抗酸化作用と酸化促進作用のガイドは、酸化還元サイクルを、普遍的な「抗酸化剤」という区分から切り離します。細胞への侵入と膜分配は、培地中の名目濃度が自動的に細胞内曝露を意味しない理由を説明し、アズールB研究は、関連する色素種を互換として扱うべきでない理由を説明します。
より広い文献では、カスパーゼ活性、フェロトーシス、炎症シグナル伝達、細胞老化も扱われています。評価項目が細胞死、サイトカインシグナル伝達、持続的な増殖停止である場合、これらは有用な参照先です。ただし、すべての分子的作用が同じ細胞で同じ濃度において起こることの追加証拠ではありません。このマップは、実験的エビデンスをたどる道筋を示すものであり、それらの実験を臨床的利益に置き換えるものではありません。