
Artikull
Bluja e metilenit në biologjinë qelizore: shënjestrat, modelet dhe efektet e matura
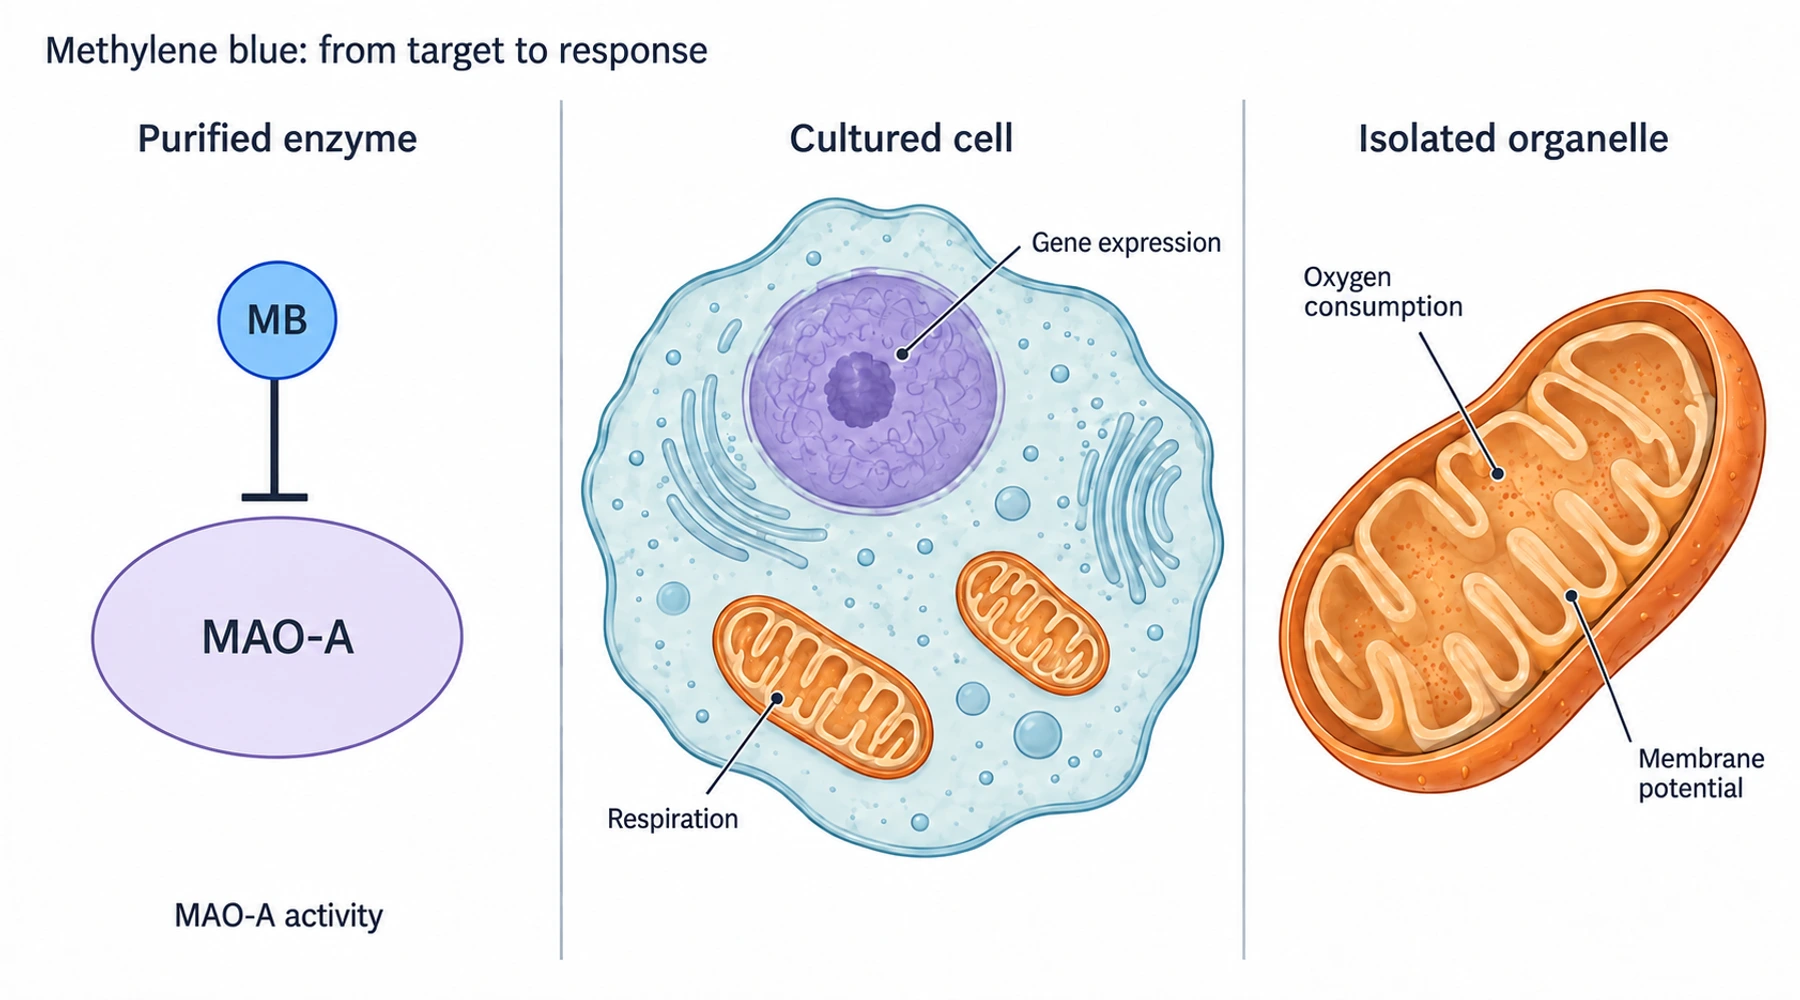
Bluja e metilenit ka disa veprime molekulare të mbështetura nga eksperimentet, por një listë emrash rrugësh biologjike e errëson atë që ka vërtetuar realisht secili eksperiment. Frenimi i një enzime të pastruar, ndryshimi i konsumit të oksigjenit në qeliza të kultivuara dhe pakësimi i një sinjali proteinik në trurin e miut janë vëzhgime të ndryshme. Ato kërkojnë kontrolle të ndryshme dhe mbështesin përfundime të ndryshme.
Ky indeks kërkimor i organizon këto vëzhgime sipas procesit, modelit dhe parametrit të matur. Imazhi shoqërues i kopertinës është një ilustrim konceptual i sistemeve eksperimentale, jo një përcaktim i strukturës molekulare apo një imazh mikroskopik. Për kiminë bazë, filloni me kiminë redoks dhe mekanizmat biologjikë.
Lexoni fillimisht etiketat e provave
Provat biokimike testojnë një proteinë ose reaksion të përcaktuar jashtë një qelize të paprekur. Ato mund të vërtetojnë frenimin ose transferimin e elektroneve në kushte të caktuara. Provat qelizore shtojnë përthithjen, metabolizmin, ndarjen në kompartimente dhe rrugët që ndërveprojnë. Provat e varësisë shqyrtojnë nëse heqja e një përbërësi të propozuar të rrugës biologjike e zhduk përgjigjen. Provat në nivel organizmi matin efektet te një kafshë me qarkullim, metabolizëm dhe inde të shumta.
Këto etiketa përshkruajnë pyetjen që merr përgjigje, jo një renditje të vetme. Një eksperiment me çaktivizim gjenik mund të identifikojë një përbërës të domosdoshëm të sinjalizimit pa treguar se bluja e metilenit lidhet drejtpërdrejt me atë përbërës. Një rezultat mbi sjelljen e kafshëve mund të vërtetojë një fenotip pa identifikuar shkakun e tij molekular.
Harta me lidhje e shënjestrave molekulare
Lexoni çdo rresht horizontalisht. Kolona e parë lidhet me diskutimin e rrugës biologjike; lidhja e studimit identifikon bazën eksperimentale. Kjo është një hartë e përzgjedhur e pikave kryesore mekanistike, jo një katalog shterues i çdo efekti qelizor të raportuar.
| Procesi ose shënjestra | Sistemi eksperimental dhe lloji i provave | Parametri i matur dhe interpretimi |
|---|---|---|
| MAO dhe metabolizmi i neurotransmetuesve | MAO-A dhe MAO-B njerëzore rekombinante të pastruara; kinetikë biokimike | Ramsay dhe kolegët matën frenimin e enzimave. MAO-A ishte shumë më e ndjeshme; nuk u mat ndonjë parametër i humorit apo i serotoninës në tru. |
| NOS dhe sinjalizimi cGMP | Sintazë e NO e pastruar, qeliza endoteliale, enë gjaku të izoluara; analiza biokimike dhe funksionale | Mayer dhe kolegët dalluan formimin e citrulinës, prodhimin e cGMP dhe relaksimin. Frenimi i NOS nuk mund të riemërtohet si frenim selektiv i guanilat ciklazës së tretshme. |
| Transporti mitokondrial i elektroneve | Qeliza të transformuara HT-22 të hipokampusit të miut dhe reaksione biokimike; prova qelizore dhe biokimike | Wen dhe kolegët matën konsumin e oksigjenit, acidifikimin, ATP dhe transferimin e elektroneve të varur nga redoksi. Këta parametra u analizuan veçmas. |
| Anashkalimi i kompleksit III | Mitokondri të izoluara nga truri i miut me frenues të frymëmarrjes; eksperiment në organele | Një studim i kompleksit III me antimicinë konstatoi se frymëmarrja dhe potenciali membranor nuk u rivendosën pas atij bllokimi, megjithëse pati rikthim të pjesshëm pas frenimit të kompleksit I. |
| Nrf2 dhe biogjeneza mitokondriale | Fibroblaste embrionale miu të tipit të egër dhe me Nrf2 të çaktivizuar; varësi gjenetike | Stack dhe kolegët matën transkriptet e përgjigjes antioksiduese. Humbja e induksionit në qelizat me gjenin të çaktivizuar mbështet varësinë nga Nrf2, jo lidhjen e drejtpërdrejtë me Nrf2. |
| Autofagjia dhe sinjalizimi mTOR | Qeliza të vezores së lloj brejtësi kinez që shprehin tau njerëzore; eksperimente me raportues dhe ulje të shprehjes gjenike | Congdon dhe kolegët shqyrtuan raportuesit LC3, fosforilimin e kinazave dhe tau. Ulja e shprehjes së BECN1 zhduku përgjigjen e vërejtur të pakësimit të tau. |
| Përpunimi i tau dhe eliminimi i proteinave | Analizë me Hsp70 të pastruar dhe qeliza HeLa që shprehin tau njerëzore; prova biokimike dhe qelizore | Jinwal dhe kolegët lidhën frenimin e ATPazës me pakësimin e tau të varur nga proteazoma. Kjo ndryshon nga parandalimi i bashkimit të tau të pastruar në fibrile. |
| Formimi i kondensateve të tau | Pika të rikrijuara nga tau rekombinante; analizë e veçantë e citotoksicitetit në SH-SY5Y | Një studim i ndarjes së fazave i vitit 2023 mati formimin e pikave dhe xhelifikimin in vitro, më pas vlerësoi viabilitetin qelizor me MTT pas ekspozimit ndaj formave të inkubuara të tau. Analiza qelizore nuk mati formimin e kondensateve brenda qelizave. |
Harta e shkarkueshme e shënjestrave molekulare ruan lidhjet e studimeve parësore, etiketat e provave dhe kushtet kryesore eksperimentale në një dokument teksti të ripërdorshëm.
Çfarë dallojnë eksperimentet parësore
Frenimi i enzimave ka një kontekst analize
Studimi me enzima njerëzore të pastruara raportoi një konstante frenimi të MAO-A, Ki = 27 ± 3 nM, duke përdorur analizën e lidhjes së fortë. IC50 për MAO-A ishte 164 ± 8 nM në kushtet e deklaruara të analizës. Ki dhe IC50 nuk janë të këmbyeshme: kjo e fundit varet nga kushtet e enzimës dhe substratit që përdoren për të matur frenimin në gjysmë. Asnjëri numër nuk është një dozë për njeriun apo një përqendrim i parashikuar në inde.
Krahasimi për NOS është po aq informues. Sintaza e NO e pastruar humbi të gjithë aktivitetin e matur të formimit të citrulinës në 30 μM blu metileni. Në të njëjtin punim, guanilat ciklaza e stimuluar nga S-nitrozoglutationi kërkoi afërsisht 60 μM për frenim në gjysmë. Prandaj, një ulje e cGMP qelizore nuk e lokalizon vetvetiu efektin te guanilat ciklaza. Ajo mund të pasqyrojë prodhim të reduktuar të NO që e aktivizon atë.
Frymëmarrja nuk është sinonim i prodhimit të ATP
Në studimin HT-22, studiuesit përdorën oligomicinë, FCCP dhe rotenon për të shqyrtuar sjelljen e frymëmarrjes. Ata matën gjithashtu ATP në mënyrë të pavarur. FCCP, që përdorën si krahasues, rriti konsumin e oksigjenit ndërsa uli ATP qelizore, duke ilustruar drejtpërdrejt pse një regjistrim i konsumit të oksigjenit nuk mund t'i përgjigjet i vetëm pyetjes për ATP. Udhëzuesi i posaçëm për konsumin e oksigjenit kundrejt ATP shtjellon këtë dallim.
Punime të mëvonshme me mitokondri të izoluara nga truri i miut përdorën substrate që përfshinin piruvatin dhe malatin. Në 1 μM, bluja e metilenit rivendosi pjesërisht frymëmarrjen e frenuar nga rotenoni, por pati pak ndikim pas antimicinës. Ky rezultat kufizon pretendimin universal se ngjyruesi anashkalon gjithmonë të dy komplekset I dhe III. Lloji biologjik, preparati mitokondrial, substratet, frenuesit dhe kushtet e analizës duhen paraqitur krahas çdo diagrami të propozuar të transferimit të elektroneve.
Një përgjigje gjenike nuk provon ndërveprimin e drejtpërdrejtë me shënjestrën
Në eksperimentin Nrf2, 0.1, 1 dhe 10 μM blu metileni rritën transkriptin HO1 në fibroblaste embrionale miu të tipit të egër, ndërsa përgjigjja mungonte në qelizat me Nrf2 të çaktivizuar. Ky krahasim gjenetik jep më shumë informacion për varësinë nga rruga biologjike sesa matja e shprehjes vetëm në qelizat e trajtuara.
Megjithatë, ai e lë të pazgjidhur ngjarjen molekulare nismëtare. Transkriptimi i varur nga Nrf2, biogjeneza mitokondriale, ndryshimi i ekuilibrit NAD+/NADH dhe sinjalizimi AMPK duhet të mbeten zëra të veçantë derisa një eksperiment t'i lidhë ato. Rritja e shprehjes së një gjeni mitokondrial nuk vërteton se qelizat prodhuan më shumë mitokondri funksionale.
Eliminimi i proteinave ka disa rrugë
Studimi i autofagjisë ekspozoi qeliza CHO që shprehin tau ndaj 0.01 μM blu metileni për gjashtë orë dhe i krahasoi me qeliza të trajtuara vetëm me mjetin bartës. Një raportues LC3 tandem i kuq/gjelbër ndihmoi në dallimin e vezikulave të fazave të hershme nga autolizozomet e acidifikuara; bafilomicina siguroi një kusht krahasues që pengonte fluksin. Ulja e shprehjes së BECN1 testoi nëse aparati i autofagjisë kontribuonte në pakësimin e tau. Këto eksperimente shkojnë përtej numërimit të thjeshtë të pikave pozitive për LC3, të cilat mund të grumbullohen si kur formimi rritet, ashtu edhe kur eliminimi ngadalësohet.
Në të kundërt, studimi Hsp70 shqyrtoi aktivitetin e ATPazës dhe eliminimin e tau të varur nga proteazoma në një sistem tjetër qelizor. Eksperimentet e kondensateve të vitit 2023 trajtuan një pyetje tjetër: si molekulat e tau formojnë pika dhe ndryshojnë vetitë e tyre materiale. Tau totale, tau e fosforiluar, fibrilet e patretshme dhe kondensatet e ngjashme me xhelin janë parametra të ndryshëm. Bashkimi i tyre në një pretendim të vetëm “anti-tau” fshin mekanizmin që po testohet.
Zgjidhni eksperimentin e radhës sipas dallimit që mungon
Për një punim të ri, nxirrni identitetin e saktë kimik, përqendrimin, kohëzgjatjen e ekspozimit, tretësin, kushtet e ndriçimit, modelin, krahasuesin dhe parametrin e matur përpara se të interpretoni diagramin e rrugës së tij biologjike. Përshtateni analizën me pretendimin: frymëmarrjen me fluksin respirator, ATP me disponueshmërinë e energjisë, kinetikën enzimatike me frenimin dhe ndërhyrjen gjenetike me varësinë nga rruga biologjike.
Udhëzuesi dozë–përgjigje trajton përgjigjet që ndryshojnë drejtim në përqendrime të ndryshme. Udhëzuesi për veprimin antioksidues dhe prooksidues e ndan ciklimin redoks nga një etiketim universal si antioksidues. Hyrja në qelizë dhe shpërndarja në membrana shpjegon pse përqendrimi nominal në mjedisin e kultivimit nuk është automatikisht ekspozimi brenda qelizës; kërkimi mbi Azure B shpjegon pse format kimike të ngjyruesve të afërt nuk duhen trajtuar si të këmbyeshme.
Literatura më e gjerë mbulon gjithashtu aktivitetin e kaspazave, ferroptozën, sinjalizimin inflamator dhe seneshencën qelizore. Këto janë drejtime të dobishme kur parametri i matur është vdekja qelizore, sinjalizimi i citokinave ose ndalimi i qëndrueshëm i rritjes. Ato nuk janë prova shtesë se çdo veprim molekular ndodh në të njëjtën qelizë në të njëjtin përqendrim. Kjo hartë përcakton rrugë përmes provave eksperimentale; ajo nuk i shndërron këto eksperimente në përfitime klinike.