
Стаття
Метиленовий синій у клітинній біології: мішені, моделі та виміряні ефекти
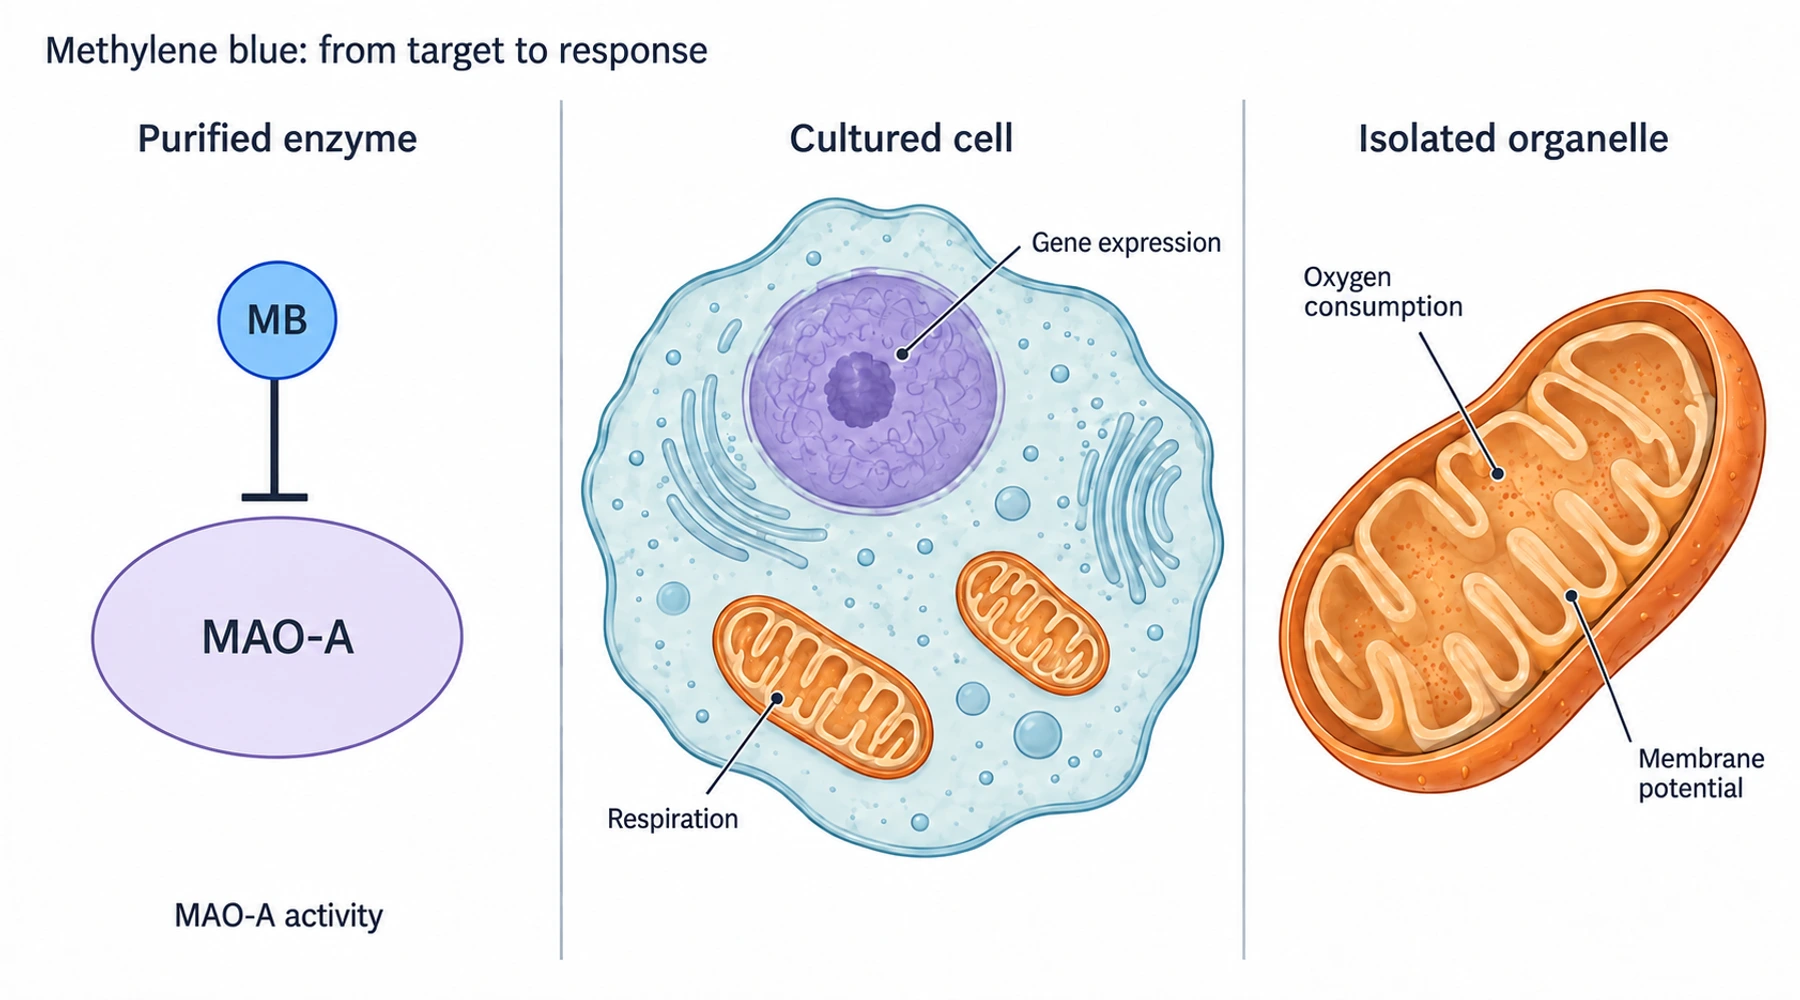
Метиленовий синій має кілька експериментально підтверджених молекулярних дій, але перелік назв сигнальних шляхів приховує те, що насправді встановив кожен експеримент. Пригнічення очищеного ферменту, зміна споживання кисню в культивованих клітинах і зниження сигналу білка в мозку миші — це різні спостереження. Вони потребують різних контрольних умов і дають підстави для різних висновків.
Цей дослідницький покажчик упорядковує такі спостереження за процесом, моделлю та кінцевим показником. Ілюстрація на обкладинці концептуально зображає експериментальні системи, а не результати визначення молекулярної структури чи мікроскопічне зображення. Щоб ознайомитися з хімічними основами, почніть із матеріалу про окисно-відновну хімію та біологічні механізми.
Спочатку ознайомтеся з позначеннями типів доказів
Біохімічні докази ґрунтуються на дослідженні визначеного білка або реакції поза цілою клітиною. Вони можуть встановити пригнічення або перенесення електронів за заданих умов. Клітинні докази враховують поглинання, метаболізм, компартменталізацію та взаємодію шляхів. Докази залежності дають відповідь на запитання, чи усуває вилучення запропонованого компонента шляху спостережувану відповідь. Докази на рівні організму вимірюють ефекти у тварини з кровообігом, метаболізмом і багатьма тканинами.
Ці позначення описують запитання, на яке отримано відповідь, а не єдину шкалу оцінювання. Експеримент із нокаутом може виявити необхідний компонент сигнального шляху, не показуючи, що метиленовий синій безпосередньо зв’язується з ним. Поведінковий результат у тварини може встановити фенотип, не визначаючи його молекулярної причини.
Карта молекулярних мішеней із посиланнями
Читайте кожен рядок зліва направо. Перший стовпець містить посилання на обговорення відповідного шляху; посилання на дослідження вказує на експериментальну основу. Це вибіркова карта ключових механістичних даних, а не вичерпний каталог усіх описаних клітинних ефектів.
| Процес або мішень | Експериментальна система й тип доказів | Виміряний кінцевий показник та інтерпретація |
|---|---|---|
| MAO та метаболізм нейромедіаторів | Очищені рекомбінантні людські MAO-A та MAO-B; біохімічна кінетика | Рамсей та колеги вимірювали пригнічення ферментів. MAO-A була значно чутливішою; показники настрою або серотоніну в мозку не вимірювали. |
| NOS і сигналізація cGMP | Очищена NO-синтаза, ендотеліальні клітини, ізольовані судини; біохімічні та функціональні аналізи | Маєр та колеги окремо досліджували утворення цитруліну, продукування cGMP і розслаблення. Пригнічення NOS не можна називати селективним пригніченням розчинної гуанілатциклази. |
| Мітохондріальне перенесення електронів | Трансформовані клітини гіпокампа миші HT-22 та біохімічні реакції; клітинні й біохімічні докази | Вень та колеги вимірювали споживання кисню, закислення, ATP та окисно-відновно-залежне перенесення електронів. Ці показники досліджували окремо. |
| Обхід комплексу III | Ізольовані мітохондрії мозку миші з інгібіторами дихання; експеримент на органелах | У дослідженні комплексу III з антиміцином виявили, що після такої блокади дихання та мембранний потенціал не відновлювалися, попри часткове відновлення після пригнічення комплексу I. |
| Nrf2 та мітохондріальний біогенез | Ембріональні фібробласти миші дикого типу та з нокаутом Nrf2; генетична залежність | Стек та колеги вимірювали транскрипти антиоксидантної відповіді. Відсутність індукції в клітинах із нокаутом підтверджує залежність від Nrf2, а не пряме зв’язування з Nrf2. |
| Автофагія та сигналізація mTOR | Клітини яєчника китайського хом’яка, що експресують людський тау-білок; репортерні експерименти й експерименти з нокдауном | Конгдон та колеги досліджували репортери LC3, фосфорилювання кіназ і тау-білок. Нокдаун BECN1 усував спостережуване зниження рівня тау-білка. |
| Регуляція тау-білка та видалення білків | Аналіз очищеного Hsp70 і клітини HeLa, що експресують людський тау-білок; біохімічні та клітинні докази | Джінвал та колеги пов’язали пригнічення АТФазної активності з протеасомозалежним зниженням рівня тау-білка. Це відрізняється від запобігання утворенню фібрил очищеного тау-білка. |
| Утворення конденсатів тау-білка | Відтворені краплі рекомбінантного тау-білка; окремий аналіз цитотоксичності на клітинах SH-SY5Y | У дослідженні фазового розділення 2023 року вимірювали утворення крапель і гелеутворення in vitro, а потім оцінювали життєздатність клітин методом MTT після впливу інкубованих форм тау-білка. Клітинний аналіз не вимірював утворення внутрішньоклітинних конденсатів. |
Карта молекулярних мішеней для завантаження зберігає посилання на первинні дослідження, позначення типів доказів і ключові експериментальні умови в текстовому документі для повторного використання.
Що розмежовують первинні експерименти
Пригнічення ферментів залежить від умов аналізу
У дослідженні очищених людських ферментів повідомлено константу пригнічення MAO-A Ki = 27 ± 3 nM, визначену за допомогою аналізу міцного зв’язування. Значення IC50 для MAO-A становило 164 ± 8 nM за вказаних умов аналізу. Ki та IC50 не є взаємозамінними: останній показник залежить від умов щодо ферменту й субстрату, за яких вимірювали напівмаксимальне пригнічення. Жодне з цих чисел не є дозою для людини чи прогнозованою концентрацією в тканині.
Порівняння з NOS так само інформативне. Очищена NO-синтаза втрачала всю вимірювану активність з утворення цитруліну за концентрації метиленового синього 30 μM. У тій самій статті для напівмаксимального пригнічення гуанілатциклази, стимульованої S-нітрозоглутатіоном, була потрібна концентрація приблизно 60 μM. Отже, зниження клітинного cGMP саме по собі не вказує, що ефект виникає на рівні гуанілатциклази. Воно може відображати зменшення продукування NO, який її активує.
Дихання не є синонімом продукування ATP
У дослідженні HT-22 науковці використовували олігоміцин, FCCP і ротенон для вивчення характеристик дихання. Вони також незалежно вимірювали ATP. Використаний для порівняння FCCP збільшував споживання кисню, водночас знижуючи рівень клітинного ATP. Це безпосередньо показує, чому крива споживання кисню сама по собі не дає відповіді на запитання про ATP. Окремий матеріал про споживання кисню та ATP розглядає цю відмінність.
У пізнішій роботі з ізольованими мітохондріями мозку миші використовували субстрати, зокрема піруват і малат. За концентрації 1 μM метиленовий синій частково відновлював дихання, пригнічене ротеноном, але майже не впливав на нього після антиміцину. Цей результат обмежує універсальне твердження, що барвник завжди обходить обидва комплекси — I та III. Вид організму, мітохондріальний препарат, субстрати, інгібітори та умови аналізу слід зазначати поруч із будь-якою запропонованою схемою перенесення електронів.
Генна відповідь не доводить прямої взаємодії з мішенню
В експерименті з Nrf2 метиленовий синій у концентраціях 0.1, 1 та 10 μM підвищував рівень транскрипту HO1 в ембріональних фібробластах миші дикого типу, тоді як у клітинах із нокаутом Nrf2 ця відповідь була відсутня. Таке генетичне порівняння дає більше інформації про залежність від шляху, ніж вимірювання експресії лише в оброблених клітинах.
Проте початкова молекулярна подія залишається невизначеною. Nrf2-залежну транскрипцію, мітохондріальний біогенез, змінений баланс NAD+/NADH і сигналізацію AMPK слід розглядати окремо, доки експеримент не встановить зв’язок між ними. Підвищення експресії одного мітохондріального гена не доводить, що клітини утворили більше функціональних мітохондрій.
Видалення білків відбувається кількома шляхами
У дослідженні автофагії клітини CHO, що експресують тау-білок, піддавали впливу метиленового синього в концентрації 0.01 μM протягом шести годин і порівнювали з клітинами, обробленими лише розчинником-носієм. Тандемний червоно-зелений репортер LC3 допомагав відрізняти везикули ранніх стадій від закислених автолізосом; бафіломіцин створював контрастну умову, що порушувала автофагічний потік. Нокдаун BECN1 давав змогу перевірити, чи сприяє апарат автофагії зниженню рівня тау-білка. Ці експерименти виходять за межі простого підрахунку LC3-позитивних точок, які можуть накопичуватися як у разі посиленого утворення, так і в разі уповільнення видалення.
Натомість у дослідженні Hsp70 вивчали АТФазну активність і протеасомозалежне видалення тау-білка в іншій клітинній системі. Експерименти з конденсатами 2023 року стосувалися іншого запитання: як молекули тау-білка утворюють краплі та змінюють свої матеріальні властивості. Загальний тау-білок, фосфорильований тау-білок, нерозчинні фібрили та гелеподібні конденсати — це різні кінцеві показники. Об’єднання їх в одне твердження про «дію проти тау-білка» стирає відмінності між досліджуваними механізмами.
Обирайте наступний експеримент за розмежуванням, якого бракує
Опрацьовуючи нову статтю, випишіть точну хімічну ідентичність речовини, концентрацію, тривалість впливу, розчинник, умови освітлення, модель, об’єкт порівняння та кінцевий показник, перш ніж інтерпретувати її схему сигнальних шляхів. Узгоджуйте аналіз із твердженням: дихання — з дихальним потоком, ATP — з доступністю енергії, кінетику ферментів — із пригніченням, а генетичне втручання — із залежністю від шляху.
Матеріал про залежність відповіді від дози розглядає відповіді, напрямок яких змінюється залежно від концентрації. Матеріал про антиоксидантну та прооксидантну дію відокремлює окисно-відновне циклювання від універсального означення «антиоксидант». Матеріал про проникнення в клітину та розподіл у мембранах пояснює, чому номінальна концентрація в середовищі не означає автоматично відповідний внутрішньоклітинний вплив; дослідження Azure B пояснюють, чому споріднені форми барвника не слід вважати взаємозамінними.
Ширша наукова література також охоплює активність каспаз, фероптоз, запальну сигналізацію та клітинне старіння. Це корисні напрями, коли кінцевим показником є загибель клітин, цитокінова сигналізація або стійка зупинка росту. Вони не є додатковим доказом того, що кожна молекулярна дія відбувається в тій самій клітині за тієї самої концентрації. Ця карта прокладає маршрути через експериментальні докази; вона не перетворює ці експерименти на клінічну користь.