
Artikkeli
Metyleenisininen solubiologiassa: kohteet, mallit ja mitatut vaikutukset
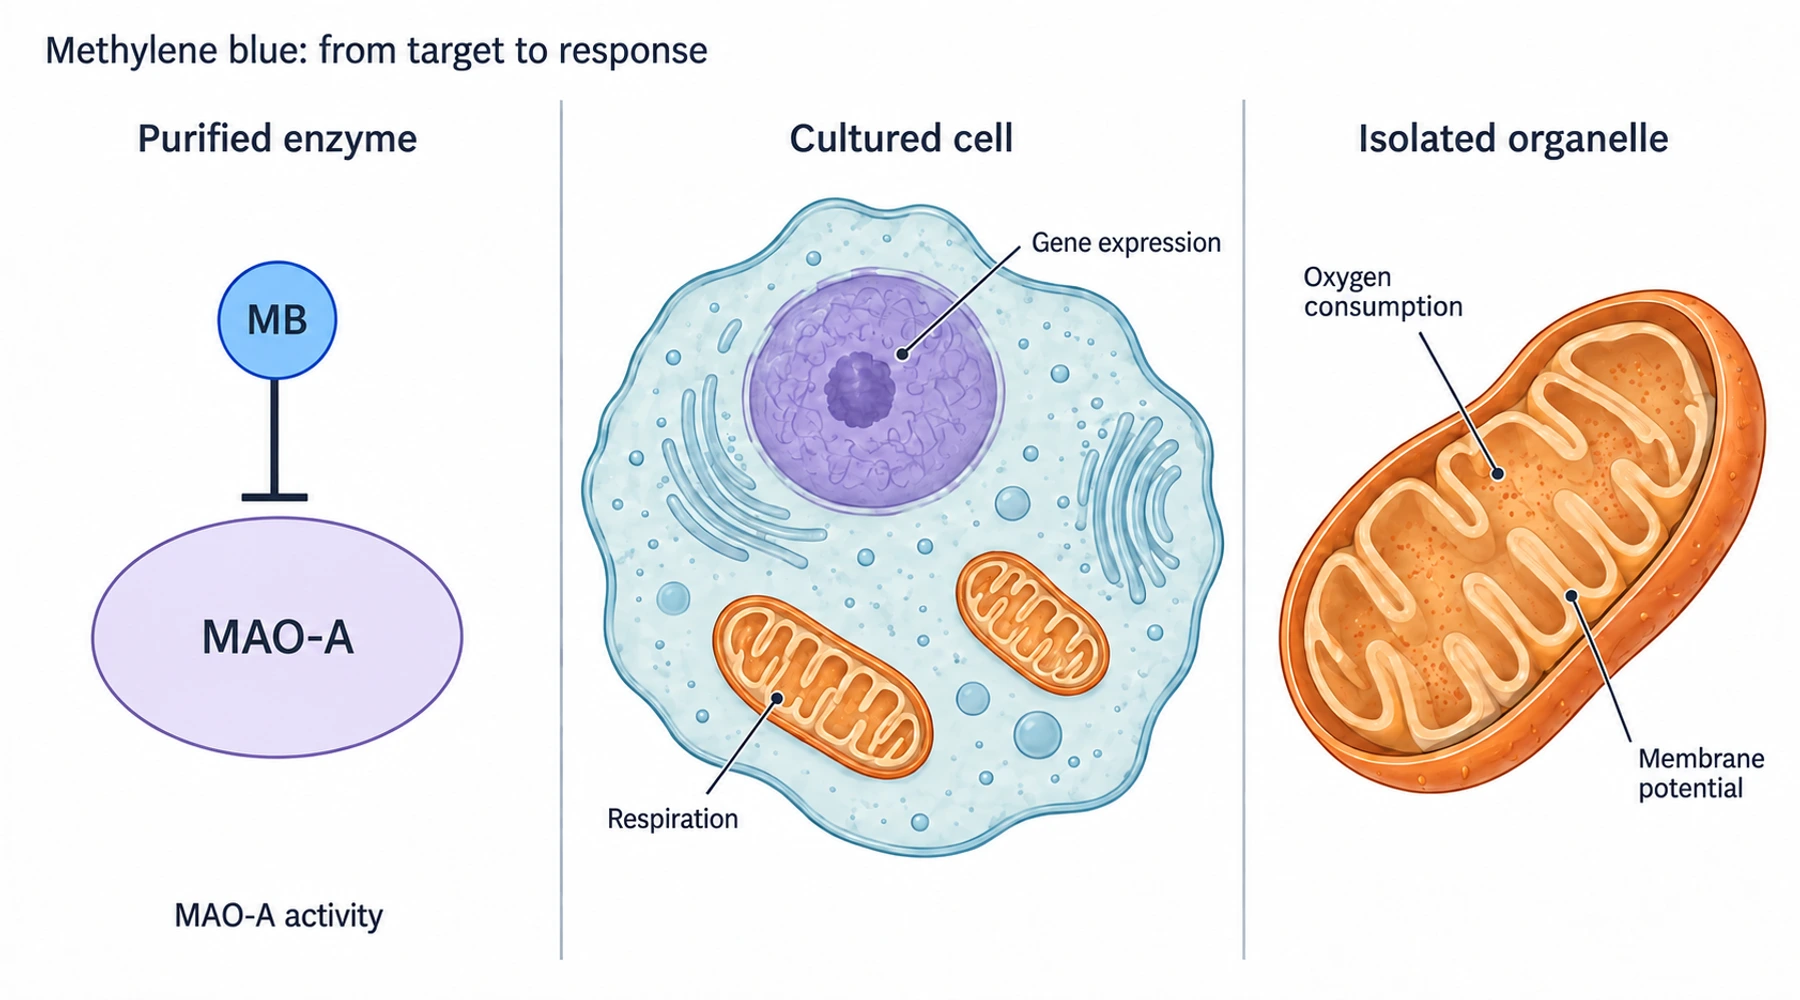
Metyleenisinisellä on useita kokeellisesti osoitettuja molekyylitason vaikutuksia, mutta pelkkä signalointireittien nimiluettelo hämärtää sitä, mitä kukin koe todella osoitti. Puhdistetun entsyymin estäminen, hapenkulutuksen muuttuminen viljellyissä soluissa ja proteiinisignaalin väheneminen hiiren aivoissa ovat erilaisia havaintoja. Ne edellyttävät erilaisia kontrolleja ja tukevat erilaisia päätelmiä.
Tämä tutkimushakemisto järjestää havainnot prosessin, mallin ja päätemuuttujan mukaan. Kansikuva on käsitteellinen havainnollistus koejärjestelmistä, ei molekyylirakenteen määritystulos tai mikroskooppikuva. Taustalla olevaan kemiaan tutustumisen voi aloittaa artikkelista redox-kemia ja biologiset mekanismit.
Lue ensin näytön tyyppien kuvaukset
Biokemiallinen näyttö perustuu määritellyn proteiinin tai reaktion tutkimiseen ehjän solun ulkopuolella. Se voi osoittaa estovaikutuksen tai elektroninsiirron tietyissä olosuhteissa. Solutason näyttö tuo mukaan soluunoton, aineenvaihdunnan, solunsisäisen jakautumisen ja vuorovaikuttavat reitit. Riippuvuusnäyttö selvittää, häviääkö vaste, kun ehdotetun reitin jokin osatekijä poistetaan. Eliötason näyttö mittaa vaikutuksia eläimessä, jossa on verenkierto, aineenvaihdunta ja useita kudoksia.
Nämä luokitukset kuvaavat kysymystä, johon koe vastaa, eivät yhtä yhteistä paremmuusjärjestystä. Geenin poistokoe voi tunnistaa välttämättömän signaloinnin osatekijän osoittamatta, että metyleenisininen sitoutuu siihen suoraan. Eläimen käyttäytymistä koskeva tulos voi osoittaa fenotyypin tunnistamatta sen molekyylitason syytä.
Linkitetty molekyylikohteiden kartta
Lue jokainen rivi vaakasuunnassa. Ensimmäinen sarake linkittää reittiä käsittelevään artikkeliin; tutkimuslinkki osoittaa kokeellisen perustan. Tämä on valikoitu kartta mekanismien keskeisistä kiinnekohdista, ei kattava luettelo kaikista raportoiduista soluvaikutuksista.
| Prosessi tai kohde | Koejärjestelmä ja näytön tyyppi | Mitattu päätemuuttuja ja tulkinta |
|---|---|---|
| MAO ja välittäjäaineiden aineenvaihdunta | Puhdistetut ihmisen rekombinantit MAO-A ja MAO-B; biokemiallinen kinetiikka | Ramsay ja työtoverit mittasivat entsyymien estymistä. MAO-A oli huomattavasti herkempi; mielialaa tai aivojen serotoniinia koskevaa päätemuuttujaa ei mitattu. |
| NOS ja cGMP-signalointi | Puhdistettu NO-syntaasi, endoteelisolut, eristetyt verisuonet; biokemialliset ja toiminnalliset määritykset | Mayer ja työtoverit erottivat toisistaan sitrulliinin muodostumisen, cGMP:n tuotannon ja relaksaation. NOS:n estymistä ei voi nimetä uudelleen liukoisen guanylaattisyklaasin selektiiviseksi estymiseksi. |
| Mitokondrioiden elektroninsiirto | Transformoidut hiiren hippokampuksen HT-22-solut ja biokemialliset reaktiot; solutason ja biokemiallinen näyttö | Wen ja työtoverit mittasivat hapenkulutusta, happamoitumista, ATP:tä ja redox-riippuvaista elektroninsiirtoa. Nämä päätemuuttujat määritettiin erikseen. |
| Kompleksin III ohittaminen | Eristetyt hiiren aivojen mitokondriot ja hengitysketjun estäjät; soluelinkoe | Kompleksia III ja antimysiiniä koskevassa tutkimuksessa hengitys ja kalvopotentiaali eivät palautuneet tämän eston jälkeen, vaikka kompleksin I eston jälkeen havaittiin osittaista palautumista. |
| Nrf2 ja mitokondrioiden biogeneesi | Villityypin ja Nrf2-poistogeeniset hiiren alkion fibroblastit; geneettinen riippuvuus | Stack ja työtoverit mittasivat antioksidanttivasteen transkripteja. Induktion puuttuminen poistogeenisissä soluissa tukee Nrf2-riippuvuutta, ei suoraa sitoutumista Nrf2:een. |
| Autofagia ja mTOR-signalointi | Ihmisen tau-proteiinia ilmentävät kiinanhamsterin munasarjasolut; reportteri- ja geenin vaimennuskokeet | Congdon ja työtoverit tutkivat LC3-reporttereita, kinaasien fosforylaatiota ja tau-proteiinia. BECN1:n vaimentaminen poisti havaitun tau-pitoisuutta alentavan vasteen. |
| Tau-proteiinin käsittely ja proteiinien poistuminen | Puhdistetun Hsp70:n määritys ja ihmisen tau-proteiinia ilmentävät HeLa-solut; biokemiallinen ja solutason näyttö | Jinwal ja työtoverit yhdistivät ATPaasin estymisen proteasomista riippuvaiseen tau-proteiinin vähenemiseen. Tämä eroaa puhdistetun tau-proteiinin fibrillien muodostumisen estämisestä. |
| Tau-kondensaattien muodostuminen | Rekombinantista tau-proteiinista koottu pisarajärjestelmä; erillinen SH-SY5Y-solujen sytotoksisuusmääritys | Vuoden 2023 faasierottumistutkimuksessa mitattiin pisaroiden muodostumista ja geeliytymistä in vitro, minkä jälkeen solujen elinkykyä arvioitiin MTT-menetelmällä inkuboiduille tau-muodoille altistamisen jälkeen. Solumääritys ei mitannut solunsisäisten kondensaattien muodostumista. |
Ladattava molekyylikohteiden kartta säilyttää alkuperäistutkimusten linkit, näytön tyyppien luokitukset ja keskeiset koeolosuhteet uudelleenkäytettävässä tekstiasiakirjassa.
Mitä alkuperäiskokeet erottavat toisistaan
Entsyymin estyminen riippuu määrityksen olosuhteista
Puhdistettua ihmisen entsyymiä koskevassa tutkimuksessa raportoitiin MAO-A:n inhibitiovakio Ki = 27 ± 3 nM tiukan sitoutumisen analyysin perusteella. MAO-A:n IC50 oli 164 ± 8 nM ilmoitetuissa määritysolosuhteissa. Ki ja IC50 eivät ole keskenään vaihdettavissa: jälkimmäinen riippuu entsyymi- ja substraattiolosuhteista, joissa puolittainen esto mitataan. Kumpikaan luku ei ole ihmiselle tarkoitettu annos tai ennustettu kudospitoisuus.
NOS-vertailu on samalla tavoin valaiseva. Puhdistettu NO-syntaasi menetti kaiken mitatun sitrulliinia muodostavan aktiivisuutensa metyleenisinisen pitoisuudella 30 μM. Samassa artikkelissa S-nitrosoglutationin stimuloiman guanylaattisyklaasin puolittainen esto edellytti noin 60 μM:n pitoisuutta. Solun cGMP:n väheneminen ei siis yksinään paikanna vaikutusta guanylaattisyklaasiin. Se voi kuvastaa sitä aktivoivan NO:n tuotannon vähenemistä.
Hengitys ei ole ATP-tuotannon synonyymi
HT-22-tutkimuksessa tutkijat käyttivät oligomysiiniä, FCCP:tä ja rotenonia hengitystoiminnan tutkimiseen. He mittasivat myös ATP:n erikseen. Vertailuaine FCCP lisäsi hapenkulutusta samalla kun solujen ATP väheni, mikä osoitti suoraan, miksi hapenkulutuskäyrä ei yksin vastaa ATP:tä koskevaan kysymykseen. Erillinen opas hapenkulutuksen ja ATP:n eroista tarkastelee tätä eroa.
Myöhemmässä tutkimuksessa eristetyillä hiiren aivojen mitokondrioilla käytettiin substraatteina muun muassa pyruvaattia ja malaattia. Pitoisuudella 1 μM metyleenisininen palautti osittain rotenonin estämää hengitystä, mutta vaikutti vain vähän antimysiinin jälkeen. Tulos rajaa yleistä väitettä, jonka mukaan väriaine ohittaisi aina sekä kompleksin I että kompleksin III. Laji, mitokondriovalmiste, substraatit, estäjät ja määritysolosuhteet kuuluvat jokaisen ehdotetun elektroninsiirtokaavion yhteyteen.
Geenivaste ei todista suoraa vaikutusta kohteeseen
Nrf2-kokeessa metyleenisinisen pitoisuudet 0.1, 1 ja 10 μM lisäsivät HO1-transkriptin määrää villityypin hiiren alkion fibroblasteissa, kun taas vaste puuttui Nrf2-poistogeenisistä soluista. Tämä geneettinen vertailu kertoo reittiriippuvuudesta enemmän kuin pelkkä ilmentymisen mittaaminen käsitellyissä soluissa.
Vasteen käynnistävä molekyylitason tapahtuma jää silti ratkaisematta. Nrf2-riippuvainen transkriptio, mitokondrioiden biogeneesi, muuttunut NAD+/NADH-tasapaino ja AMPK-signalointi on pidettävä erillisinä kohtina, kunnes koe yhdistää ne toisiinsa. Yhden mitokondriogeenin lisääntynyt ilmentyminen ei osoita, että solut olisivat tuottaneet enemmän toimivia mitokondrioita.
Proteiinien poistamiseen on useita reittejä
Autofagiatutkimuksessa tau-proteiinia ilmentäviä CHO-soluja altistettiin metyleenisinisen pitoisuudelle 0.01 μM kuuden tunnin ajan ja verrattiin pelkällä liuottimella käsiteltyihin soluihin. Punaisen ja vihreän signaalin yhdistävä tandem-LC3-reportteri auttoi erottamaan varhaisemmat rakkulat happamoituneista autolysosomeista; bafilomysiini tarjosi vertailuolosuhteen, joka heikensi autofagiavirtaa. BECN1:n vaimentamisella testattiin, osallistuiko autofagiakoneisto tau-proteiinin vähenemiseen. Nämä kokeet menevät pidemmälle kuin pelkkä LC3-positiivisten pisteiden laskeminen: pisteitä voi kertyä sekä muodostumisen lisääntyessä että poistumisen hidastuessa.
Hsp70-tutkimuksessa puolestaan tarkasteltiin ATPaasiaktiivisuutta ja proteasomista riippuvaista tau-proteiinin poistumista eri solujärjestelmässä. Vuoden 2023 kondensaattikokeissa esitettiin toinen kysymys: miten tau-molekyylit muodostavat pisaroita ja muuttavat materiaaliominaisuuksiaan. Tau-proteiinin kokonaismäärä, fosforyloitunut tau, liukenemattomat fibrillit ja geelimäiset kondensaatit ovat erillisiä päätemuuttujia. Niiden yhdistäminen yhdeksi ”tau-vastaiseksi” väitteeksi häivyttää tutkittavan mekanismin.
Valitse seuraava koe puuttuvan erottelun perusteella
Poimi uudesta artikkelista tarkka kemiallinen identiteetti, pitoisuus, altistuksen kesto, liuotin, valaistusolosuhteet, malli, vertailukohde ja päätemuuttuja ennen sen reittikaavion tulkitsemista. Sovita määritys väitteeseen: hengitysmittaus hengitysvirtaan, ATP energian saatavuuteen, entsyymikinetiikka estovaikutukseen ja geneettinen muokkaus reittiriippuvuuteen.
Annos-vastesuhteen opas käsittelee vasteita, joiden suunta muuttuu pitoisuuden mukaan. Antioksidanttisia ja pro-oksidanttisia vaikutuksia käsittelevä opas erottaa redox-kierron yleisestä antioksidanttiluokituksesta. Soluun pääsy ja jakautuminen kalvoihin selittää, miksi nimellinen pitoisuus kasvatusväliaineessa ei automaattisesti vastaa solunsisäistä altistusta; Azure B -tutkimus selittää, miksi läheisiä väriaineyhdisteitä ei tule pitää keskenään vaihdettavina.
Laajempi kirjallisuus käsittelee myös kaspaasiaktiivisuutta, ferroptoosia, tulehdussignalointia ja solujen senesenssiä. Nämä ovat hyödyllisiä tarkastelusuuntia, kun päätemuuttujana on solukuolema, sytokiinisignalointi tai pysyvä kasvun pysähtyminen. Ne eivät ole lisätodisteita siitä, että jokainen molekyylitason vaikutus tapahtuisi samassa solussa samalla pitoisuudella. Tämä kartta tarjoaa reittejä kokeellisen näytön tarkasteluun; se ei muuta kokeita kliinisiksi hyödyiksi.