
Článek
Methylenová modř v buněčné biologii: cíle, modely a měřené účinky
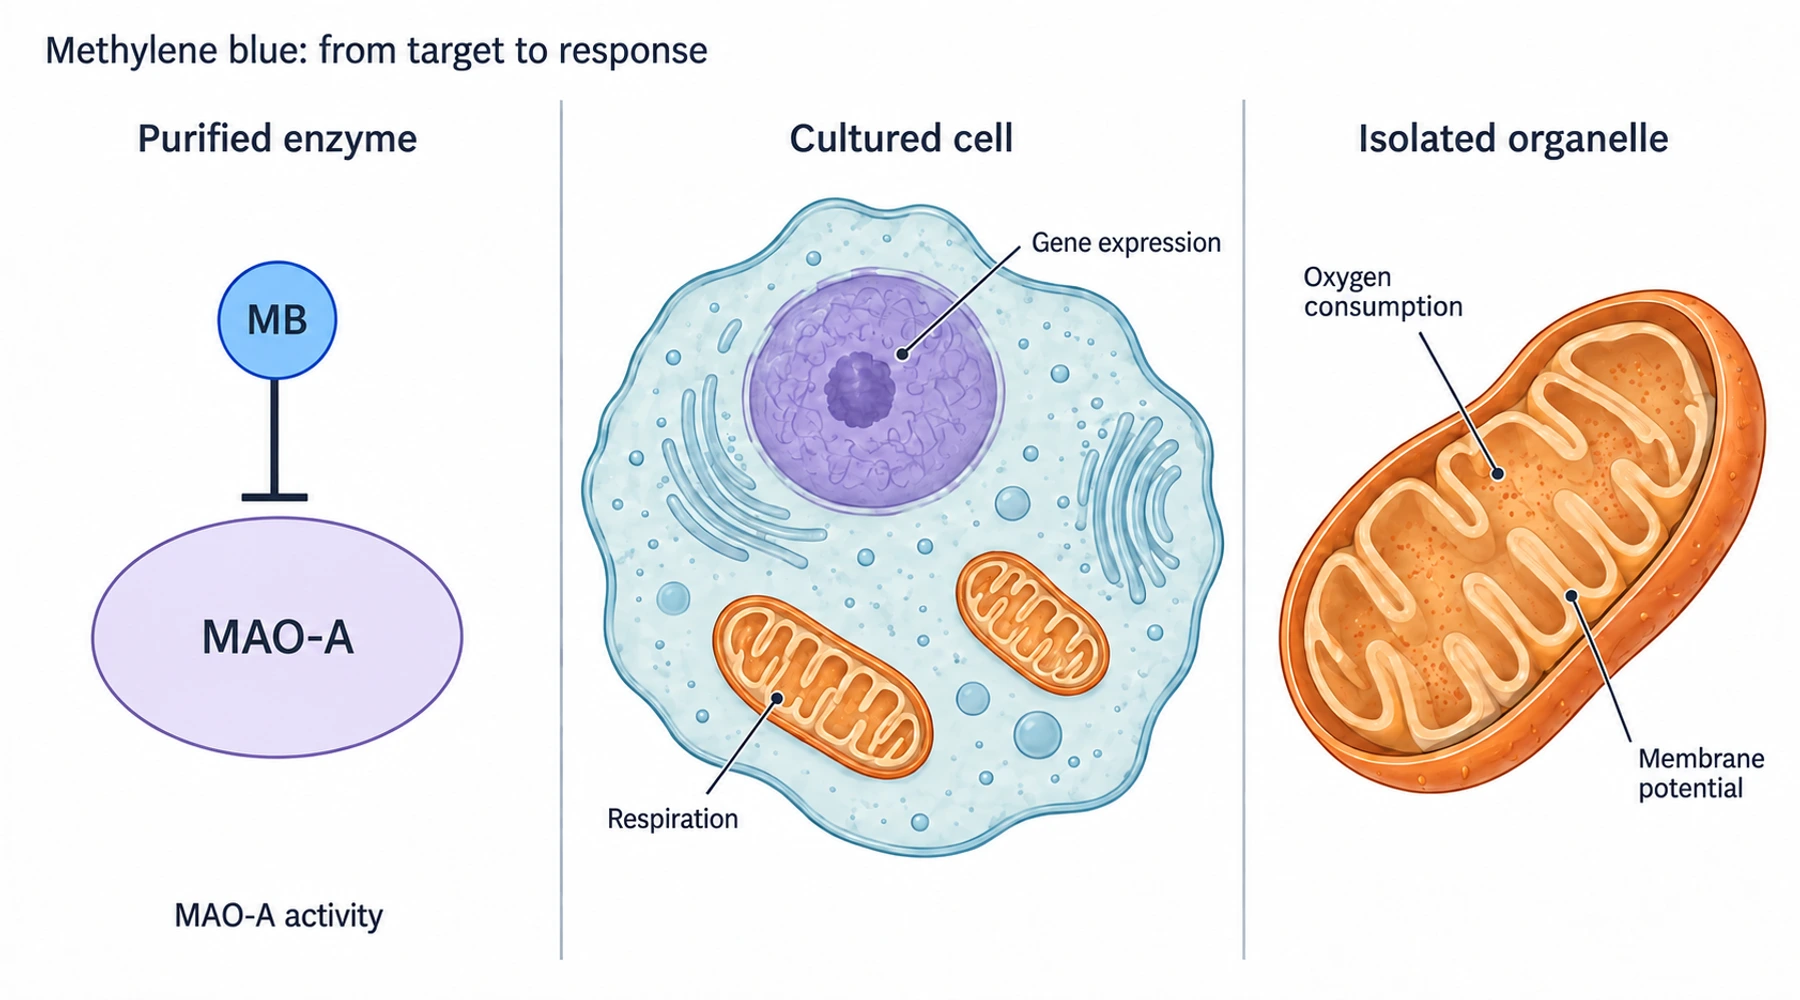
Methylenová modř má několik experimentálně doložených molekulárních účinků, ale seznam názvů drah zastírá, co jednotlivé experimenty skutečně prokázaly. Inhibice purifikovaného enzymu, změna spotřeby kyslíku v kultivovaných buňkách a snížení proteinového signálu v myším mozku jsou odlišná pozorování. Vyžadují různé kontroly a podporují různé závěry.
Tento výzkumný rozcestník uspořádává tato pozorování podle procesu, modelu a měřeného ukazatele. Doprovodný úvodní obrázek je koncepční ilustrací experimentálních systémů, nikoli výsledkem určení molekulární struktury nebo mikroskopickým snímkem. Základní chemické souvislosti najdete v článku o redoxní chemii a biologických mechanismech.
Nejprve si přečtěte označení typů důkazů
Biochemické důkazy zkoumají definovaný protein nebo reakci mimo neporušenou buňku. Mohou prokázat inhibici nebo přenos elektronů za stanovených podmínek. Buněčné důkazy zahrnují navíc příjem látky, metabolismus, kompartmentalizaci a vzájemně působící dráhy. Důkazy závislosti zjišťují, zda odstranění navrhované složky dráhy zruší pozorovanou odpověď. Důkazy na úrovni organismu měří účinky u zvířete s krevním oběhem, metabolismem a více tkáněmi.
Tato označení popisují zodpovězenou otázku, nikoli jednotný žebříček. Experiment s vyřazením genu může určit nezbytnou složku signalizace, aniž by prokázal, že se na ni methylenová modř přímo váže. Výsledek sledování chování zvířete může prokázat fenotyp, aniž by určil jeho molekulární příčinu.
Mapa molekulárních cílů s odkazy
Každý řádek čtěte vodorovně. První sloupec odkazuje na rozbor příslušné dráhy; odkaz na studii určuje experimentální základ. Jde o výběrovou mapu klíčových mechanistických poznatků, nikoli o vyčerpávající katalog všech popsaných buněčných účinků.
| Proces nebo cíl | Experimentální systém a typ důkazů | Měřený ukazatel a interpretace |
|---|---|---|
| MAO a metabolismus neurotransmiterů | Purifikované rekombinantní lidské MAO-A a MAO-B; biochemická kinetika | Ramsay a kolegové měřili inhibici enzymů. MAO-A byla mnohem citlivější; ukazatele nálady ani serotoninu v mozku nebyly měřeny. |
| NOS a signalizace cGMP | Purifikovaná syntáza NO, endoteliální buňky, izolované cévy; biochemické a funkční testy | Mayer a kolegové rozlišili tvorbu citrulinu, produkci cGMP a relaxaci. Inhibici NOS nelze přeznačit za selektivní inhibici rozpustné guanylátcyklázy. |
| Mitochondriální transport elektronů | Transformované myší hipokampální buňky HT-22 a biochemické reakce; buněčné a biochemické důkazy | Wen a kolegové měřili spotřebu kyslíku, acidifikaci, ATP a přenos elektronů závislý na redoxních podmínkách. Tyto ukazatele byly testovány odděleně. |
| Obcházení komplexu III | Izolované mitochondrie z myšího mozku s inhibitory respirace; experiment na organelách | Studie komplexu III s antimycinem zjistila, že po této blokádě nedošlo k obnovení respirace ani membránového potenciálu, přestože po inhibici komplexu I nastala částečná obnova. |
| Nrf2 a mitochondriální biogeneze | Myší embryonální fibroblasty divokého typu a s vyřazeným genem Nrf2; genetická závislost | Stack a kolegové měřili transkripty antioxidační odpovědi. Ztráta indukce v buňkách s vyřazeným genem podporuje závislost na Nrf2, nikoli přímou vazbu na Nrf2. |
| Autofagie a signalizace mTOR | Buňky vaječníku křečka čínského exprimující lidský tau; experimenty s reportéry a snížením genové exprese | Congdon a kolegové zkoumali reportéry LC3, fosforylaci kináz a tau. Snížení exprese BECN1 odstranilo pozorovanou odpověď spočívající ve snížení množství tau. |
| Zpracování tau a odstraňování proteinů | Test s purifikovaným Hsp70 a buňky HeLa exprimující lidský tau; biochemické a buněčné důkazy | Jinwal a kolegové spojili inhibici ATPázy se snížením množství tau závislým na proteazomu. To se liší od zabránění vzniku fibril z purifikovaného tau. |
| Tvorba kondenzátů tau | Rekonstituované kapénky rekombinantního tau; samostatný test cytotoxicity na buňkách SH-SY5Y | Studie fázové separace z roku 2023 měřila tvorbu kapének a gelovatění in vitro a poté hodnotila životaschopnost buněk pomocí MTT po expozici inkubovaným formám tau. Buněčný test neměřil tvorbu intracelulárních kondenzátů. |
Mapa molekulárních cílů ke stažení zachovává odkazy na primární studie, označení typů důkazů a klíčové experimentální podmínky v textovém dokumentu určeném k dalšímu použití.
Co primární experimenty rozlišují
Inhibice enzymu má kontext konkrétního testu
Studie s purifikovanými lidskými enzymy uvedla inhibiční konstantu MAO-A, Ki = 27 ± 3 nM, stanovenou analýzou těsné vazby. Hodnota IC50 pro MAO-A byla za uvedených podmínek testu 164 ± 8 nM. Ki a IC50 nejsou zaměnitelné: druhá hodnota závisí na podmínkách týkajících se enzymu a substrátu, za nichž se měří poloviční inhibice. Ani jedno číslo není dávkou pro člověka ani předpovězenou koncentrací v tkáni.
Podobně informativní je srovnání NOS. Purifikovaná syntáza NO při 30 μM methylenové modři ztratila veškerou měřenou aktivitu tvorby citrulinu. Ve stejné práci vyžadovala guanylátcykláza stimulovaná S-nitrosoglutathionem přibližně 60 μM k dosažení poloviční inhibice. Pokles buněčného cGMP tedy sám o sobě neurčuje guanylátcyklázu jako místo účinku. Může odrážet sníženou produkci NO, který ji aktivuje.
Respirace není synonymem produkce ATP
Ve studii s buňkami HT-22 použili výzkumníci oligomycin, FCCP a rotenon ke zkoumání chování respirace. Nezávisle také měřili ATP. Srovnávací látka FCCP zvýšila spotřebu kyslíku a současně snížila buněčné ATP, což přímo ukazuje, proč samotný záznam spotřeby kyslíku nedokáže zodpovědět otázku týkající se ATP. Tomuto rozlišení se věnuje samostatný průvodce spotřebou kyslíku versus ATP.
Pozdější práce s izolovanými mitochondriemi z myšího mozku použila substráty včetně pyruvátu a malátu. Při 1 μM methylenová modř částečně obnovila respiraci inhibovanou rotenonem, ale po antimycinové blokádě měla jen malý účinek. Tento výsledek omezuje univerzální tvrzení, že barvivo vždy obchází komplexy I i III. U každého navrhovaného schématu přenosu elektronů je třeba uvést druh organismu, způsob přípravy mitochondrií, substráty, inhibitory a podmínky testu.
Genová odpověď není důkazem přímého působení na cíl
V experimentu s Nrf2 zvýšila methylenová modř v koncentracích 0.1, 1 a 10 μM množství transkriptu HO1 v myších embryonálních fibroblastech divokého typu, zatímco v buňkách s vyřazeným genem Nrf2 odpověď chyběla. Toto genetické srovnání vypovídá o závislosti na dráze více než samotné měření exprese v ošetřených buňkách.
Stále však neobjasňuje počáteční molekulární událost. Transkripce závislá na Nrf2, mitochondriální biogeneze, změněná rovnováha NAD+/NADH a signalizace AMPK by měly zůstat samostatnými položkami, dokud je experiment nepropojí. Zvýšená exprese jednoho mitochondriálního genu neprokazuje, že buňky vytvořily více funkčních mitochondrií.
Odstraňování proteinů má několik cest
Studie autofagie vystavila buňky CHO exprimující tau působení 0.01 μM methylenové modři po dobu šesti hodin a porovnala je s kontrolou ošetřenou pouze vehikulem. Tandemový červeno-zelený reportér LC3 pomohl odlišit ranější vezikuly od okyselených autolysozomů; bafilomycin poskytl srovnávací podmínku, která narušovala autofagický tok. Snížení exprese BECN1 ověřovalo, zda se autofagický aparát podílí na snížení množství tau. Tyto experimenty jdou nad rámec pouhého počítání LC3-pozitivních bodů, které se mohou hromadit jak při zvýšené tvorbě, tak při zpomaleném odstraňování.
Naproti tomu studie Hsp70 zkoumala aktivitu ATPázy a odstraňování tau závislé na proteazomu v jiném buněčném systému. Experimenty s kondenzáty z roku 2023 položily další otázku: jak molekuly tau tvoří kapénky a mění své materiálové vlastnosti. Celkové tau, fosforylované tau, nerozpustné fibrily a gelovité kondenzáty jsou odlišné měřené ukazatele. Jejich sloučení do jediného tvrzení o „účinku proti tau“ zastírá zkoumaný mechanismus.
Další experiment vybírejte podle toho, co dosud nebylo rozlišeno
U nové studie si před interpretací schématu dráhy zjistěte přesnou chemickou identitu, koncentraci, dobu expozice, rozpouštědlo, podmínky osvětlení, model, srovnávací podmínku a měřený ukazatel. Přiřaďte test k tvrzení: respiraci k respiračnímu toku, ATP k dostupnosti energie, enzymovou kinetiku k inhibici a genetický zásah k závislosti na dráze.
Průvodce závislostí odpovědi na dávce se zabývá odpověďmi, jejichž směr se mění napříč koncentracemi. Průvodce antioxidačními a prooxidačními účinky odděluje redoxní cyklování od univerzálního označení antioxidant. Vstup do buněk a rozdělování do membrán vysvětluje, proč nominální koncentrace v médiu automaticky neodpovídá intracelulární expozici; výzkum Azure B vysvětluje, proč by se příbuzné formy barviv neměly považovat za zaměnitelné.
Širší literatura se zabývá také aktivitou kaspáz, ferroptózou, zánětlivou signalizací a buněčnou senescencí. To jsou užitečné směry, pokud je měřeným ukazatelem buněčná smrt, cytokinová signalizace nebo přetrvávající zastavení růstu. Nejsou dalším důkazem, že všechny molekulární účinky probíhají ve stejné buňce při stejné koncentraci. Tato mapa vytyčuje cesty experimentálními důkazy; nepřevádí tyto experimenty na klinické přínosy.