
Članak
Metilensko plavo u ćelijskoj biologiji: mete, modeli i izmjereni efekti
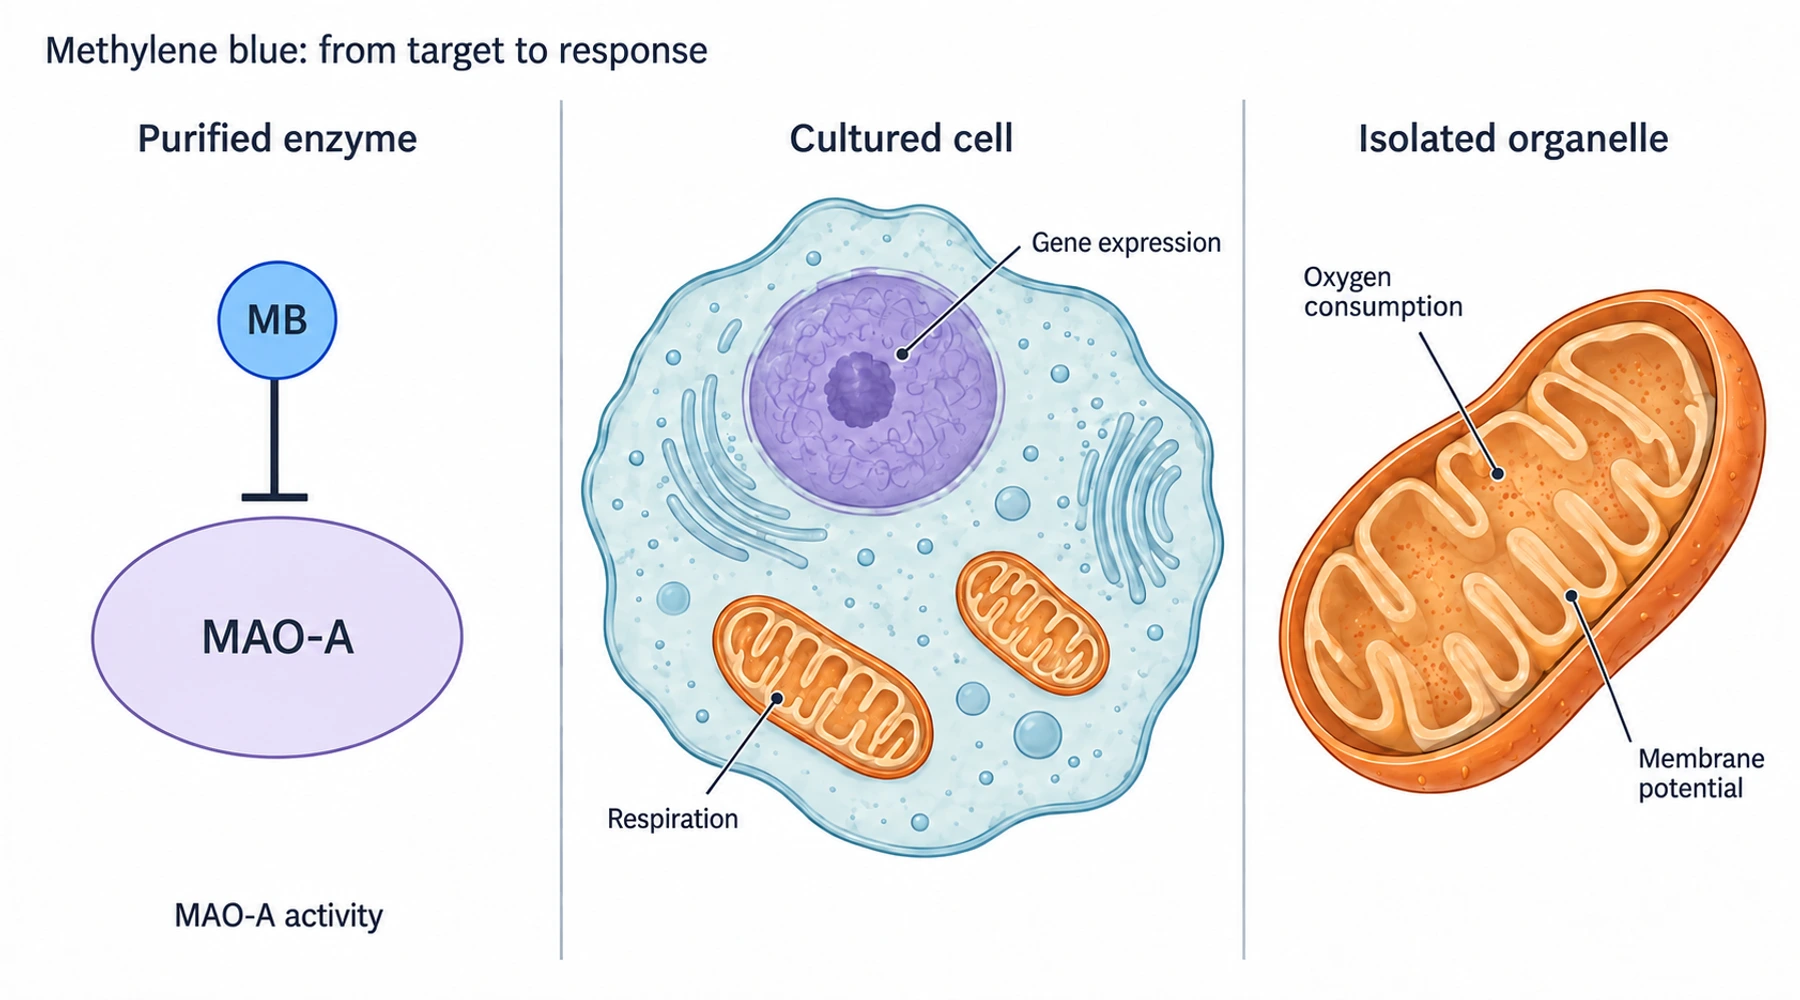
Metilensko plavo ima nekoliko eksperimentalno potkrijepljenih molekularnih djelovanja, ali popis naziva signalnih puteva zamagljuje ono što je svaki eksperiment zapravo utvrdio. Inhibicija pročišćenog enzima, promjena potrošnje kisika u ćelijama u kulturi i smanjenje proteinskog signala u mozgu miša različita su opažanja. Zahtijevaju različite kontrole i potkrepljuju različite zaključke.
Ovaj pregled istraživanja organizuje ta opažanja prema procesu, modelu i ishodu. Prateća naslovna slika konceptualna je ilustracija eksperimentalnih sistema, a ne prikaz određivanja molekularne strukture ili mikroskopski snimak. Za osnovnu hemiju počnite od redoks hemije i bioloških mehanizama.
Prvo pročitajte oznake dokaza
Biohemijski dokazi ispituju definisani protein ili reakciju izvan cjelovite ćelije. Mogu utvrditi inhibiciju ili prijenos elektrona pod određenim uslovima. Ćelijski dokazi uključuju i unos u ćeliju, metabolizam, raspodjelu po ćelijskim odjeljcima i međudjelovanje signalnih puteva. Dokazi o zavisnosti ispituju da li uklanjanje predložene komponente signalnog puta ukida odgovor. Dokazi na nivou organizma mjere efekte u životinji s krvotokom, metabolizmom i više tkiva.
Ove oznake opisuju pitanje na koje je odgovoreno, a ne jedinstveni poredak dokaza. Eksperiment s isključivanjem gena može identificirati neophodnu signalnu komponentu, a da ne pokaže da se metilensko plavo direktno veže za tu komponentu. Rezultat ispitivanja ponašanja životinje može utvrditi fenotip bez identificiranja njegovog molekularnog uzroka.
Mapa molekularnih meta s linkovima
Čitajte svaki red vodoravno. Prva kolona vodi na raspravu o signalnom putu; link na studiju navodi eksperimentalnu osnovu. Ovo je odabrana mapa ključnih mehanističkih nalaza, a ne iscrpan katalog svih prijavljenih ćelijskih efekata.
| Proces ili meta | Eksperimentalni sistem i vrsta dokaza | Mjereni ishod i tumačenje |
|---|---|---|
| MAO i metabolizam neurotransmitera | Pročišćeni rekombinantni ljudski MAO-A i MAO-B; biohemijska kinetika | Ramsay i saradnici mjerili su inhibiciju enzima. MAO-A bio je mnogo osjetljiviji; nije mjeren ishod povezan s raspoloženjem ili serotoninom u mozgu. |
| NOS i cGMP signalizacija | Pročišćena NO sintaza, endotelne ćelije, izolovani krvni sudovi; biohemijska i funkcionalna ispitivanja | Mayer i saradnici odvojeno su ispitivali stvaranje citrulina, proizvodnju cGMP-a i relaksaciju. Inhibicija NOS-a ne može se preimenovati u selektivnu inhibiciju rastvorljive gvanilat ciklaze. |
| Mitohondrijski transport elektrona | Transformisane mišje hipokampalne ćelije HT-22 i biohemijske reakcije; ćelijski i biohemijski dokazi | Wen i saradnici mjerili su potrošnju kisika, acidifikaciju, ATP i prijenos elektrona zavisan od redoks stanja. Ovi ishodi ispitivani su odvojeno. |
| Zaobilaženje kompleksa III | Izolovane mitohondrije iz mozga miša uz inhibitore respiracije; eksperiment na organelama | Studija kompleksa III s antimicinom utvrdila je da nakon te blokade nisu obnovljeni respiracija i membranski potencijal, uprkos djelimičnom oporavku nakon inhibicije kompleksa I. |
| Nrf2 i mitohondrijska biogeneza | Mišji embrionalni fibroblasti divljeg tipa i s isključenim genom Nrf2; genetička zavisnost | Stack i saradnici mjerili su transkripte antioksidativnog odgovora. Gubitak indukcije u ćelijama s isključenim genom potkrepljuje zavisnost od Nrf2, a ne direktno vezivanje za Nrf2. |
| Autofagija i mTOR signalizacija | Ćelije jajnika kineskog hrčka koje eksprimiraju ljudski tau; eksperimenti s reporterima i smanjenjem ekspresije gena | Congdon i saradnici ispitivali su LC3 reportere, fosforilaciju kinaza i tau. Smanjenje ekspresije BECN1 ukinulo je uočeni odgovor smanjenja tau proteina. |
| Obrada tau proteina i uklanjanje proteina | Ispitivanje pročišćenog Hsp70 i HeLa ćelije koje eksprimiraju ljudski tau; biohemijski i ćelijski dokazi | Jinwal i saradnici povezali su inhibiciju ATPaze sa smanjenjem tau proteina zavisnim od proteasoma. To se razlikuje od sprečavanja sastavljanja fibrila pročišćenog tau proteina. |
| Stvaranje kondenzata tau proteina | Rekonstituisane kapljice rekombinantnog tau proteina; zasebno ispitivanje citotoksičnosti na ćelijama SH-SY5Y | Studija faznog razdvajanja iz 2023. godine mjerila je stvaranje kapljica i geliranje in vitro, a zatim procijenila vijabilnost ćelija MTT testom nakon izlaganja inkubiranim oblicima tau proteina. Ćelijsko ispitivanje nije mjerilo stvaranje unutarćelijskih kondenzata. |
Mapa molekularnih meta za preuzimanje čuva linkove na primarne studije, oznake dokaza i ključne eksperimentalne uslove u tekstualnom dokumentu za ponovnu upotrebu.
Šta primarni eksperimenti razlikuju
Inhibicija enzima zavisi od konteksta ispitivanja
Studija pročišćenih ljudskih enzima navela je konstantu inhibicije MAO-A, Ki = 27 ± 3 nM, koristeći analizu čvrstog vezivanja. Vrijednost IC50 za MAO-A iznosila je 164 ± 8 nM pod navedenim uslovima ispitivanja. Ki i IC50 nisu međusobno zamjenjivi: potonja vrijednost zavisi od uslova vezanih za enzim i supstrat koji se koriste za mjerenje polovične inhibicije. Nijedna vrijednost nije doza za ljude niti predviđena koncentracija u tkivu.
Poređenje NOS-a slično je informativno. Pročišćena NO sintaza izgubila je svu izmjerenu aktivnost stvaranja citrulina pri 30 μM metilenskog plavog. U istom radu gvanilat ciklazi stimulisanoj S-nitrozoglutationom bilo je potrebno približno 60 μM za polovičnu inhibiciju. Stoga pad ćelijskog cGMP-a sam po sebi ne određuje da je mjesto djelovanja gvanilat ciklaza. Može odražavati smanjenu proizvodnju NO-a koji je aktivira.
Respiracija nije sinonim za proizvodnju ATP-a
U studiji HT-22 istraživači su koristili oligomicin, FCCP i rotenon za ispitivanje respiracije. Također su nezavisno mjerili ATP. Njihov komparator FCCP povećao je potrošnju kisika uz smanjenje ćelijskog ATP-a, direktno pokazujući zašto zapis potrošnje kisika sam ne može odgovoriti na pitanje o ATP-u. Poseban vodič o potrošnji kisika naspram ATP-a prati tu razliku.
Kasniji rad na izolovanim mitohondrijama iz mozga miša koristio je supstrate koji su uključivali piruvat i malat. Pri 1 μM metilensko plavo djelimično je obnovilo respiraciju inhibiranu rotenonom, ali je imalo mali učinak nakon antimicina. Taj rezultat ograničava opću tvrdnju da boja uvijek zaobilazi i kompleks I i kompleks III. Uz svaki predloženi dijagram prijenosa elektrona treba navesti vrstu, mitohondrijski preparat, supstrate, inhibitore i uslove ispitivanja.
Genski odgovor nije dokaz direktnog djelovanja na metu
U eksperimentu s Nrf2, 0.1, 1 i 10 μM metilenskog plavog povećali su transkript HO1 u mišjim embrionalnim fibroblastima divljeg tipa, dok je odgovor izostao u ćelijama s isključenim genom Nrf2. Ovo genetičko poređenje daje više informacija o zavisnosti od signalnog puta nego samo mjerenje ekspresije u tretiranim ćelijama.
Ipak, početni molekularni događaj ostaje nerazjašnjen. Transkripcija zavisna od Nrf2, mitohondrijska biogeneza, promijenjena ravnoteža NAD+/NADH i AMPK signalizacija trebaju ostati zasebne stavke dok ih eksperiment ne poveže. Povećana ekspresija jednog mitohondrijskog gena ne utvrđuje da su ćelije proizvele više funkcionalnih mitohondrija.
Uklanjanje proteina odvija se kroz više puteva
Studija autofagije izložila je CHO ćelije koje eksprimiraju tau protein metilenskom plavom pri 0.01 μM tokom šest sati i uporedila ih s ćelijama tretiranim nosačem. Tandemski crveni/zeleni LC3 reporter pomogao je razlikovati ranije vezikule od zakiseljenih autolizosoma; bafilomicin je pružio kontrastni uslov koji je ometao autofagijski tok. Smanjenjem ekspresije BECN1 ispitano je da li je autofagijski aparat doprinosio smanjenju tau proteina. Ovi eksperimenti idu dalje od jednostavnog brojanja LC3-pozitivnih tačaka, koje se mogu nakupljati kada se poveća stvaranje ili uspori uklanjanje.
Nasuprot tome, studija Hsp70 ispitivala je aktivnost ATPaze i uklanjanje tau proteina zavisno od proteasoma u drugom ćelijskom sistemu. Eksperimenti s kondenzatima iz 2023. godine postavili su drugo pitanje: kako molekule tau proteina stvaraju kapljice i mijenjaju svoja materijalna svojstva. Ukupni tau, fosforilisani tau, nerastvorljivi fibrili i kondenzati nalik gelu različiti su ishodi. Njihovo objedinjavanje u jednu tvrdnju o „djelovanju protiv tau proteina” briše mehanizam koji se ispituje.
Odaberite sljedeći eksperiment prema razlici koja nedostaje
Za novi rad izdvojite tačan hemijski identitet, koncentraciju, trajanje izlaganja, rastvarač, uslove osvjetljenja, model, komparator i ishod prije nego što protumačite njegov dijagram signalnog puta. Uskladite ispitivanje s tvrdnjom: respiraciju s respiracijskim tokom, ATP s dostupnošću energije, enzimsku kinetiku s inhibicijom, a genetičku perturbaciju sa zavisnošću od signalnog puta.
Vodič o odnosu doze i odgovora obrađuje odgovore koji mijenjaju smjer pri različitim koncentracijama. Vodič o antioksidativnom i prooksidativnom djelovanju razdvaja redoks cikliranje od opće oznake antioksidansa. Ulazak u ćeliju i raspodjela u membranama objašnjava zašto nominalna koncentracija u mediju ne predstavlja automatski unutarćelijsku izloženost; istraživanja Azure B objašnjavaju zašto se srodni oblici boje ne trebaju smatrati međusobno zamjenjivim.
Šira literatura obuhvata i aktivnost kaspaza, feroptozu, upalnu signalizaciju i ćelijsku senescenciju. To su korisni pravci kada je ishod ćelijska smrt, citokinska signalizacija ili trajni zastoj rasta. Nisu dodatni dokaz da se svako molekularno djelovanje odvija u istoj ćeliji pri istoj koncentraciji. Ova mapa uspostavlja puteve kroz eksperimentalne dokaze; ne pretvara te eksperimente u kliničke koristi.