
Статия
Метиленовото синьо в клетъчната биология: мишени, модели и измерени ефекти
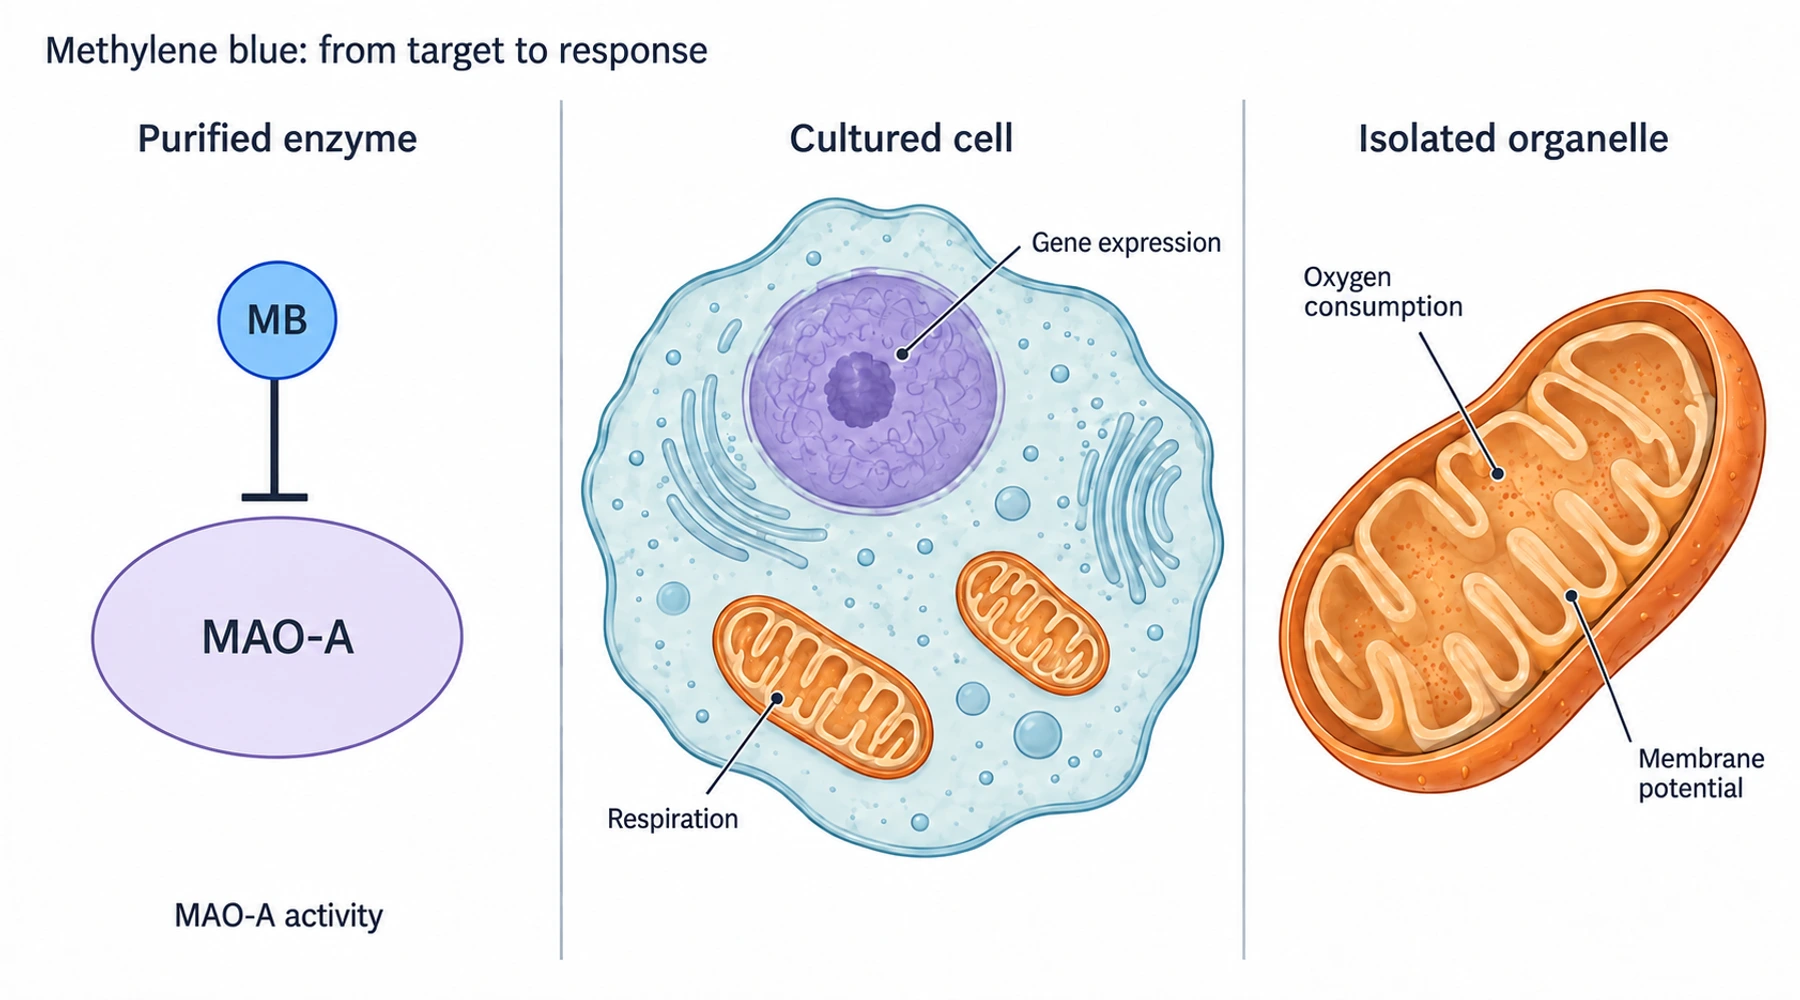
Метиленовото синьо има няколко експериментално подкрепени молекулярни действия, но списъкът с имена на пътища замъглява какво всъщност е установил всеки експеримент. Инхибирането на пречистен ензим, промяната в консумацията на кислород в култивирани клетки и намаляването на сигнала за даден протеин в мозъка на мишка са различни наблюдения. Те изискват различни контроли и подкрепят различни заключения.
Този изследователски указател подрежда тези наблюдения по процес, модел и краен показател. Придружаващото изображение на корицата е концептуална илюстрация на експериментални системи, а не определяне на молекулярна структура или микроскопско изображение. За химичните основи започнете с окислително-редукционната химия и биологичните механизми.
Първо прочетете обозначенията на доказателствата
Биохимичните доказателства изследват определен протеин или реакция извън цялостна клетка. Те могат да установят инхибиране или пренос на електрони при конкретни условия. Клетъчните доказателства добавят навлизането в клетката, метаболизма, разпределението в клетъчни компартменти и взаимодействащите пътища. Доказателствата за зависимост проверяват дали премахването на предполагаем компонент на даден път премахва отговора. Доказателствата на ниво организъм измерват ефекти при животно с кръвообращение, метаболизъм и множество тъкани.
Тези обозначения описват въпроса, на който е отговорено, а не единна йерархия. Експеримент с нокаут може да установи необходим сигнален компонент, без да показва, че метиленовото синьо се свързва пряко с него. Поведенчески резултат при животно може да установи фенотип, без да идентифицира молекулярната му причина.
Карта на молекулярните мишени с връзки
Четете всеки ред хоризонтално. Първата колона води към обсъждането на съответния път; връзката към изследването посочва експерименталната основа. Това е подбрана карта на опорни данни за механизмите, а не изчерпателен каталог на всеки съобщен клетъчен ефект.
| Процес или мишена | Експериментална система и вид доказателства | Измерен краен показател и интерпретация |
|---|---|---|
| MAO и метаболизъм на невротрансмитерите | Пречистени рекомбинантни човешки MAO-A и MAO-B; биохимична кинетика | Ramsay и колеги измерват ензимното инхибиране. MAO-A е много по-чувствителна; не е измерен краен показател, свързан с настроението или серотонина в мозъка. |
| NOS и cGMP сигнализация | Пречистена NO синтаза, ендотелни клетки, изолирани съдове; биохимични и функционални анализи | Mayer и колеги разграничават образуването на цитрулин, производството на cGMP и релаксацията. Инхибирането на NOS не може да се преопредели като селективно инхибиране на разтворимата гуанилатциклаза. |
| Митохондриален електронен транспорт | Трансформирани миши хипокампални клетки HT-22 и биохимични реакции; клетъчни и биохимични доказателства | Wen и колеги измерват консумацията на кислород, подкиселяването, ATP и зависимия от окислително-редукционните условия пренос на електрони. Тези крайни показатели са изследвани поотделно. |
| Заобикаляне на комплекс III | Изолирани митохондрии от мозък на мишка с инхибитори на дишането; експеримент с органели | Изследване на комплекс III с антимицин установява, че дишането и мембранният потенциал не се възстановяват след тази блокада, въпреки частичното възстановяване след инхибиране на комплекс I. |
| Nrf2 и митохондриална биогенеза | Миши ембрионални фибробласти от див тип и с нокаут на Nrf2; генетична зависимост | Stack и колеги измерват транскрипти, свързани с антиоксидантния отговор. Липсата на индукция в клетките с нокаут подкрепя зависимост от Nrf2, а не пряко свързване с Nrf2. |
| Автофагия и mTOR сигнализация | Клетки от яйчник на китайски хамстер, експресиращи човешки тау; експерименти с репортери и нокдаун | Congdon и колеги изследват LC3 репортери, фосфорилиране на кинази и тау. Нокдаунът на BECN1 премахва наблюдавания отговор на понижаване на тау. |
| Обработка на тау и отстраняване на протеини | Анализ с пречистен Hsp70 и клетки HeLa, експресиращи човешки тау; биохимични и клетъчни доказателства | Jinwal и колеги свързват инхибирането на ATPазната активност с протеазомно зависимо намаляване на тау. Това се различава от предотвратяването на образуването на фибрили от пречистен тау. |
| Образуване на кондензати на тау | Реконституирани капчици от рекомбинантен тау; отделен анализ на цитотоксичността в SH-SY5Y | Изследване на фазовото разделяне от 2023 г. измерва образуването на капчици и желирането in vitro, след което оценява клетъчната жизнеспособност чрез MTT след излагане на инкубирани форми на тау. Клетъчният анализ не измерва образуването на вътреклетъчни кондензати. |
Картата на молекулярните мишени за изтегляне запазва връзките към първичните изследвания, обозначенията на доказателствата и ключовите експериментални условия в текстов документ за многократна употреба.
Какво разграничават първичните експерименти
Ензимното инхибиране зависи от условията на анализа
Изследването с пречистени човешки ензими съобщава константа на инхибиране на MAO-A, Ki = 27 ± 3 nM, определена чрез анализ за плътно свързване. IC50 за MAO-A е 164 ± 8 nM при посочените условия на анализа. Ki и IC50 не са взаимозаменяеми: втората величина зависи от условията по отношение на ензима и субстрата, използвани за измерване на инхибирането наполовина. Нито една от тези стойности не е доза за човек или прогнозна тъканна концентрация.
Сравнението с NOS е също толкова информативно. Пречистената NO синтаза губи цялата измерена активност за образуване на цитрулин при 30 μM метиленово синьо. В същата публикация за инхибиране наполовина на гуанилатциклазата, стимулирана от S-нитрозоглутатион, са необходими приблизително 60 μM. Следователно спадът на клетъчния cGMP сам по себе си не показва, че ефектът е на ниво гуанилатциклаза. Той може да отразява намалено производство на NO, който я активира.
Дишането не е синоним на производство на ATP
В изследването с HT-22 изследователите използват олигомицин, FCCP и ротенон, за да проучат характеристиките на дишането. Те измерват и ATP независимо. Използваният за сравнение FCCP увеличава консумацията на кислород, като същевременно понижава клетъчния ATP, което пряко показва защо кривата на консумация на кислород не може сама да отговори на въпроса за ATP. Специализираното ръководство за консумацията на кислород спрямо ATP разглежда това разграничение.
По-късна работа с изолирани митохондрии от мозък на мишка използва субстрати, включително пируват и малат. При 1 μM метиленовото синьо частично възстановява дишането, инхибирано от ротенон, но има слаб ефект след антимицин. Този резултат ограничава универсалното твърдение, че багрилото винаги заобикаля и комплекс I, и комплекс III. Биологичният вид, митохондриалният препарат, субстратите, инхибиторите и условията на анализа трябва да съпътстват всяка предложена схема за пренос на електрони.
Генният отговор не доказва пряко взаимодействие с мишената
В експеримента с Nrf2 метиленовото синьо при 0.1, 1 и 10 μM увеличава транскрипта на HO1 в миши ембрионални фибробласти от див тип, докато този отговор липсва в клетките с нокаут на Nrf2. Това генетично сравнение дава повече информация за зависимостта от даден път, отколкото измерването на експресията само в третирани клетки.
Въпреки това началното молекулярно събитие остава неизяснено. Зависимата от Nrf2 транскрипция, митохондриалната биогенеза, промененият баланс NAD+/NADH и AMPK сигнализацията трябва да останат отделни позиции, докато експеримент не ги свърже. Повишената експресия на един митохондриален ген не установява, че клетките са произвели повече функционални митохондрии.
Отстраняването на протеини има няколко пътя
Изследването на автофагията излага CHO клетки, експресиращи тау, на 0.01 μM метиленово синьо за шест часа и ги сравнява с контролни клетки, третирани с носителя. Тандемен червен/зелен LC3 репортер помага да се разграничат везикулите в по-ранните етапи от подкиселените автолизозоми; бафиломицинът осигурява контрастно условие, което нарушава автофагичния поток. Нокдаунът на BECN1 проверява дали автофагичният апарат допринася за намаляването на тау. Тези експерименти надхвърлят простото преброяване на LC3-положителни точки, които могат да се натрупват както при увеличено образуване, така и при забавено отстраняване.
За разлика от това, изследването на Hsp70 разглежда ATPазната активност и протеазомно зависимото отстраняване на тау в друга клетъчна система. Експериментите с кондензати от 2023 г. поставят различен въпрос: как молекулите на тау образуват капчици и променят материалните си свойства. Общият тау, фосфорилираният тау, неразтворимите фибрили и гелоподобните кондензати са различни крайни показатели. Обединяването им в едно „анти-тау“ твърдение заличава механизма, който се изследва.
Изберете следващия експеримент според липсващото разграничение
При нова публикация извлечете точната химична идентичност, концентрацията, продължителността на излагане, разтворителя, условията на осветяване, модела, сравнителното условие и крайния показател, преди да интерпретирате схемата на пътя. Съобразете анализа с твърдението: дишането — с дихателния поток, ATP — с енергийната наличност, ензимната кинетика — с инхибирането, а генетичната намеса — със зависимостта от даден път.
Ръководството за зависимостта доза–отговор разглежда отговори, които променят посоката си при различни концентрации. Ръководството за антиоксидантно и прооксидантно действие разграничава окислително-редукционното циклиране от универсалното определение „антиоксидант“. Навлизането в клетката и разпределението в мембраните обяснява защо номиналната концентрация в средата не означава автоматично същото вътреклетъчно излагане; изследванията на Azure B обясняват защо сродните форми на багрилото не трябва да се разглеждат като взаимозаменяеми.
По-широката литература обхваща също каспазната активност, фероптозата, възпалителната сигнализация и клетъчното стареене. Това са полезни направления, когато крайният показател е клетъчна смърт, цитокинова сигнализация или трайно спиране на растежа. Те не са допълнително доказателство, че всяко молекулярно действие протича в една и съща клетка при една и съща концентрация. Тази карта очертава пътища през експерименталните доказателства; тя не превръща тези експерименти в клинични ползи.