
บทความ
เมทิลีนบลูในชีววิทยาเซลล์: เป้าหมาย แบบจำลอง และผลที่วัดได้
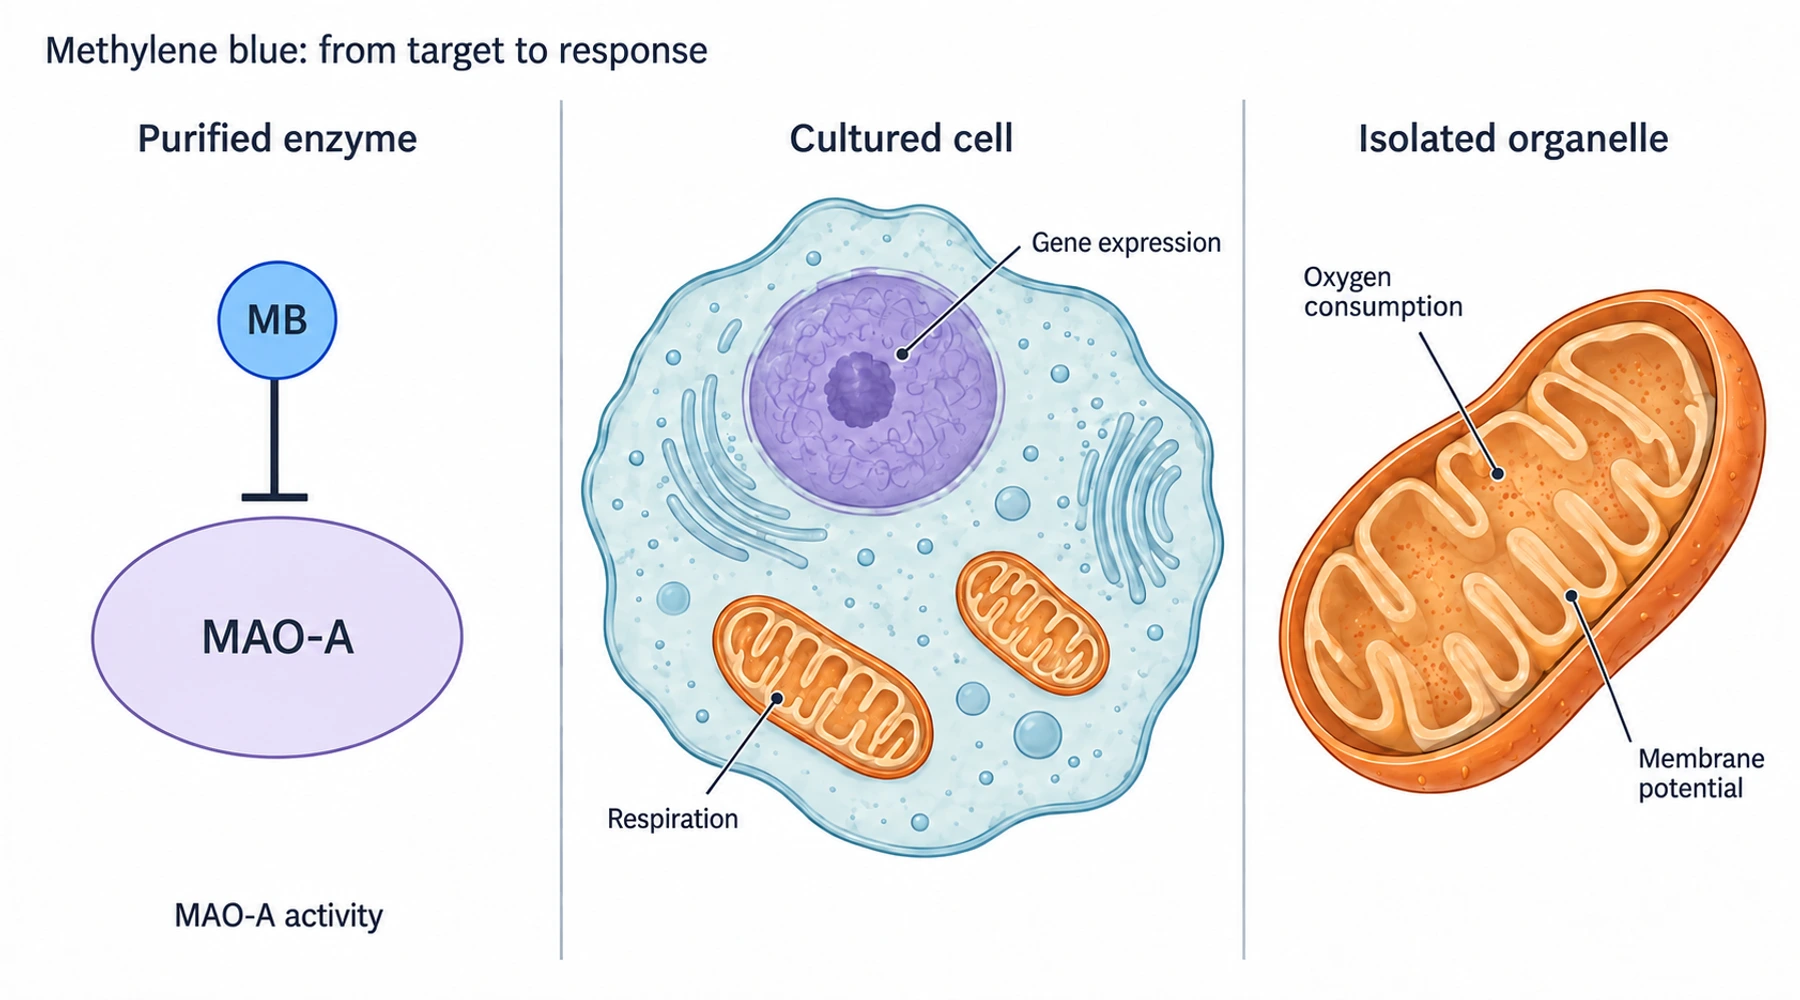
เมทิลีนบลูมีกลไกการออกฤทธิ์ระดับโมเลกุลหลายอย่างที่มีหลักฐานจากการทดลองรองรับ แต่การแจกแจงเพียงชื่อวิถีต่าง ๆ ทำให้มองไม่ชัดว่าการทดลองแต่ละอย่างพิสูจน์อะไรได้จริง การยับยั้งเอนไซม์ที่ผ่านการทำให้บริสุทธิ์ การเปลี่ยนแปลงการใช้ออกซิเจนในเซลล์เพาะเลี้ยง และการลดสัญญาณของโปรตีนในสมองหนูเมาส์ เป็นข้อสังเกตที่แตกต่างกัน ทั้งยังต้องใช้ชุดควบคุมต่างกันและรองรับข้อสรุปต่างกัน
ดัชนีงานวิจัยนี้จัดหมวดหมู่ข้อสังเกตเหล่านั้นตาม กระบวนการ แบบจำลอง และตัวชี้วัดผล ภาพปกที่ใช้ประกอบเป็นภาพเชิงแนวคิดของระบบทดลอง ไม่ใช่ผลการวิเคราะห์โครงสร้างโมเลกุลหรือภาพจากกล้องจุลทรรศน์ สำหรับพื้นฐานทางเคมี เริ่มได้ที่ เคมีรีดอกซ์และกลไกทางชีวภาพ
อ่านป้ายกำกับหลักฐานก่อน
หลักฐานทางชีวเคมี ทดสอบโปรตีนหรือปฏิกิริยาที่กำหนดไว้นอกเซลล์ที่คงสภาพสมบูรณ์ หลักฐานประเภทนี้สามารถยืนยันการยับยั้งหรือการถ่ายโอนอิเล็กตรอนภายใต้เงื่อนไขที่ระบุ หลักฐานระดับเซลล์ เพิ่มปัจจัยเรื่องการนำสารเข้าเซลล์ เมแทบอลิซึม การแยกเป็นส่วนภายในเซลล์ และวิถีที่มีปฏิสัมพันธ์กัน หลักฐานการพึ่งพาองค์ประกอบ ตรวจสอบว่าการนำองค์ประกอบของวิถีที่เสนอไว้ออกไปทำให้การตอบสนองหายไปหรือไม่ หลักฐานระดับสิ่งมีชีวิต วัดผลในสัตว์ที่มีระบบไหลเวียนเลือด เมแทบอลิซึม และเนื้อเยื่อหลายชนิด
ป้ายกำกับเหล่านี้อธิบายว่าหลักฐานตอบคำถามใด ไม่ใช่การจัดอันดับแบบเดียว การทดลองที่ทำให้ยีนไม่ทำงานอาจระบุองค์ประกอบการส่งสัญญาณที่จำเป็นได้ โดยไม่ได้แสดงว่าเมทิลีนบลูจับกับองค์ประกอบนั้นโดยตรง ผลด้านพฤติกรรมในสัตว์อาจยืนยันลักษณะที่แสดงออกได้ โดยไม่ได้ระบุสาเหตุระดับโมเลกุล
แผนผังเป้าหมายระดับโมเลกุลพร้อมลิงก์
อ่านแต่ละแถวตามแนวนอน คอลัมน์แรกเชื่อมไปยังคำอธิบายวิถีนั้น ส่วนลิงก์งานวิจัยระบุการทดลองที่เป็นพื้นฐาน แผนผังนี้คัดเลือกหลักฐานสำคัญที่ยึดโยงกับกลไก ไม่ใช่รายการที่ครอบคลุมผลระดับเซลล์ทั้งหมดที่เคยมีรายงาน
| กระบวนการหรือเป้าหมาย | ระบบทดลองและประเภทหลักฐาน | ตัวชี้วัดผลและการตีความ |
|---|---|---|
| MAO และเมแทบอลิซึมของสารสื่อประสาท | MAO-A และ MAO-B ของมนุษย์แบบรีคอมบิแนนท์ที่ผ่านการทำให้บริสุทธิ์; จลนพลศาสตร์ทางชีวเคมี | แรมซีย์และคณะ วัดการยับยั้งเอนไซม์ MAO-A ไวต่อการยับยั้งมากกว่าอย่างชัดเจน; ไม่ได้วัดตัวชี้วัดผลด้านอารมณ์หรือเซโรโทนินในสมอง |
| NOS และการส่งสัญญาณ cGMP | NO synthase ที่ผ่านการทำให้บริสุทธิ์ เซลล์เยื่อบุหลอดเลือด และหลอดเลือดที่แยกออกมา; การทดสอบทางชีวเคมีและการทำงาน | เมเยอร์และคณะ แยกการสร้างซิทรูลีน การผลิต cGMP และการคลายตัวออกจากกัน ไม่สามารถเปลี่ยนคำอธิบายการยับยั้ง NOS ให้เป็นการยับยั้ง soluble guanylyl cyclase แบบจำเพาะได้ |
| การขนส่งอิเล็กตรอนในไมโทคอนเดรีย | เซลล์ HT-22 จากฮิปโปแคมปัสหนูเมาส์ที่ผ่านการแปรสภาพ และปฏิกิริยาทางชีวเคมี; หลักฐานระดับเซลล์และทางชีวเคมี | เหวินและคณะ วัดการใช้ออกซิเจน การเกิดสภาวะเป็นกรด ATP และการถ่ายโอนอิเล็กตรอนที่ขึ้นกับรีดอกซ์ โดยทดสอบตัวชี้วัดผลเหล่านี้แยกกัน |
| การข้ามคอมเพล็กซ์ III | ไมโทคอนเดรียที่แยกจากสมองหนูเมาส์ร่วมกับสารยับยั้งการหายใจ; การทดลองระดับออร์แกเนลล์ | งานวิจัยคอมเพล็กซ์ III ที่ใช้แอนติไมซิน พบว่าไม่สามารถฟื้นการหายใจและศักย์ไฟฟ้าเยื่อหุ้มหลังการปิดกั้นดังกล่าวได้ แม้จะฟื้นได้บางส่วนหลังการยับยั้งคอมเพล็กซ์ I |
| Nrf2 และการสร้างไมโทคอนเดรีย | เซลล์ไฟโบรบลาสต์จากตัวอ่อนหนูเมาส์ชนิดปกติและชนิดที่ทำให้ยีน Nrf2 ไม่ทำงาน; การพึ่งพาที่ตรวจสอบทางพันธุกรรม | สแต็กและคณะ วัดทรานสคริปต์ที่เกี่ยวกับการตอบสนองต้านออกซิเดชัน การไม่พบการเหนี่ยวนำในเซลล์ที่ทำให้ยีนไม่ทำงานสนับสนุนการพึ่งพา Nrf2 ไม่ใช่การจับกับ Nrf2 โดยตรง |
| ออโตฟาจีและการส่งสัญญาณ mTOR | เซลล์รังไข่แฮมสเตอร์จีนที่แสดงออกโปรตีนเทาของมนุษย์; การทดลองด้วยตัวรายงานและการลดการแสดงออกของยีน | คองดอนและคณะ ตรวจสอบตัวรายงาน LC3 การเติมหมู่ฟอสเฟตให้ไคเนส และโปรตีนเทา การลดการแสดงออกของ BECN1 ทำให้การตอบสนองที่ลดโปรตีนเทาซึ่งสังเกตได้หายไป |
| การจัดการโปรตีนเทาและการกำจัดโปรตีน | การทดสอบ Hsp70 ที่ผ่านการทำให้บริสุทธิ์ และเซลล์ HeLa ที่แสดงออกโปรตีนเทาของมนุษย์; หลักฐานทางชีวเคมีและระดับเซลล์ | จินวาลและคณะ เชื่อมโยงการยับยั้ง ATPase กับการลดโปรตีนเทาที่พึ่งพาโปรตีโอโซม ซึ่งแตกต่างจากการป้องกันไม่ให้โปรตีนเทาที่ผ่านการทำให้บริสุทธิ์รวมตัวเป็นเส้นใย |
| การก่อตัวของคอนเดนเสตโปรตีนเทา | หยดโปรตีนเทาแบบรีคอมบิแนนท์ที่สร้างขึ้นในระบบจำลอง; การทดสอบความเป็นพิษต่อเซลล์ SH-SY5Y แยกต่างหาก | งานวิจัยการแยกเฟสปี 2023 วัดการก่อตัวของหยดและการเกิดเจลในหลอดทดลอง จากนั้นประเมินความมีชีวิตของเซลล์ด้วย MTT หลังสัมผัสโปรตีนเทารูปแบบต่าง ๆ ที่ผ่านการบ่ม การทดสอบเซลล์ไม่ได้วัดการก่อตัวของคอนเดนเสตภายในเซลล์ |
แผนผังเป้าหมายระดับโมเลกุลที่ดาวน์โหลดได้ เก็บลิงก์งานวิจัยต้นฉบับ ป้ายกำกับหลักฐาน และเงื่อนไขการทดลองสำคัญไว้ในเอกสารข้อความที่นำกลับมาใช้ได้
สิ่งที่การทดลองต้นฉบับแยกแยะได้
การยับยั้งเอนไซม์ต้องพิจารณาบริบทของการทดสอบ
งานวิจัยเอนไซม์มนุษย์ที่ผ่านการทำให้บริสุทธิ์รายงานค่าคงที่การยับยั้ง MAO-A ที่ Ki = 27 ± 3 nM โดยใช้การวิเคราะห์การจับแบบแน่น ค่า IC50 ของ MAO-A ในงานนั้นอยู่ที่ 164 ± 8 nM ภายใต้เงื่อนไขการทดสอบที่ระบุ Ki และ IC50 ใช้แทนกันไม่ได้ เพราะค่าหลังขึ้นกับเงื่อนไขของเอนไซม์และสารตั้งต้นที่ใช้วัดการยับยั้งครึ่งหนึ่ง ตัวเลขทั้งสองไม่ใช่ขนาดใช้ในมนุษย์หรือค่าความเข้มข้นในเนื้อเยื่อที่คาดการณ์ไว้
การเปรียบเทียบ NOS ให้ข้อมูลที่สำคัญในลักษณะเดียวกัน NO synthase ที่ผ่านการทำให้บริสุทธิ์สูญเสียกิจกรรมการสร้างซิทรูลีนทั้งหมดที่วัดได้เมื่อมีเมทิลีนบลู 30 μM ในบทความเดียวกัน guanylyl cyclase ที่ถูกกระตุ้นด้วย S-nitrosoglutathione ต้องใช้ประมาณ 60 μM เพื่อให้เกิดการยับยั้งครึ่งหนึ่ง ดังนั้น การลดลงของ cGMP ในเซลล์เพียงอย่างเดียวจึงไม่สามารถระบุตำแหน่งที่เกิดผลว่าอยู่ที่ guanylyl cyclase ได้ ผลนั้นอาจสะท้อนการผลิต NO ซึ่งทำหน้าที่กระตุ้นเอนไซม์นี้ลดลง
การหายใจไม่ได้หมายถึงการผลิต ATP
ในงานวิจัย HT-22 ผู้วิจัยใช้โอลิโกไมซิน FCCP และโรทีโนนเพื่อตรวจสอบลักษณะการหายใจ และยังวัด ATP แยกต่างหากด้วย สารเปรียบเทียบ FCCP เพิ่มการใช้ออกซิเจนพร้อมกับลด ATP ในเซลล์ ซึ่งแสดงให้เห็นโดยตรงว่าเหตุใดกราฟการใช้ออกซิเจนเพียงอย่างเดียวจึงตอบคำถามเรื่อง ATP ไม่ได้ คู่มือเฉพาะเรื่อง การใช้ออกซิเจนเทียบกับ ATP อธิบายความแตกต่างนี้ต่อ
งานวิจัยต่อมาในไมโทคอนเดรียที่แยกจากสมองหนูเมาส์ใช้สารตั้งต้นซึ่งรวมถึงไพรูเวตและมาเลต ที่ 1 μM เมทิลีนบลูฟื้นการหายใจที่ถูกยับยั้งด้วยโรทีโนนได้บางส่วน แต่มีผลเพียงเล็กน้อยหลังใช้แอนติไมซิน ผลนี้จำกัดข้อกล่าวอ้างแบบครอบคลุมว่าสีย้อมดังกล่าวข้ามทั้งคอมเพล็กซ์ I และ III ได้เสมอ ชนิดสิ่งมีชีวิต วิธีเตรียมไมโทคอนเดรีย สารตั้งต้น สารยับยั้ง และเงื่อนไขการทดสอบ ควรระบุควบคู่กับแผนภาพการถ่ายโอนอิเล็กตรอนที่เสนอไว้ทุกครั้ง
การตอบสนองของยีนไม่ใช่หลักฐานว่ามีปฏิสัมพันธ์กับเป้าหมายโดยตรง
ในการทดลอง Nrf2 เมทิลีนบลูที่ 0.1, 1, และ 10 μM เพิ่มทรานสคริปต์ HO1 ในเซลล์ไฟโบรบลาสต์จากตัวอ่อนหนูเมาส์ชนิดปกติ ขณะที่ไม่พบการตอบสนองในเซลล์ที่ทำให้ยีน Nrf2 ไม่ทำงาน การเปรียบเทียบทางพันธุกรรมนี้ให้ข้อมูลเรื่องการพึ่งพาวิถีได้มากกว่าการวัดการแสดงออกเฉพาะในเซลล์ที่ได้รับสาร
อย่างไรก็ตาม เหตุการณ์ระดับโมเลกุลที่เป็นจุดเริ่มต้นยังไม่ชัดเจน การถอดรหัสที่พึ่งพา Nrf2 การสร้างไมโทคอนเดรีย การเปลี่ยนแปลง สมดุล NAD+/NADH และการส่งสัญญาณ AMPK ควรแยกเป็นคนละรายการจนกว่าจะมีการทดลองเชื่อมโยงเข้าด้วยกัน การแสดงออกที่เพิ่มขึ้นของยีนไมโทคอนเดรียหนึ่งยีนไม่ได้ยืนยันว่าเซลล์สร้างไมโทคอนเดรียที่ทำงานได้เพิ่มขึ้น
การกำจัดโปรตีนมีหลายเส้นทาง
งานวิจัยออโตฟาจีให้เซลล์ CHO ที่แสดงออกโปรตีนเทาสัมผัสเมทิลีนบลู 0.01 μM เป็นเวลาหกชั่วโมง แล้วเปรียบเทียบกับเซลล์ที่ได้รับตัวพา ตัวรายงาน LC3 แบบสีแดง/สีเขียวเรียงต่อกันช่วยแยกเวสิเคิลระยะต้นออกจากออโตไลโซโซมที่มีสภาพเป็นกรด; บาฟิโลไมซินใช้เป็นเงื่อนไขเปรียบเทียบที่ขัดขวางการไหลผ่านกระบวนการ การลดการแสดงออกของ BECN1 ทดสอบว่ากลไกออโตฟาจีมีส่วนในการลดโปรตีนเทาหรือไม่ การทดลองเหล่านี้ให้ข้อมูลมากกว่าการนับจุดที่ให้สัญญาณ LC3 เพียงอย่างเดียว เพราะจุดดังกล่าวอาจสะสมได้ทั้งเมื่อการก่อตัวเพิ่มขึ้นหรือเมื่อการกำจัดช้าลง
ในทางตรงกันข้าม งานวิจัย Hsp70 ตรวจสอบกิจกรรม ATPase และการกำจัดโปรตีนเทาที่พึ่งพาโปรตีโอโซมในระบบเซลล์อีกชนิดหนึ่ง การทดลองคอนเดนเสตในปี 2023 ถามอีกคำถามหนึ่ง คือโมเลกุลโปรตีนเทาก่อตัวเป็นหยดและเปลี่ยนสมบัติของวัสดุได้อย่างไร โปรตีนเทาทั้งหมด โปรตีนเทาที่มีหมู่ฟอสเฟต เส้นใยที่ไม่ละลาย และคอนเดนเสตคล้ายเจล เป็นตัวชี้วัดผลคนละอย่าง การรวมทั้งหมดเป็นข้อกล่าวอ้างเดียวว่า “ต้านโปรตีนเทา” ทำให้กลไกที่กำลังทดสอบถูกกลบหายไป
เลือกการทดลองถัดไปจากประเด็นที่ยังแยกแยะไม่ได้
เมื่ออ่านบทความวิจัยใหม่ ให้ดึงข้อมูลชนิดทางเคมีที่แน่นอน ความเข้มข้น ระยะเวลาสัมผัส ตัวทำละลาย เงื่อนไขแสง แบบจำลอง ตัวเปรียบเทียบ และตัวชี้วัดผล ก่อนตีความแผนภาพวิถีของงานนั้น เลือกการทดสอบให้ตรงกับข้อกล่าวอ้าง: การหายใจสำหรับอัตราการไหลของกระบวนการหายใจ ATP สำหรับความพร้อมของพลังงาน จลนพลศาสตร์เอนไซม์สำหรับการยับยั้ง และการปรับเปลี่ยนทางพันธุกรรมสำหรับการพึ่งพาวิถี
คู่มือการตอบสนองตามขนาดสาร กล่าวถึงการตอบสนองที่เปลี่ยนทิศทางตามความเข้มข้น คู่มือการต้านและส่งเสริมออกซิเดชัน แยกการวนรอบรีดอกซ์ออกจากการติดป้ายว่าเป็นสารต้านออกซิเดชันในทุกกรณี การเข้าสู่เซลล์และการแบ่งส่วนในเยื่อหุ้ม อธิบายว่าเหตุใดค่าความเข้มข้นที่ระบุในอาหารเลี้ยงเซลล์จึงไม่ได้เท่ากับการสัมผัสสารภายในเซลล์โดยอัตโนมัติ; งานวิจัย Azure B อธิบายว่าเหตุใดสีย้อมชนิดที่เกี่ยวข้องกันจึงไม่ควรถูกมองว่าใช้แทนกันได้
วรรณกรรมที่กว้างขึ้นยังครอบคลุมกิจกรรมแคสเปส เฟอร์รอปโทซิส การส่งสัญญาณการอักเสบ และ ภาวะชราภาพของเซลล์ หัวข้อเหล่านี้เป็นแนวทางที่มีประโยชน์เมื่อตัวชี้วัดผลคือการตายของเซลล์ การส่งสัญญาณไซโตไคน์ หรือการหยุดเจริญเติบโตอย่างต่อเนื่อง แต่ไม่ได้เป็นหลักฐานเพิ่มเติมว่ากลไกระดับโมเลกุลทุกอย่างเกิดขึ้นในเซลล์เดียวกันที่ความเข้มข้นเดียวกัน แผนผังนี้วางแนวทางในการสำรวจหลักฐานจากการทดลอง ไม่ได้เปลี่ยนการทดลองเหล่านั้นให้เป็นประโยชน์ทางคลินิก