
Članek
Metilensko modrilo v celični biologiji: tarče, modeli in izmerjeni učinki
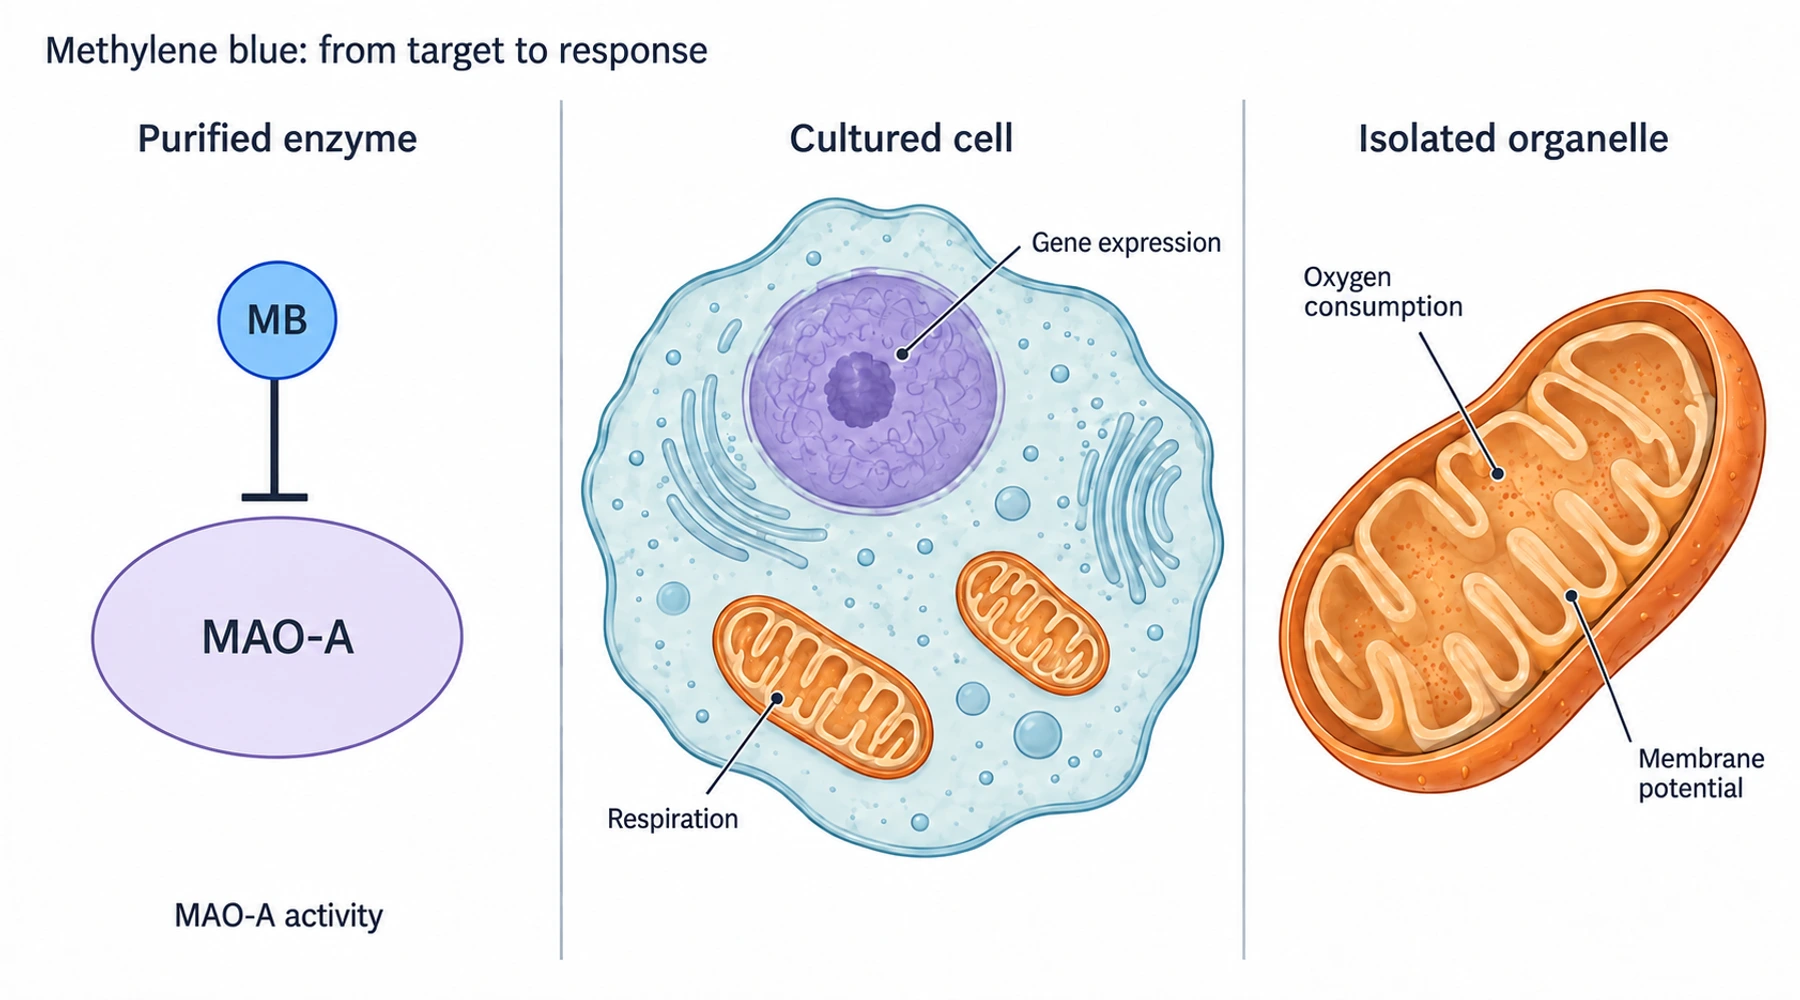
Metilensko modrilo ima več eksperimentalno podprtih molekularnih učinkov, vendar seznam imen signalnih poti zakrije, kaj je posamezni poskus dejansko ugotovil. Zaviranje prečiščenega encima, spreminjanje porabe kisika v gojenih celicah in zmanjšanje signala beljakovine v mišjih možganih so različna opažanja. Zahtevajo različne kontrole in podpirajo različne sklepe.
Ta raziskovalni pregled ta opažanja razvršča glede na proces, model in merjeni izid. Priložena naslovna slika je konceptualna ponazoritev eksperimentalnih sistemov, ne prikaz določene molekularne strukture ali mikroskopska slika. Za kemijske osnove začnite pri redoks kemiji in bioloških mehanizmih.
Najprej preberite oznake dokazov
Biokemijski dokazi temeljijo na preizkušanju določene beljakovine ali reakcije zunaj nepoškodovane celice. Z njimi je mogoče ugotoviti zaviranje ali prenos elektronov v opredeljenih pogojih. Celični dokazi vključujejo še privzem, presnovo, kompartmentalizacijo in medsebojno delovanje signalnih poti. Dokazi o odvisnosti preverjajo, ali odstranitev predlagane komponente signalne poti odpravi odziv. Dokazi na ravni organizma merijo učinke pri živali s krvnim obtokom, presnovo in več tkivi.
Te oznake opisujejo vprašanje, na katero poskus odgovarja, in ne enotne razvrstitve po moči dokazov. Poskus z izbitjem gena lahko prepozna nujno komponento signalizacije, ne da bi pokazal, da se metilensko modrilo nanjo neposredno veže. Rezultat vedenjskega poskusa na živalih lahko potrdi fenotip, ne da bi opredelil njegov molekularni vzrok.
Zemljevid molekularnih tarč s povezavami
Vsako vrstico berite vodoravno. Prvi stolpec vodi do razprave o signalni poti; povezava do študije navaja eksperimentalno podlago. To je izbran zemljevid ključnih mehanističnih izhodišč, ne izčrpen katalog vseh opisanih celičnih učinkov.
| Proces ali tarča | Eksperimentalni sistem in vrsta dokazov | Merjeni izid in razlaga |
|---|---|---|
| MAO in presnova nevrotransmiterjev | Prečiščena rekombinantna človeška MAO-A in MAO-B; biokemijska kinetika | Ramsay in sodelavci so merili zaviranje encimov. MAO-A je bila precej občutljivejša; izidov, povezanih z razpoloženjem ali serotoninom v možganih, niso merili. |
| NOS in signalizacija cGMP | Prečiščena sintaza NO, endotelijske celice, izolirane žile; biokemijski in funkcionalni testi | Mayer in sodelavci so ločeno preučili nastajanje citrulina, nastajanje cGMP in relaksacijo. Zaviranja NOS ni mogoče preimenovati v selektivno zaviranje topne gvanilat-ciklaze. |
| Mitohondrijski prenos elektronov | Transformirane mišje hipokampalne celice HT-22 in biokemijske reakcije; celični in biokemijski dokazi | Wen in sodelavci so merili porabo kisika, zakisanje, ATP in od redoks procesov odvisen prenos elektronov. Te izide so merili ločeno. |
| Obhod kompleksa III | Izolirani mitohondriji mišjih možganov z zaviralci dihanja; poskus na organelih | Študija kompleksa III z antimicinom je ugotovila, da po tej blokadi ni prišlo do obnovitve dihanja in membranskega potenciala, čeprav je po zaviranju kompleksa I prišlo do delne obnovitve. |
| Nrf2 in mitohondrijska biogeneza | Mišji embrionalni fibroblasti divjega tipa in z izbitim genom Nrf2; genetska odvisnost | Stack in sodelavci so merili transkripte antioksidativnega odziva. Odsotnost indukcije v celicah z izbitim genom podpira odvisnost od Nrf2, ne pa neposredne vezave na Nrf2. |
| Avtofagija in signalizacija mTOR | Celice jajčnika kitajskega hrčka, ki izražajo človeški tau; poskusi z reporterji in utišanjem genov | Congdon in sodelavci so preučevali reporterje LC3, fosforilacijo kinaz in tau. Utišanje BECN1 je odpravilo opaženi odziv znižanja ravni tau. |
| Ravnanje s tau in odstranjevanje beljakovin | Test s prečiščenim Hsp70 in celice HeLa, ki izražajo človeški tau; biokemijski in celični dokazi | Jinwal in sodelavci so povezali zaviranje ATPaze s proteasomsko odvisnim zmanjšanjem tau. To se razlikuje od preprečevanja sestavljanja fibril iz prečiščenega tau. |
| Nastajanje kondenzatov tau | Rekonstituirane kapljice rekombinantnega tau; ločen test citotoksičnosti na celicah SH-SY5Y | Študija faznega ločevanja iz leta 2023 je merila nastajanje kapljic in geliranje in vitro, nato pa s testom MTT ocenila viabilnost celic po izpostavitvi inkubiranim oblikam tau. Celični test ni meril nastajanja znotrajceličnih kondenzatov. |
Zemljevid molekularnih tarč za prenos ohranja povezave do primarnih študij, oznake dokazov in ključne eksperimentalne pogoje v besedilnem dokumentu za ponovno uporabo.
Kaj razlikujejo primarni poskusi
Zaviranje encimov je odvisno od pogojev testa
Študija s prečiščenimi človeškimi encimi je z analizo tesne vezave določila konstanto zaviranja MAO-A, Ki = 27 ± 3 nM. IC50 za MAO-A je v navedenih pogojih testa znašal 164 ± 8 nM. Ki in IC50 nista zamenljiva: slednji je odvisen od pogojev glede encima in substrata, uporabljenih pri merjenju polovičnega zaviranja. Nobena od teh številk ni odmerek za človeka ali napovedana koncentracija v tkivu.
Podobno povedna je primerjava z NOS. Prečiščena sintaza NO je pri 30 μM metilenskega modrila izgubila vso izmerjeno aktivnost tvorbe citrulina. V istem članku je gvanilat-ciklaza, stimulirana s S-nitrozoglutationom, za polovično zaviranje potrebovala približno 60 μM. Znižanje celičnega cGMP torej samo po sebi ne pomeni, da je mesto učinka gvanilat-ciklaza. Lahko odraža zmanjšano nastajanje NO, ki jo aktivira.
Dihanje ni sopomenka za nastajanje ATP
V študiji HT-22 so raziskovalci uporabili oligomicin, FCCP in rotenon za preučevanje dihalnega odziva. ATP so merili tudi neodvisno. Primerjalna snov FCCP je povečala porabo kisika in hkrati znižala celični ATP, kar neposredno ponazarja, zakaj samo zapis porabe kisika ne more odgovoriti na vprašanje o ATP. Poseben vodnik o porabi kisika v primerjavi z ATP sledi temu razlikovanju.
Poznejše delo z izoliranimi mitohondriji mišjih možganov je uporabljalo substrate, med njimi piruvat in malat. Pri 1 μM je metilensko modrilo delno obnovilo dihanje, zavrto z rotenonom, po antimicinu pa je imelo le majhen učinek. Ta rezultat omejuje splošno trditev, da barvilo vedno obide oba kompleksa, I in III. Ob vsakem predlaganem diagramu prenosa elektronov je treba navesti vrsto organizma, mitohondrijski pripravek, substrate, zaviralce in pogoje testa.
Genski odziv ni dokaz neposrednega delovanja na tarčo
V poskusu z Nrf2 je metilensko modrilo pri 0.1, 1 in 10 μM povečalo raven transkripta HO1 v mišjih embrionalnih fibroblastih divjega tipa, medtem ko v celicah z izbitim genom Nrf2 odziva ni bilo. Ta genetska primerjava pove več o odvisnosti od signalne poti kot samo merjenje izražanja v obravnavanih celicah.
Kljub temu začetni molekularni dogodek ostaja nepojasnjen. Od Nrf2 odvisna transkripcija, mitohondrijska biogeneza, spremenjeno ravnovesje NAD+/NADH in signalizacija AMPK morajo ostati ločene postavke, dokler jih poskus ne poveže. Povečano izražanje enega mitohondrijskega gena ne dokazuje, da so celice ustvarile več funkcionalnih mitohondrijev.
Odstranjevanje beljakovin poteka po več poteh
Študija avtofagije je celice CHO, ki izražajo tau, za šest ur izpostavila 0.01 μM metilenskega modrila in jih primerjala s celicami, izpostavljenimi vehiklu. Tandemski rdeči/zeleni reporter LC3 je pomagal razlikovati zgodnejše vezikle od zakisanih avtolizosomov; bafilomicin je zagotovil primerjalne pogoje z oviranim avtofagijskim pretokom. Z utišanjem BECN1 so preverili, ali avtofagijski aparat prispeva k zmanjšanju tau. Ti poskusi presegajo zgolj štetje LC3-pozitivnih pik, ki se lahko kopičijo bodisi ob povečanem nastajanju bodisi ob upočasnjenem odstranjevanju.
Nasprotno je študija Hsp70 v drugem celičnem sistemu preučevala aktivnost ATPaze in proteasomsko odvisno odstranjevanje tau. Poskusi s kondenzati iz leta 2023 so obravnavali še drugo vprašanje: kako molekule tau tvorijo kapljice in spreminjajo svoje materialne lastnosti. Skupni tau, fosforilirani tau, netopne fibrile in gelu podobni kondenzati so različni merjeni izidi. Njihovo združevanje v eno trditev o delovanju »proti tau« zabriše mehanizem, ki ga poskus preverja.
Naslednji poskus izberite glede na manjkajoče razlikovanje
Pri novem članku pred razlago diagrama signalnih poti izluščite natančno kemijsko identiteto, koncentracijo, trajanje izpostavitve, topilo, pogoje osvetlitve, model, primerjalno kontrolo in merjeni izid. Test uskladite s trditvijo: dihanje z dihalnim pretokom, ATP z razpoložljivostjo energije, encimsko kinetiko z zaviranjem in genetsko spremembo z odvisnostjo od signalne poti.
Vodnik po razmerju med odmerkom in odzivom obravnava odzive, ki pri različnih koncentracijah spremenijo smer. Vodnik po antioksidativnem in prooksidativnem delovanju ločuje redoks kroženje od splošne oznake antioksidanta. Vstop v celice in porazdeljevanje v membranah pojasnjuje, zakaj nominalna koncentracija v gojišču ne pomeni samodejno znotrajcelične izpostavljenosti; raziskave Azure B pa pojasnjujejo, zakaj sorodnih oblik barvila ne smemo obravnavati kot zamenljivih.
Širša literatura obravnava tudi aktivnost kaspaz, feroptozo, vnetno signalizacijo in celično senescenco. To so koristne poti raziskovanja, kadar je merjeni izid celična smrt, citokinska signalizacija ali trajna zaustavitev rasti. Niso pa dodaten dokaz, da se vsi molekularni učinki pojavijo v isti celici pri isti koncentraciji. Ta zemljevid začrta poti skozi eksperimentalne dokaze; teh poskusov ne pretvarja v klinične koristi.