
Макала
Клетка биологиясындагы метилен көгү: буталар, моделдер жана өлчөнгөн таасирлер
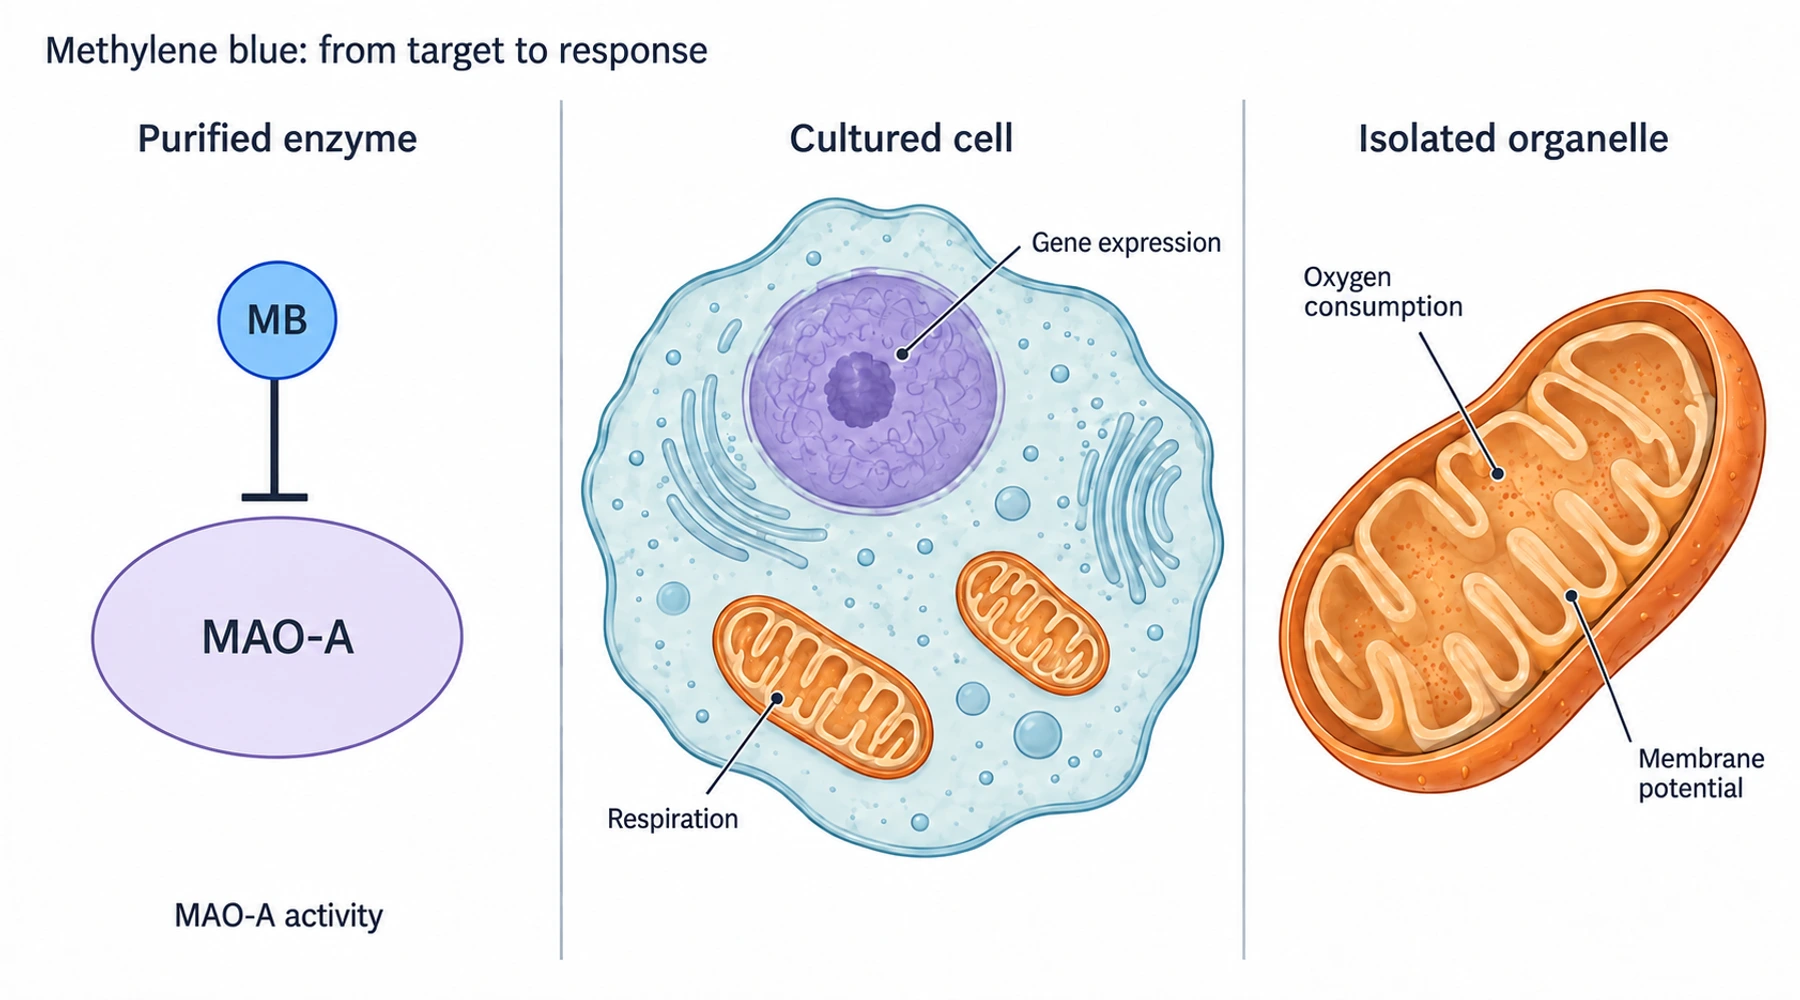
Метилен көгүнүн эксперименттер менен тастыкталган бир нече молекулалык таасири бар, бирок биологиялык жолдордун аталыштарын тизмектөө ар бир эксперимент чынында эмнени аныктаганын бүдөмүктөтөт. Тазаланган ферментти басаңдатуу, өстүрүлгөн клеткалардагы кычкылтек керектөөнү өзгөртүү жана чычкандын мээсиндеги белоктук сигналды азайтуу — ар башка байкоолор. Алар ар башка контролдорду талап кылат жана ар башка тыянактарды негиздейт.
Бул изилдөө көрсөткүчү ошол байкоолорду процесс, модель жана өлчөнгөн көрсөткүч боюнча уюштурат. Тиркелген мукаба сүрөтү — эксперименттик системалардын концептуалдык иллюстрациясы; ал молекулалык түзүлүштү аныктоонун натыйжасы же микроскопиялык сүрөт эмес. Негизги химияны түшүнүү үчүн кычкылдануу-калыбына келүү химиясынан жана биологиялык механизмдерден баштаңыз.
Адегенде далил түрлөрүнүн белгилерин окуңуз
Биохимиялык далилдер бүтүн клеткадан тышкары белгилүү бир белокту же реакцияны текшерет. Алар көрсөтүлгөн шарттарда басаңдатууну же электрон өткөрүүнү аныктай алат. Клеткалык далилдер клеткага сиңүүнү, зат алмашууну, клетка ичиндеги бөлүктөргө бөлүштүрүлүүнү жана өз ара аракеттенген биологиялык жолдорду кошо камтыйт. Көз карандылык далилдери болжолдонгон биологиялык жолдун бир компонентин алып салуу жоопту жок кылабы деген суроону текшерет. Организм деңгээлиндеги далилдер кан айлануусу, зат алмашуусу жана бир нече тканы бар жаныбардагы таасирлерди өлчөйт.
Бул белгилер бирдиктүү рейтингди эмес, жооп берилген суроону сүрөттөйт. Генди өчүрүү эксперименти метилен көгү сигналдык компонентке түздөн-түз байланышаарын көрсөтпөстөн эле, ошол компоненттин зарылдыгын аныктай алат. Жаныбардын жүрүм-туруму боюнча натыйжа фенотипти аныкташы мүмкүн, бирок анын молекулалык себебин ачып бербеши мүмкүн.
Шилтемелүү молекулалык буталар картасы
Ар бир сапты туурасынан окуңуз. Биринчи мамычада биологиялык жолдун талкуусуна шилтеме берилет; изилдөөгө шилтеме эксперименттик негизди көрсөтөт. Бул — механизмдердин тандалып алынган негизги далилдеринин картасы, кабарланган бардык клеткалык таасирлердин толук каталогу эмес.
| Процесс же бута | Эксперименттик система жана далил түрү | Өлчөнгөн көрсөткүч жана анын чечмелениши |
|---|---|---|
| MAO жана нейромедиаторлордун зат алмашуусу | Адамдын тазаланган рекомбинанттык MAO-A жана MAO-B ферменттери; биохимиялык кинетика | Ramsay жана кесиптештери ферменттин басаңдатылышын өлчөшкөн. MAO-A кыйла сезгич болгон; маанай же мээдеги серотонин боюнча көрсөткүч өлчөнгөн эмес. |
| NOS жана cGMP сигнал берүүсү | Тазаланган NO синтазасы, эндотелий клеткалары, бөлүнүп алынган кан тамырлар; биохимиялык жана функционалдык сыноолор | Mayer жана кесиптештери цитруллиндин түзүлүшүн, cGMP өндүрүлүшүн жана бошоңдоону өзүнчө карашкан. NOS басаңдатылышын эригич гуанилатциклазаны тандалма басаңдатуу деп кайра атоого болбойт. |
| Митохондриялык электрон ташуу | Чычкандын гиппокампынын трансформацияланган HT-22 клеткалары жана биохимиялык реакциялар; клеткалык жана биохимиялык далилдер | Wen жана кесиптештери кычкылтек керектөөнү, кычкылданууну, ATP жана кычкылдануу-калыбына келүү абалына көз каранды электрон өткөрүүнү өлчөшкөн. Бул көрсөткүчтөр өзүнчө текшерилген. |
| III комплексти айланып өтүү | Дем алуу ингибиторлору колдонулган, чычкандын мээсинен бөлүнүп алынган митохондриялар; органелла деңгээлиндеги эксперимент | III комплекс жана антимицин боюнча изилдөө I комплекс басаңдатылгандан кийин жарым-жартылай калыбына келүү болгонуна карабастан, III комплекс бөгөттөлгөндөн кийин дем алуу жана мембраналык потенциал калыбына келбегенин аныктаган. |
| Nrf2 жана митохондриялык биогенез | Чычкан эмбрионунун кадимки типтеги жана Nrf2 гени өчүрүлгөн фибробласттары; генетикалык көз карандылык | Stack жана кесиптештери антиоксиданттык жооптун транскрипттерин өлчөшкөн. Ген өчүрүлгөн клеткаларда индукциянын жок болушу Nrf2ге түз байланышууну эмес, Nrf2ге көз карандылыкты колдойт. |
| Аутофагия жана mTOR сигнал берүүсү | Адамдын tau белогун экспрессиялаган кытай хомягынын энелик безинин клеткалары; репортёрдук жана ген экспрессиясын азайтуу эксперименттери | Congdon жана кесиптештери LC3 репортёрлорун, киназалардын фосфорлануусун жана tau белогун изилдешкен. BECN1 экспрессиясын азайтуу байкалган tau төмөндөө жообун жок кылган. |
| Tau менен жүргөн процесстер жана белоктордун тазаланышы | Тазаланган Hsp70 менен сыноо жана адамдын tau белогун экспрессиялаган HeLa клеткалары; биохимиялык жана клеткалык далилдер | Jinwal жана кесиптештери ATPаза басаңдатылышын протеасомага көз каранды tau азайышы менен байланыштырган. Бул тазаланган tau фибриллаларынын чогулушуна бөгөт коюудан айырмаланат. |
| Tau конденсаттарынын түзүлүшү | Кайра түзүлгөн рекомбинанттык tau тамчылары; өзүнчө SH-SY5Y цитоуулуулук сыноосу | 2023-жылдагы фазалык бөлүнүү изилдөөсү in vitro шартында тамчылардын түзүлүшүн жана гелге айланышын өлчөп, андан кийин инкубацияланган tau формаларына дуушар болгон клеткалардын жашоого жөндөмдүүлүгүн MTT аркылуу баалаган. Клеткалык сыноо клетка ичиндеги конденсаттардын түзүлүшүн өлчөгөн эмес. |
Жүктөп алууга боло турган молекулалык буталар картасы баштапкы изилдөөлөргө шилтемелерди, далил түрлөрүнүн белгилерин жана негизги эксперименттик шарттарды кайра колдонууга жарактуу тексттик документте сактайт.
Баштапкы эксперименттер эмнелерди айырмалайт
Ферменттин басаңдатылышы сыноонун шарттарына байланыштуу
Адамдын тазаланган ферменттери боюнча изилдөө тыгыз байланышуу талдоосун колдонуп, MAO-A басаңдатуу константасын Ki = 27 ± 3 nM деп билдирген. Көрсөтүлгөн сыноо шарттарында анын MAO-A IC50 мааниси 164 ± 8 nM болгон. Ki менен IC50 бири-бирин алмаштыра албайт: экинчиси жарым-жартылай басаңдатууну өлчөөдө колдонулган фермент жана субстрат шарттарына көз каранды. Бул сандардын эч бири адамга берилүүчү доза же ткандардагы болжолдуу концентрация эмес.
NOS боюнча салыштыруу да ушундай эле маалымат берет. Тазаланган NO синтазасы метилен көгүнүн 30 μM концентрациясында цитруллин түзүү боюнча өлчөнгөн активдүүлүгүн толугу менен жоготкон. Ошол эле макалада S-нитрозоглутатион менен стимулдаштырылган гуанилатциклазаны жарым-жартылай басаңдатуу үчүн болжол менен 60 μM талап кылынган. Демек, клеткадагы cGMP азайышы өзү эле таасир гуанилатциклада болуп жатканын көрсөтпөйт. Бул аны активдештирген NO өндүрүлүшүнүн азайышын чагылдырышы мүмкүн.
Дем алуу ATP өндүрүү менен бир маанини билдирбейт
HT-22 изилдөөсүндө изилдөөчүлөр дем алуунун жүрүшүн текшерүү үчүн олигомицин, FCCP жана ротенон колдонушкан. Алар ATPни да өзүнчө өлчөшкөн. Салыштыруу үчүн колдонулган FCCP клеткадагы ATPни төмөндөтүп, ошол эле учурда кычкылтек керектөөнү көбөйткөн. Бул кычкылтек керектөөнүн графиги жалгыз өзү эмне үчүн ATP тууралуу суроого жооп бере албасын түздөн-түз көрсөтөт. Кычкылтек керектөө менен ATPнин айырмасы боюнча атайын колдонмо ушул айырманы түшүндүрөт.
Кийинчерээк чычкандын мээсинен бөлүнүп алынган митохондриялар менен жүргүзүлгөн иште пируват жана малат камтылган субстраттар колдонулган. 1 μM концентрациясында метилен көгү ротенон басаңдаткан дем алууну жарым-жартылай калыбына келтирген, бирок антимицинден кийин таасири аз болгон. Бул натыйжа боёк I жана III комплекстердин экөөнү тең дайыма айланып өтөт деген жалпы ырастоону чектейт. Сунушталган электрон өткөрүү схемасынын жанына организмдин түрү, митохондрияларды даярдоо ыкмасы, субстраттар, ингибиторлор жана сыноо шарттары да көрсөтүлүшү керек.
Гендин жообу бутага түз таасир этүүнүн далили эмес
Nrf2 экспериментинде метилен көгүнүн 0.1, 1 жана 10 μM концентрациялары чычкан эмбрионунун кадимки типтеги фибробласттарында HO1 транскриптин көбөйткөн, ал эми Nrf2 гени өчүрүлгөн клеткаларда бул жооп болгон эмес. Бул генетикалык салыштыруу зат менен иштетилген клеткалардагы экспрессияны гана өлчөөгө караганда биологиялык жолго көз карандылык тууралуу көбүрөөк маалымат берет.
Бирок ал процессти баштаган молекулалык окуяны дагы эле чечмелебейт. Nrf2ге көз каранды транскрипция, митохондриялык биогенез, NAD+/NADH тең салмактуулугунун өзгөрүшү жана AMPK сигнал берүүсү эксперимент аларды байланыштырмайынча өзүнчө каралышы керек. Бир митохондриялык гендин экспрессиясынын көбөйүшү клеткалар көбүрөөк функционалдык митохондрия өндүргөнүн далилдебейт.
Белокторду жок кылуунун бир нече жолу бар
Аутофагия изилдөөсүндө tau экспрессиялаган CHO клеткаларына алты саат бою 0.01 μM метилен көгү таасир эттирилип, алар эриткич гана берилген клеткалар менен салыштырылган. Тандемдүү кызыл/жашыл LC3 репортёру алгачкы везикулаларды кычкылданган аутолизосомалардан айырмалоого жардам берген; бафиломицин аутофагиялык агымды бузган салыштыруу шартын түзгөн. BECN1 экспрессиясын азайтуу аутофагия механизми tau азайышына салым кошобу деген суроону текшерген. Бул эксперименттер LC3-оң чекиттерди жөн гана эсептөөдөн тереңирээк маалымат берет: мындай чекиттер алардын түзүлүшү көбөйгөндө да, жок кылынышы жайлаганда да топтолушу мүмкүн.
Ал эми Hsp70 изилдөөсү башка клеткалык системада ATPаза активдүүлүгүн жана протеасомага көз каранды tau тазаланышын караган. 2023-жылдагы конденсат эксперименттери башка суроону койгон: tau молекулалары кантип тамчыларды түзүп, алардын материалдык касиеттерин өзгөртөт? Жалпы tau, фосфорланган tau, эрибеген фибриллалар жана гелге окшош конденсаттар — өз-өзүнчө көрсөткүчтөр. Аларды бир «tauга каршы» ырастоого бириктирүү текшерилип жаткан механизмдин айырмасын жок кылат.
Кийинки экспериментти жетишпеген айырманы аныктоо үчүн тандаңыз
Жаңы макаладагы биологиялык жолдун схемасын чечмелөөдөн мурун заттын так химиялык курамын, концентрациясын, таасир этүү узактыгын, эриткичти, жарыктандыруу шарттарын, моделди, салыштыруу вариантын жана өлчөнгөн көрсөткүчтү бөлүп алыңыз. Сыноону ырастоого ылайык келтириңиз: дем алууну — дем алуу агымына, ATPни — энергиянын жеткиликтүүлүгүнө, ферменттик кинетиканы — басаңдатууга, генетикалык өзгөртүүнү — биологиялык жолго көз карандылыкка.
Доза–жооп колдонмосу концентрация өзгөргөндө багыты алмашкан жоопторду карайт. Антиоксиданттык жана прооксиданттык таасирлер боюнча колдонмо кычкылдануу-калыбына келүү циклин жалпы антиоксидант деген мүнөздөмөдөн айырмалайт. Клеткага кирүү жана мембранага бөлүштүрүлүү чөйрөдөгү номиналдык концентрация эмне үчүн автоматтык түрдө клетка ичиндеги таасир деңгээлине барабар эмес экенин түшүндүрөт; Azure B боюнча изилдөөлөр тектеш боёк формаларын эмне үчүн бири-бирин алмаштыруучу катары кароого болбосун түшүндүрөт.
Кеңири адабияттарда каспаза активдүүлүгү, ферроптоз, сезгенүү сигнал берүүсү жана клеткалык карылык да камтылат. Өлчөнгөн көрсөткүч клетканын өлүмү, цитокиндик сигнал берүү же өсүүнүн туруктуу токтошу болгондо, булар изилдөөнүн пайдалуу багыттары болот. Алар ар бир молекулалык таасир бир эле клеткада бирдей концентрацияда болот деген кошумча далил эмес. Бул карта эксперименттик далилдер аркылуу изилдөө багыттарын көрсөтөт; ал ошол эксперименттерди клиникалык пайдага айландырбайт.