
Članak
Metilensko modrilo u staničnoj biologiji: mete, modeli i izmjereni učinci
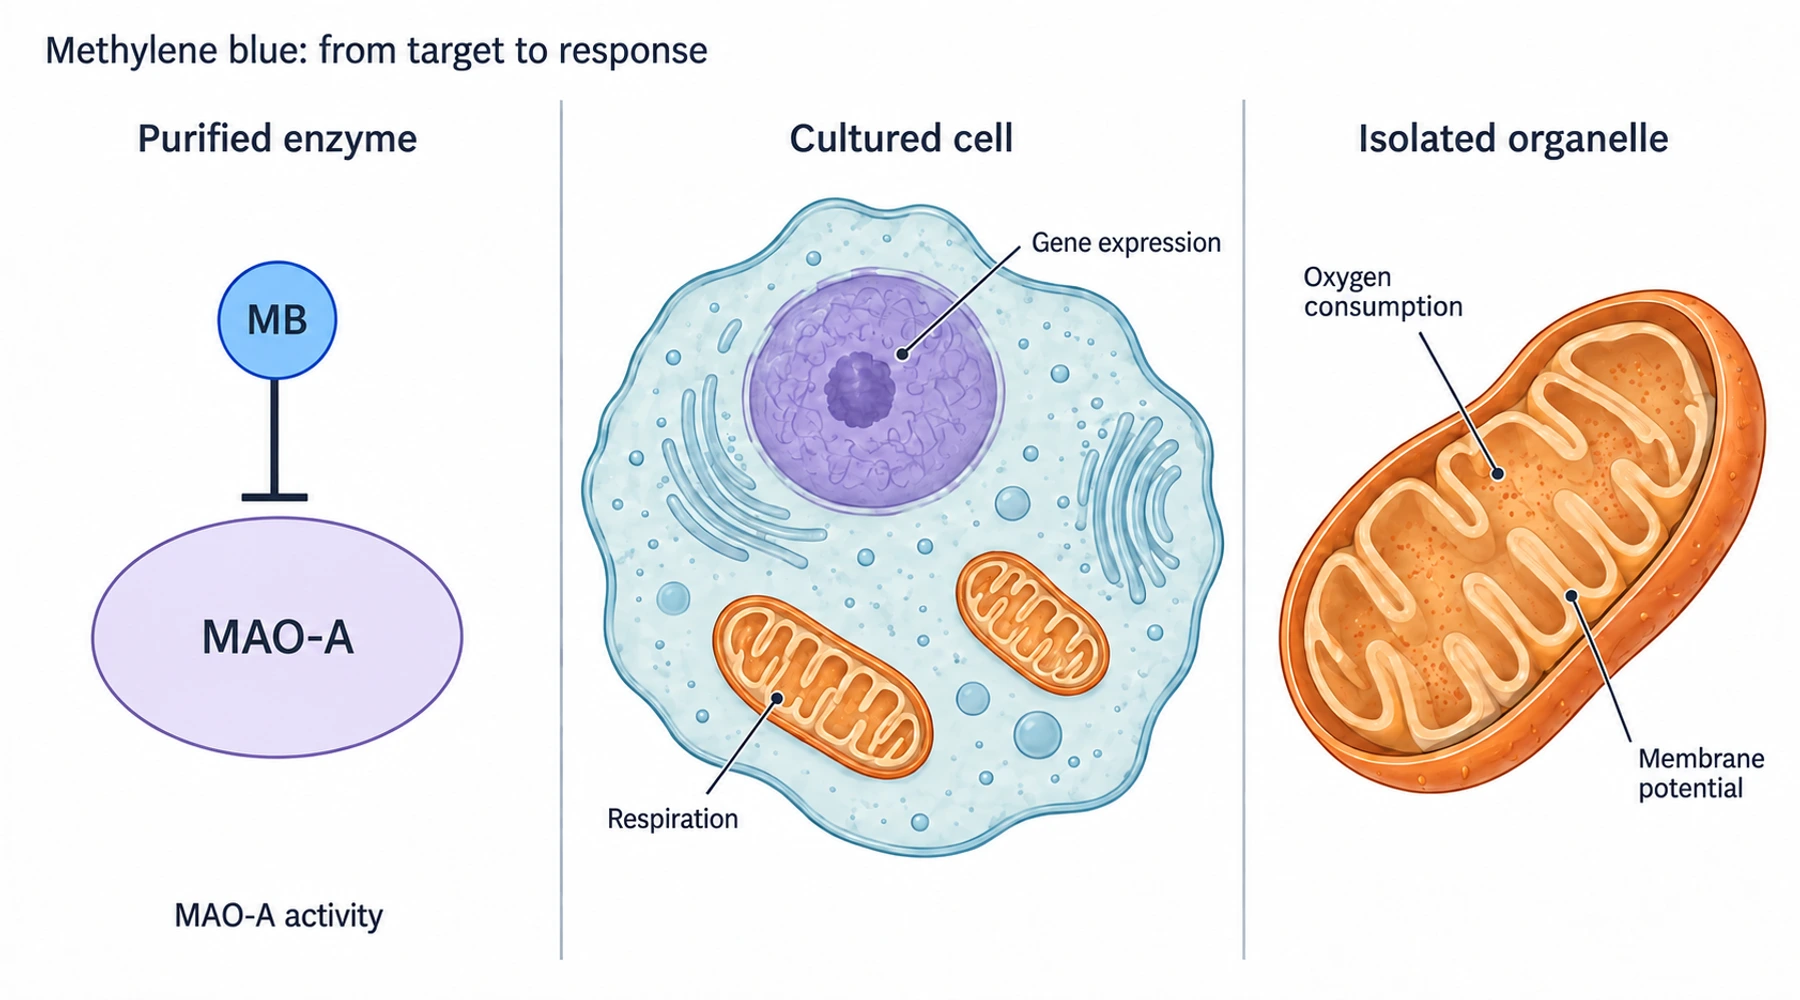
Metilensko modrilo ima nekoliko eksperimentalno potkrijepljenih molekularnih djelovanja, no popis naziva putova prikriva što je svaki pokus zapravo utvrdio. Inhibicija pročišćenog enzima, promjena potrošnje kisika u stanicama u kulturi i smanjenje proteinskog signala u mišjem mozgu različita su opažanja. Zahtijevaju različite kontrole i podupiru različite zaključke.
Ovaj pregled istraživanja razvrstava ta opažanja prema procesu, modelu i ishodu. Prateća naslovna slika konceptualni je prikaz eksperimentalnih sustava, a ne rezultat određivanja molekularne strukture ili mikroskopska snimka. Za temeljnu kemiju počnite s redoks kemijom i biološkim mehanizmima.
Najprije pročitajte oznake vrsta dokaza
Biokemijski dokazi ispituju određeni protein ili reakciju izvan cjelovite stanice. Mogu utvrditi inhibiciju ili prijenos elektrona u zadanim uvjetima. Stanični dokazi uključuju unos, metabolizam, kompartmentalizaciju i međudjelovanje putova. Dokazi o ovisnosti ispituju ukida li uklanjanje pretpostavljene sastavnice puta odgovor. Dokazi na razini organizma mjere učinke u životinji s krvotokom, metabolizmom i više tkiva.
Te oznake opisuju pitanje na koje je odgovoreno, a ne jedinstvenu ljestvicu vrijednosti dokaza. Pokus s inaktivacijom gena može utvrditi nužnu signalnu sastavnicu, a da pritom ne pokaže da se metilensko modrilo izravno veže na nju. Rezultat ispitivanja ponašanja životinje može utvrditi fenotip, a da ne otkrije njegov molekularni uzrok.
Mapa molekularnih meta s poveznicama
Svaki redak čitajte vodoravno. Prvi stupac vodi na raspravu o putu; poveznica na istraživanje označava eksperimentalnu osnovu. Ovo je odabrana mapa ključnih mehanističkih nalaza, a ne iscrpan katalog svih prijavljenih staničnih učinaka.
| Proces ili meta | Eksperimentalni sustav i vrsta dokaza | Izmjereni ishod i tumačenje |
|---|---|---|
| MAO i metabolizam neurotransmitera | Pročišćeni rekombinantni ljudski MAO-A i MAO-B; biokemijska kinetika | Ramsay i suradnici mjerili su inhibiciju enzima. MAO-A bio je znatno osjetljiviji; nisu mjereni ishodi povezani s raspoloženjem ili serotoninom u mozgu. |
| NOS i signalizacija cGMP-om | Pročišćena NO-sintaza, endotelne stanice, izolirane krvne žile; biokemijska i funkcionalna ispitivanja | Mayer i suradnici odvojeno su ispitivali nastanak citrulina, proizvodnju cGMP-a i relaksaciju. Inhibicija NOS-a ne može se preimenovati u selektivnu inhibiciju topljive gvanilat-ciklaze. |
| Mitohondrijski prijenos elektrona | Transformirane mišje hipokampalne stanice HT-22 i biokemijske reakcije; stanični i biokemijski dokazi | Wen i suradnici mjerili su potrošnju kisika, zakiseljavanje, ATP i prijenos elektrona ovisan o redoks stanju. Ti su ishodi ispitivani zasebno. |
| Zaobilaženje kompleksa III | Izolirani mitohondriji mišjeg mozga uz inhibitore respiracije; pokus na organelima | Istraživanje kompleksa III s antimicinom utvrdilo je da se nakon te blokade nisu obnovili respiracija i membranski potencijal, unatoč djelomičnoj obnovi nakon inhibicije kompleksa I. |
| Nrf2 i mitohondrijska biogeneza | Mišji embrionalni fibroblasti divljeg tipa i s inaktiviranim genom Nrf2; genetska ovisnost | Stack i suradnici mjerili su transkripte antioksidacijskog odgovora. Izostanak indukcije u stanicama s inaktiviranim genom podupire ovisnost o Nrf2, a ne izravno vezanje na Nrf2. |
| Autofagija i signalizacija mTOR-om | Stanice jajnika kineskog hrčka koje eksprimiraju ljudski tau; pokusi s reporterima i utišavanjem gena | Congdon i suradnici ispitivali su reportere LC3, fosforilaciju kinaza i tau. Utišavanje gena BECN1 uklonilo je opaženi odgovor smanjenja tau proteina. |
| Obrada tau proteina i uklanjanje proteina | Ispitivanje pročišćenog Hsp70 i stanice HeLa koje eksprimiraju ljudski tau; biokemijski i stanični dokazi | Jinwal i suradnici povezali su inhibiciju ATPaze sa smanjenjem tau proteina ovisnim o proteasomu. To se razlikuje od sprječavanja nastanka fibrila pročišćenog tau proteina. |
| Nastanak kondenzata tau proteina | Rekonstituirane kapljice rekombinantnog tau proteina; zasebno ispitivanje citotoksičnosti na stanicama SH-SY5Y | Istraživanje faznog razdvajanja iz 2023. mjerilo je nastanak kapljica i geliranje in vitro, a zatim procijenilo vijabilnost stanica testom MTT nakon izlaganja inkubiranim oblicima tau proteina. Stanično ispitivanje nije mjerilo nastanak unutarstaničnih kondenzata. |
Mapa molekularnih meta za preuzimanje čuva poveznice na izvorna istraživanja, oznake vrsta dokaza i ključne eksperimentalne uvjete u tekstualnom dokumentu prikladnom za ponovnu uporabu.
Što izvorni pokusi razlikuju
Inhibicija enzima ovisi o kontekstu ispitivanja
Istraživanje pročišćenog ljudskog enzima navelo je konstantu inhibicije MAO-A, Ki = 27 ± 3 nM, dobivenu analizom čvrstog vezanja. IC50 za MAO-A iznosio je 164 ± 8 nM u navedenim uvjetima ispitivanja. Ki i IC50 nisu zamjenjivi: potonji ovisi o uvjetima vezanim uz enzim i supstrat koji se koriste za mjerenje polovične inhibicije. Nijedna od tih vrijednosti nije doza za čovjeka niti predviđena koncentracija u tkivu.
Usporedba s NOS-om slično je informativna. Pročišćena NO-sintaza izgubila je svu izmjerenu aktivnost stvaranja citrulina pri 30 μM metilenskog modrila. U istom radu gvanilat-ciklazi stimuliranoj S-nitrozoglutationom bilo je potrebno približno 60 μM za polovičnu inhibiciju. Stoga pad staničnog cGMP-a sam po sebi ne smješta učinak na razinu gvanilat-ciklaze. Može odražavati smanjenu proizvodnju NO-a koji je aktivira.
Respiracija nije sinonim za proizvodnju ATP-a
U istraživanju na stanicama HT-22 istraživači su koristili oligomicin, FCCP i rotenon za ispitivanje respiracijskog ponašanja. Također su neovisno mjerili ATP. Usporedna tvar FCCP povećala je potrošnju kisika uz smanjenje staničnog ATP-a, izravno pokazujući zašto sam zapis potrošnje kisika ne može odgovoriti na pitanje o ATP-u. Poseban vodič o potrošnji kisika naspram ATP-a prati tu razliku.
Kasniji rad na izoliranim mitohondrijima mišjeg mozga koristio je supstrate među kojima su bili piruvat i malat. Pri 1 μM metilensko modrilo djelomično je obnovilo respiraciju inhibiranu rotenonom, ali je imalo mali učinak nakon antimicina. Taj rezultat ograničava opću tvrdnju da bojilo uvijek zaobilazi i kompleks I i kompleks III. Vrstu, pripravak mitohondrija, supstrate, inhibitore i uvjete ispitivanja treba navesti uz svaku predloženu shemu prijenosa elektrona.
Genski odgovor nije dokaz izravnog djelovanja na metu
U pokusu s Nrf2, 0.1, 1, and 10 μM metilenskog modrila povećali su količinu transkripta HO1 u mišjim embrionalnim fibroblastima divljeg tipa, dok je odgovor izostao u stanicama s inaktiviranim genom Nrf2. Ta genetska usporedba pruža više informacija o ovisnosti o putu nego samo mjerenje ekspresije u tretiranim stanicama.
Ipak, početni molekularni događaj ostaje nerazjašnjen. Transkripcija ovisna o Nrf2, mitohondrijska biogeneza, promijenjena ravnoteža NAD+/NADH i signalizacija AMPK-om trebaju ostati zasebne stavke dok ih pokus ne poveže. Povećana ekspresija jednog mitohondrijskog gena ne dokazuje da su stanice proizvele više funkcionalnih mitohondrija.
Uklanjanje proteina odvija se različitim putovima
Istraživanje autofagije izložilo je stanice CHO koje eksprimiraju tau protein metilenskom modrilu pri 0.01 μM tijekom šest sati i usporedilo ih s kontrolom tretiranom otapalom. Tandemski crveni/zeleni reporter LC3 pomogao je razlikovati vezikule ranijih stadija od zakiseljenih autolizosoma; bafilomicin je omogućio usporedni uvjet s poremećenim autofagijskim tokom. Utišavanjem gena BECN1 ispitano je pridonosi li autofagijski aparat smanjenju tau proteina. Ti pokusi nadilaze puko brojanje LC3-pozitivnih točkica, koje se mogu nakupljati kada se njihovo stvaranje poveća ili uklanjanje uspori.
Nasuprot tome, istraživanje Hsp70 ispitivalo je aktivnost ATPaze i uklanjanje tau proteina ovisno o proteasomu u drugom staničnom sustavu. Pokusi s kondenzatima iz 2023. postavili su drukčije pitanje: kako molekule tau proteina stvaraju kapljice i mijenjaju svoja materijalna svojstva. Ukupni tau, fosforilirani tau, netopljive fibrile i kondenzati nalik gelu različiti su ishodi. Njihovim objedinjavanjem u jednu tvrdnju o „djelovanju protiv tau proteina” gubi se mehanizam koji se ispituje.
Odaberite sljedeći pokus prema razlici koju još treba razjasniti
Za novi rad izdvojite točan kemijski identitet, koncentraciju, trajanje izlaganja, otapalo, uvjete osvjetljenja, model, usporednu kontrolu i ishod prije tumačenja sheme puta. Uskladite ispitivanje s tvrdnjom: respiraciju s respiracijskim tokom, ATP s dostupnošću energije, enzimsku kinetiku s inhibicijom i genetsku perturbaciju s ovisnošću o putu.
Vodič o odnosu doze i odgovora obrađuje odgovore koji mijenjaju smjer pri različitim koncentracijama. Vodič o antioksidacijskom i prooksidacijskom djelovanju razdvaja redoks cikliranje od opće oznake antioksidansa. Ulazak u stanice i raspodjela u membranama objašnjava zašto nominalna koncentracija u mediju nije automatski jednaka unutarstaničnoj izloženosti; istraživanja Azure B objašnjavaju zašto se srodni oblici bojila ne smiju smatrati međusobno zamjenjivima.
Šira literatura također obuhvaća aktivnost kaspaza, feroptozu, upalnu signalizaciju i staničnu senescenciju. To su korisni smjerovi istraživanja kada je ishod stanična smrt, citokinska signalizacija ili trajni zastoj rasta. Nisu dodatni dokaz da se svako molekularno djelovanje događa u istoj stanici pri istoj koncentraciji. Ova mapa pokazuje putove kroz eksperimentalne dokaze; ne pretvara te pokuse u kliničke koristi.