
Артыкул
Метыленавы сіні ў клетачнай біялогіі: мішэні, мадэлі і вымераныя эфекты
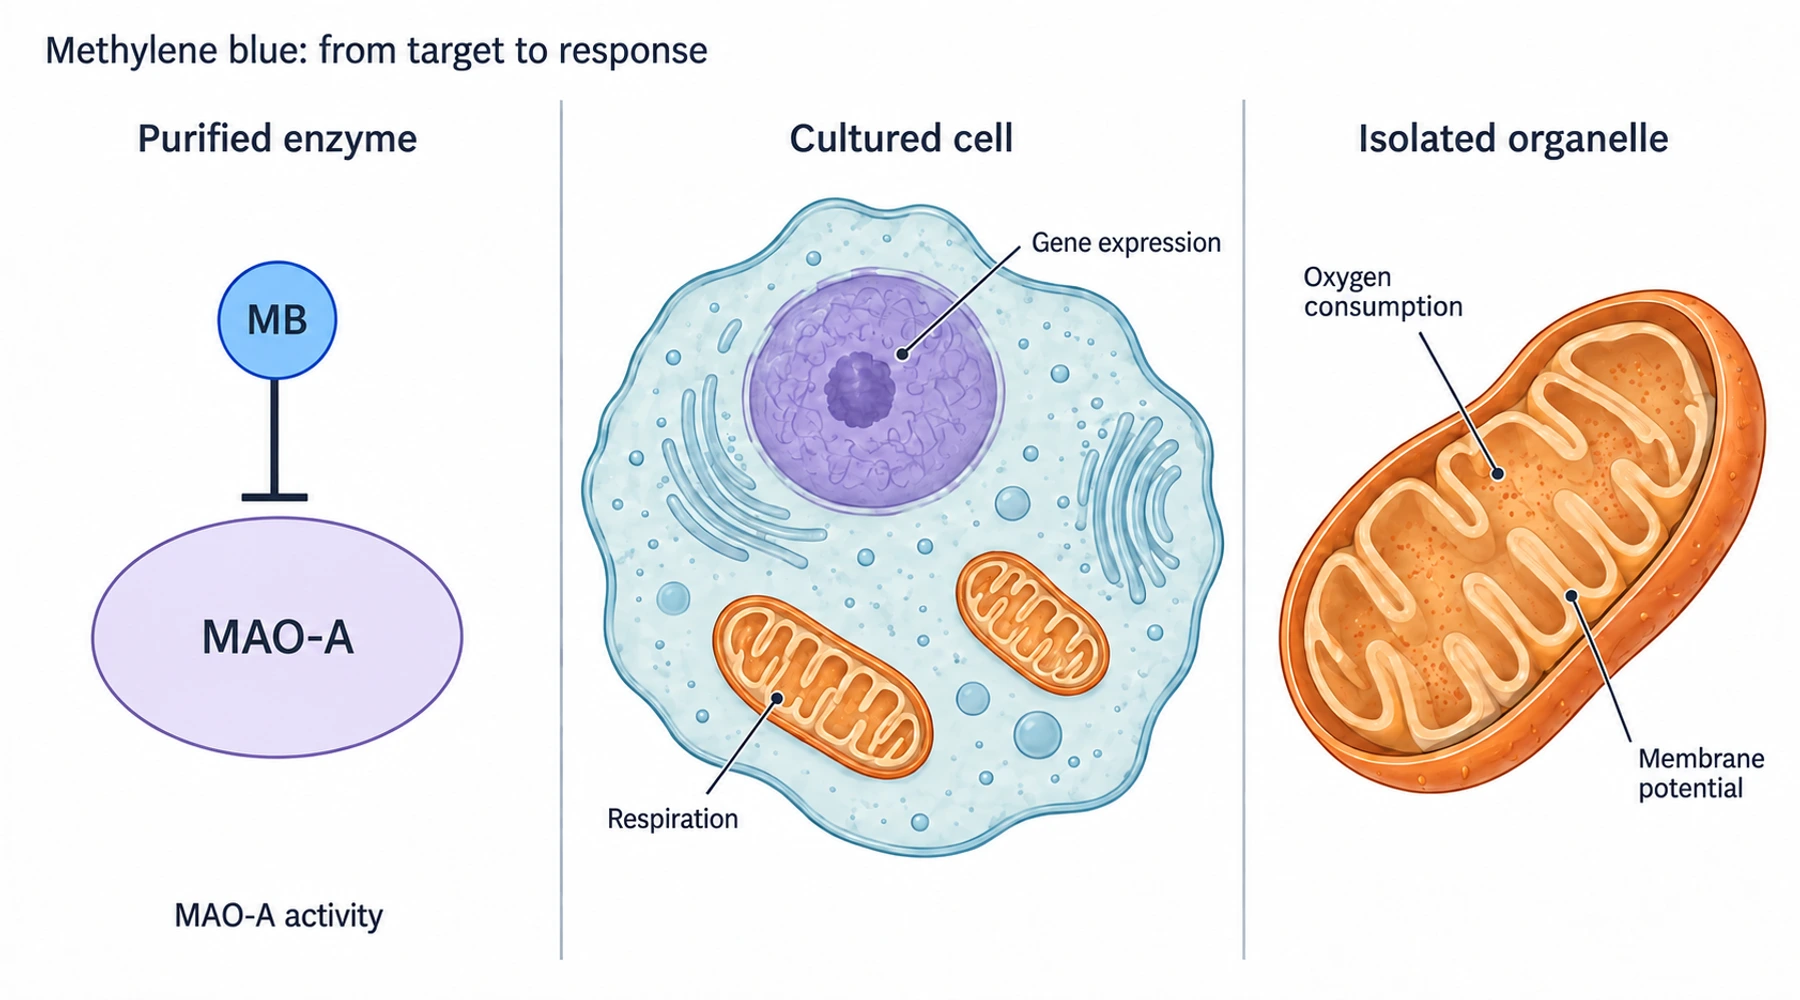
Метыленавы сіні мае некалькі эксперыментальна пацверджаных малекулярных дзеянняў, але пералік назваў шляхоў хавае тое, што насамрэч усталяваў кожны эксперымент. Інгібіраванне ачышчанага ферменту, змяненне спажывання кіслароду ў культываваных клетках і зніжэнне сігналу бялку ў мозгу мышы — розныя назіранні. Яны патрабуюць розных кантроляў і дазваляюць рабіць розныя высновы.
Гэты даследчы паказальнік упарадкоўвае такія назіранні паводле працэсу, мадэлі і канчатковага паказчыка. Суправаджальная выява вокладкі — канцэптуальная ілюстрацыя эксперыментальных сістэм, а не вынік вызначэння малекулярнай структуры ці мікраскапічны здымак. Каб разабрацца ў хімічных асновах, пачніце з акісляльна-аднаўленчай хіміі і біялагічных механізмаў.
Спачатку прачытайце пазнакі доказаў
Біяхімічныя доказы атрымліваюць, даследуючы пэўны бялок або рэакцыю па-за цэласнай клеткай. Яны могуць пацвердзіць інгібіраванне або перанос электронаў у зададзеных умовах. Клетачныя доказы дадаюць паглынанне, метабалізм, размеркаванне па клетачных кампартментах і ўзаемадзеянне шляхоў. Доказы залежнасці паказваюць, ці знікае адказ пры выдаленні меркаванага кампанента шляху. Доказы на ўзроўні арганізма вымяраюць эфекты ў жывёлы з кровазваротам, метабалізмам і рознымі тканкамі.
Гэтыя пазнакі апісваюць пытанне, на якое атрыманы адказ, а не адзіную іерархію. Эксперымент з накаўтам гена можа выявіць неабходны кампанент сігнальнага шляху, не паказваючы, што метыленавы сіні непасрэдна звязваецца з гэтым кампанентам. Вынік паводзіннага эксперыменту на жывёле можа ўсталяваць фенатып, не вызначаючы яго малекулярную прычыну.
Карта малекулярных мішэняў са спасылкамі
Чытайце кожны радок па гарызанталі. Першы слупок вядзе да абмеркавання шляху; спасылка на даследаванне паказвае эксперыментальную аснову. Гэта выбарачная карта ключавых механістычных дадзеных, а не вычарпальны каталог усіх апісаных клетачных эфектаў.
| Працэс або мішэнь | Эксперыментальная сістэма і тып доказаў | Вымераны паказчык і інтэрпрэтацыя |
|---|---|---|
| MAO і метабалізм нейрамедыятараў | Ачышчаныя рэкамбінантныя MAO-A і MAO-B чалавека; біяхімічная кінетыка | Рамсай і калегі вымяралі інгібіраванне ферментаў. MAO-A была значна больш адчувальнай; паказчыкі настрою або ўзроўню сератаніну ў мозгу не вымяраліся. |
| NOS і сігналізацыя cGMP | Ачышчаная NO-сінтаза, эндатэліяльныя клеткі, ізаляваныя сасуды; біяхімічныя і функцыянальныя аналізы | Маер і калегі асобна даследавалі ўтварэнне цытруліну, выпрацоўку cGMP і расслабленне. Інгібіраванне NOS нельга называць селектыўным інгібіраваннем растваральнай гуанілілцыклазы. |
| Мітахандрыяльны перанос электронаў | Трансфармаваныя клеткі гіпакампа мышы HT-22 і біяхімічныя рэакцыі; клетачныя і біяхімічныя доказы | Вэнь і калегі вымяралі спажыванне кіслароду, падкісленне, ATP і перанос электронаў, залежны ад акісляльна-аднаўленчых працэсаў. Гэтыя паказчыкі даследаваліся асобна. |
| Абыход комплексу III | Ізаляваныя мітахондрыі мозгу мышы з інгібітарамі дыхання; эксперымент на арганелах | У даследаванні комплексу III з антыміцынам выявілі, што пасля такой блакады дыханне і мембранны патэнцыял не аднаўляліся, нягледзячы на частковае аднаўленне пасля інгібіравання комплексу I. |
| Nrf2 і мітахандрыяльны біягенез | Эмбрыянальныя фібрабласты мышы дзікага тыпу і з накаўтам Nrf2; генетычная залежнасць | Стэк і калегі вымяралі транскрыпты антыаксідантнага адказу. Адсутнасць індукцыі ў клетках з накаўтам пацвярджае залежнасць ад Nrf2, а не прамое звязванне з Nrf2. |
| Аўтафагія і сігналізацыя mTOR | Клеткі яечнікаў кітайскага хамяка, якія экспрэсуюць чалавечы тау-бялок; эксперыменты з рэпарцёрамі і накдаўнам | Конгдан і калегі даследавалі рэпарцёры LC3, фасфарыляванне кіназ і тау-бялок. Накдаўн BECN1 ліквідаваў назіраны адказ у выглядзе зніжэння ўзроўню тау-бялку. |
| Апрацоўка тау-бялку і выдаленне бялкоў | Аналіз ачышчанага Hsp70 і клеткі HeLa, якія экспрэсуюць чалавечы тау-бялок; біяхімічныя і клетачныя доказы | Джынвал і калегі звязалі інгібіраванне ATPазы з пратэасомазалежным зніжэннем узроўню тау-бялку. Гэта адрозніваецца ад прадухілення зборкі фібрыл ачышчанага тау-бялку. |
| Утварэнне кандэнсатаў тау-бялку | Кроплі рэкамбінантнага тау-бялку ў рэканструяванай сістэме; асобны аналіз цытатаксічнасці на клетках SH-SY5Y | У даследаванні фазавага падзелу 2023 года вымяралі ўтварэнне кропель і гелеўтварэнне in vitro, а затым ацэньвалі жыццяздольнасць клетак метадам MTT пасля ўздзеяння інкубаваных формаў тау-бялку. Клетачны аналіз не вымяраў утварэнне ўнутрыклетачных кандэнсатаў. |
Карта малекулярных мішэняў для спампоўвання захоўвае спасылкі на першасныя даследаванні, пазнакі доказаў і ключавыя эксперыментальныя ўмовы ў тэкставым дакуменце для паўторнага выкарыстання.
Што адрозніваюць першасныя эксперыменты
Інгібіраванне ферментаў залежыць ад умоў аналізу
У даследаванні ачышчаных ферментаў чалавека паведамлялася пра канстанту інгібіравання MAO-A, Ki = 27 ± 3 nM, вызначаную з дапамогай аналізу моцнага звязвання. Значэнне IC50 для MAO-A складала 164 ± 8 nM у заяўленых умовах аналізу. Ki і IC50 не ўзаемазаменныя: апошняя залежыць ад умоў адносна ферменту і субстрату, у якіх вымяраюць палавіннае інгібіраванне. Ніводнае з гэтых значэнняў не з'яўляецца дозай для чалавека або прагназаванай канцэнтрацыяй у тканках.
Параўнанне з NOS гэтак жа інфарматыўнае. Ачышчаная NO-сінтаза страціла ўсю вымераную актыўнасць утварэння цытруліну пры 30 μM метыленавага сіняга. У той жа працы для палавіннага інгібіравання гуанілілцыклазы, стымуляванай S-нітразаглутатыёнам, патрабавалася прыблізна 60 μM. Такім чынам, зніжэнне клетачнага cGMP само па сабе не паказвае, што дзеянне адбываецца на ўзроўні гуанілілцыклазы. Яно можа адлюстроўваць зніжэнне выпрацоўкі NO, які яе актывуе.
Дыханне — не сінонім выпрацоўкі ATP
У даследаванні HT-22 навукоўцы выкарыстоўвалі алігаміцын, FCCP і ратэнон для вывучэння асаблівасцяў дыхання. Яны таксама незалежна вымяралі ATP. Выкарыстаны для параўнання FCCP павялічваў спажыванне кіслароду, адначасова зніжаючы клетачны ATP, што непасрэдна паказвае, чаму адна крывая спажывання кіслароду не можа адказаць на пытанне пра ATP. Асобны матэрыял пра спажыванне кіслароду ў параўнанні з ATP разглядае гэтае адрозненне.
У пазнейшай працы з ізаляванымі мітахондрыямі мозгу мышы выкарыстоўвалі субстраты, у тым ліку піруват і малат. Пры 1 μM метыленавы сіні часткова аднаўляў дыханне, інгібіраванае ратэнонам, але амаль не дапамагаў пасля антыміцыну. Гэты вынік абмяжоўвае ўніверсальнае сцвярджэнне, што фарбавальнік заўсёды абыходзіць і комплекс I, і комплекс III. Побач з любой прапанаванай схемай пераносу электронаў трэба ўказваць від арганізма, спосаб падрыхтоўкі мітахондрый, субстраты, інгібітары і ўмовы аналізу.
Генны адказ не даказвае непасрэднага ўзаемадзеяння з мішэнню
У эксперыменце з Nrf2 метыленавы сіні ў канцэнтрацыях 0.1, 1 і 10 μM павялічваў узровень транскрыпту HO1 у эмбрыянальных фібрабластах мышы дзікага тыпу, тады як у клетках з накаўтам Nrf2 адказ адсутнічаў. Такое генетычнае параўнанне больш інфарматыўнае адносна залежнасці ад шляху, чым вымярэнне экспрэсіі толькі ў апрацаваных клетках.
Аднак яно пакідае пачатковую малекулярную падзею нявысветленай. Nrf2-залежная транскрыпцыя, мітахандрыяльны біягенез, зменены баланс NAD+/NADH і сігналізацыя AMPK павінны заставацца асобнымі пунктамі, пакуль эксперымент не звяжа іх. Павышаная экспрэсія аднаго мітахандрыяльнага гена не даказвае, што клеткі стварылі больш функцыянальных мітахондрый.
Выдаленне бялкоў адбываецца некалькімі шляхамі
У даследаванні аўтафагіі клеткі CHO, якія экспрэсуюць тау-бялок, падвяргалі ўздзеянню 0.01 μM метыленавага сіняга на працягу шасці гадзін і параўноўвалі з кантролем з носьбітам. Тандэмны чырвона-зялёны рэпарцёр LC3 дапамагаў адрозніваць везікулы на больш ранніх стадыях ад падкісленых аўталізасом; бафіламіцын ствараў кантрасныя ўмовы з парушаным аўтафагічным патокам. Накдаўн BECN1 дазваляў праверыць, ці ўдзельнічае апарат аўтафагіі ў зніжэнні ўзроўню тау-бялку. Гэтыя эксперыменты выходзяць за межы простага падліку LC3-станоўчых кропак, якія могуць назапашвацца як пры ўзмацненні ўтварэння, так і пры запаволенні выдалення.
У адрозненне ад гэтага, даследаванне Hsp70 вывучала ATPазную актыўнасць і пратэасомазалежнае выдаленне тау-бялку ў іншай клетачнай сістэме. Эксперыменты з кандэнсатамі 2023 года ставілі яшчэ адно пытанне: як малекулы тау-бялку ўтвараюць кроплі і змяняюць свае матэрыяльныя ўласцівасці. Агульны тау-бялок, фасфарыляваны тау-бялок, нерастваральныя фібрылы і гелепадобныя кандэнсаты — розныя канчатковыя паказчыкі. Аб'яднанне іх у адно сцвярджэнне пра «дзеянне супраць тау-бялку» сцірае адрозненні паміж механізмамі, якія правяраюцца.
Выбірайце наступны эксперымент паводле таго, якое адрозненне яшчэ не высветлена
Пры чытанні новай працы выпішыце дакладную хімічную ідэнтычнасць рэчыва, канцэнтрацыю, працягласць уздзеяння, растваральнік, умовы асвятлення, мадэль, сродак параўнання і канчатковы паказчык, перш чым інтэрпрэтаваць схему шляху. Суадносьце аналіз са сцвярджэннем: дыханне — з дыхальным патокам, ATP — з даступнасцю энергіі, ферментную кінетыку — з інгібіраваннем, а генетычнае ўмяшанне — з залежнасцю ад шляху.
Матэрыял пра залежнасць адказу ад дозы разглядае адказы, кірунак якіх змяняецца пры розных канцэнтрацыях. Матэрыял пра антыаксідантнае і прааксідантнае дзеянне аддзяляе акісляльна-аднаўленчы цыкл ад універсальнага вызначэння як антыаксіданта. Пранікненне ў клетку і размеркаванне ў мембранах тлумачыць, чаму намінальная канцэнтрацыя ў асяроддзі не азначае аўтаматычна такой жа ўнутрыклетачнай экспазіцыі; даследаванні Azure B тлумачаць, чаму роднасныя формы фарбавальніка нельга лічыць узаемазаменнымі.
Больш шырокая літаратура таксама ахоплівае актыўнасць каспаз, фераптоз, запаленчую сігналізацыю і клетачнае старэнне. Гэта карысныя напрамкі, калі канчатковы паказчык — гібель клетак, цытакінавая сігналізацыя або ўстойлівае спыненне росту. Яны не служаць дадатковым доказам таго, што кожнае малекулярнае дзеянне адбываецца ў адной і той жа клетцы пры адной і той жа канцэнтрацыі. Гэтая карта пракладвае маршруты праз эксперыментальныя доказы; яна не ператварае гэтыя эксперыменты ў клінічную карысць.