
Artigo
Azul de metileno e mitocôndrias: transporte de eletrões e a evidência
Imagine duas preparações lado a lado. Ambas contêm mitocôndrias cerebrais expostas a rotenona, uma substância química que bloqueia o Complexo I da cadeia respiratória. Numa delas, o investigador adiciona com uma pipeta uma dose micromolar de azul de metileno. O consumo de oxigénio recupera parcialmente. O potencial de membrana regressa parcialmente. Uma pequena quantidade de síntese de ATP é retomada. Na cuvete ao lado, um sensor de peróxido revela a outra metade da história: a produção de peróxido de hidrogénio aumentou várias vezes, em todas as doses testadas e com todos os substratos utilizados.
Ambas as leituras estão corretas. O azul de metileno é um transportador de eletrões capaz de manter o fluxo em torno de uma secção danificada da cadeia respiratória, e esse mesmo transporte acarreta um custo em peróxido enquanto o faz. Considere simultaneamente estes dois factos e a literatura sobre a função mitocondrial do azul de metileno torna-se compreensível. Considere apenas um deles e o resultado parece um milagre ou uma ameaça, dependendo do artigo que tiver lido primeiro.
O transporte, explicado de forma simples
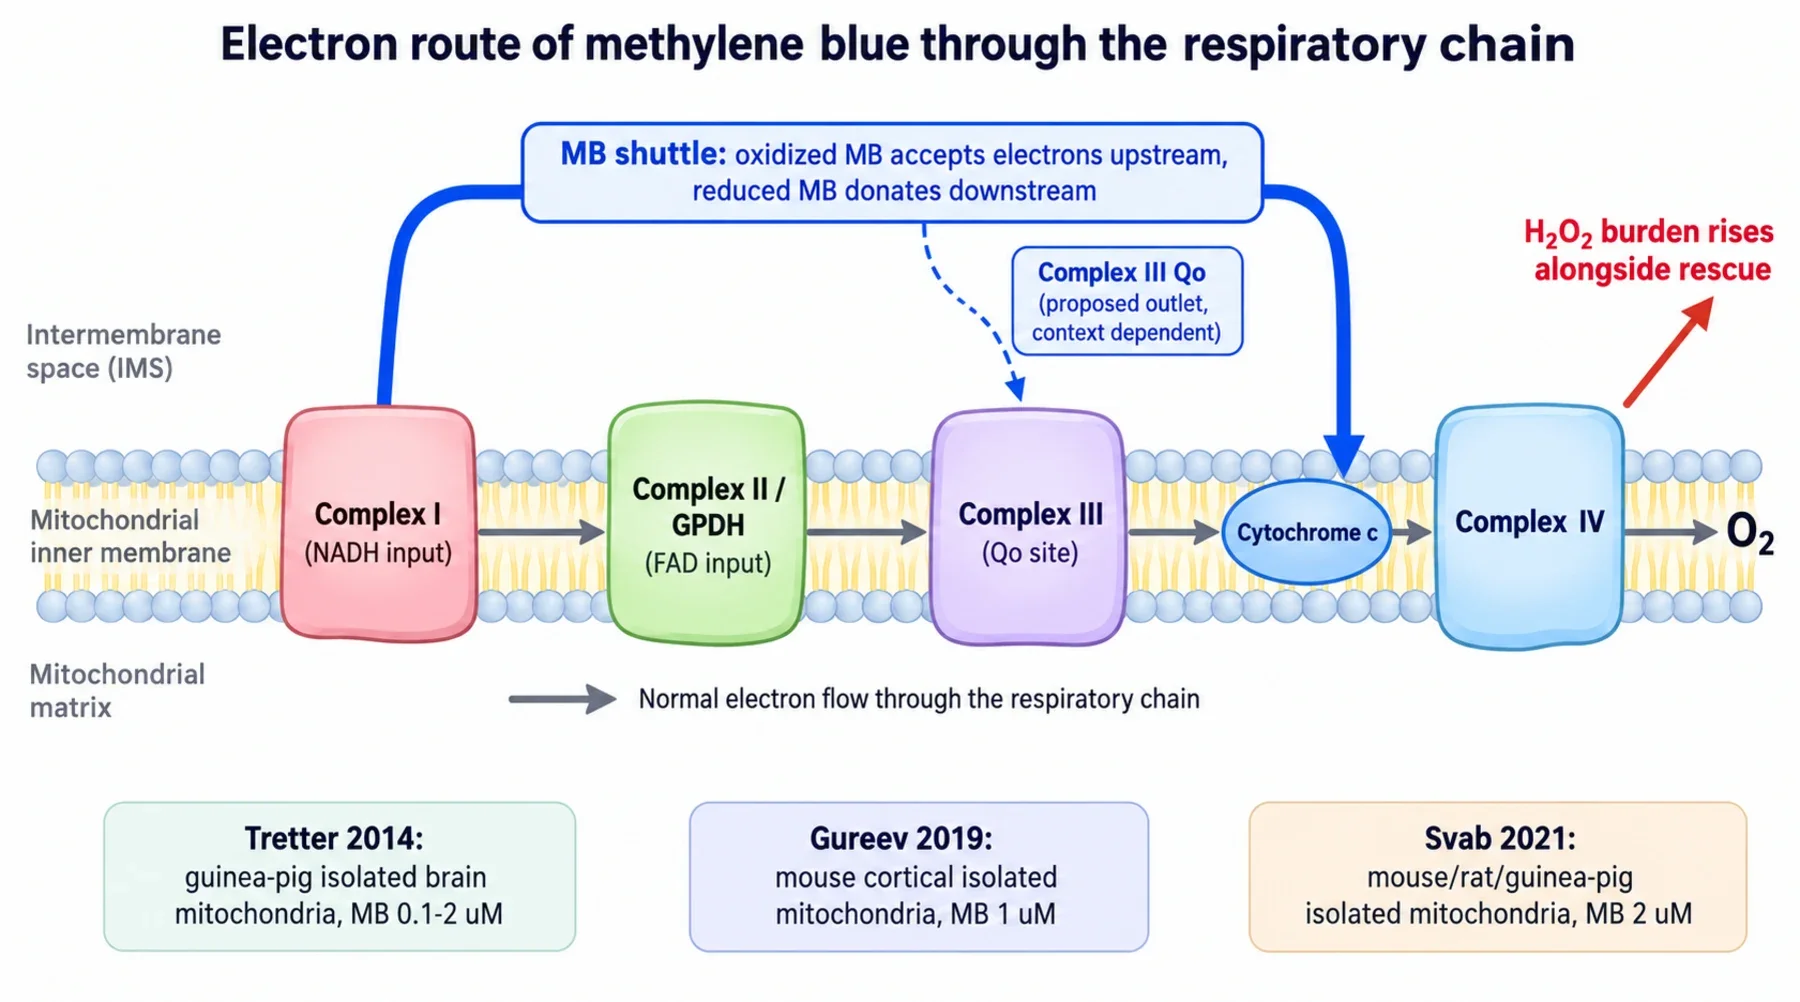
A cadeia respiratória funciona como uma linha de transmissão. Os eletrões entram pelo Complexo I (a partir de NADH) ou pelo Complexo II e enzimas de flavina relacionadas (a partir de succinato e dadores semelhantes), passam pelo Complexo III para o transportador móvel citocromo c e, depois, pelo Complexo IV até ao oxigénio. Cada transferência bombeia protões através da membrana interna, e o gradiente resultante impulsiona a síntese de ATP. Se qualquer estação for bloqueada, a linha a montante fica inativa.
O azul de metileno insere-se como um transportador paralelo. A sua forma oxidada recebe eletrões dos transportadores a montante, transformando-se na forma reduzida incolor, leucoazul de metileno, que depois transfere esses eletrões para jusante e regressa à forma azul. As duas formas são descritas em a explicação do par redox, e o comportamento mais amplo deste transporte é abordado em a explicação geral do mecanismo. A questão em aberto é onde o transportador volta a entrar na cadeia: na bolsa de ligação ao quinol do Complexo III conhecida como sítio Qo, ou diretamente no citocromo c. A via predominante depende das condições, como a análise do bypass do Complexo III descreve em detalhe.
O que três estudos em roedores mediram realmente
Os três estudos utilizaram mitocôndrias cerebrais isoladas, ou seja, organelos removidos da célula e suspensos num tampão definido. Sem células intactas, sem animais sujeitos a administração e sem participantes humanos. As concentrações referem-se ao meio em torno dos organelos, não a uma dose oral humana. Mantendo esse enquadramento, os números tornam-se claros.
O primeiro estudo, realizado em mitocôndrias cerebrais isoladas de porquinho-da-índia entre 100 nanomolar e 2 micromolar, mapeou benefício e custo na mesma preparação. Em mitocôndrias saudáveis, o corante aumentou o consumo de oxigénio em repouso, mas deixou inalterada a respiração estimulada por ADP, pelo que a produção acoplada de ATP não melhorou. Sob bloqueio do Complexo I, 2 micromolar restaurou a síntese de ATP de 46 para 93 nanomoles por minuto por miligrama, face a uma taxa normal próxima de 1109. Sob bloqueio do Complexo III, a mesma dose restaurou o ATP de cerca de 46 para 63, face a uma taxa normal próxima de 910. O potencial e a captação de cálcio recuperaram parcialmente. O bloqueio do Complexo IV por cianeto não pôde ser contornado, o que coloca a saída útil dos eletrões a montante de um Complexo IV funcional. Todas as recuperações foram estatisticamente reais e pequenas: percentagens de um único dígito da produção normal de ATP.
O segundo estudo, realizado em mitocôndrias corticais de ratinho a cerca de 1 micromolar, confirmou o bypass do Complexo I e identificou um limite no Complexo III. A rotenona reduziu a respiração de cerca de 121 para menos de 2 nanomoles de oxigénio por minuto por miligrama, e o corante elevou-a para cerca de 21, aproximadamente um sexto do normal, enquanto o potencial de membrana recuperou quase totalmente. Mas, após o bloqueio do Complexo III, nem a respiração nem o potencial recuperaram entre 1 e 5 micromolar, e o bloqueio suprimiu o sinal de peróxido induzido pelo corante. Os autores propuseram que o corante reduzido entrega os seus eletrões no sítio Qo do Complexo III: com esse sítio ocupado, o transportador não tem onde os entregar.
O terceiro estudo, realizado em mitocôndrias cerebrais de ratinho, rato e porquinho-da-índia, principalmente a 2 micromolar, testou diretamente essa divergência e concluiu que um bloqueio do Complexo III pode ser contornado. Com o inibidor do sítio Qo myxothiazol a reduzir a respiração basal em 88 por cento, o corante restaurou o consumo de oxigénio para cerca de 62 por cento da taxa sem bloqueio. Num teste direto, 0.5 micromolar reduziu citocromo c exógeno mesmo com o Complexo III bloqueado, sustentando uma via de NADH através do corante até ao citocromo c e daí para o Complexo IV. Mas a respiração recuperada comportou-se de forma anormal: a adição de ADP reduziu o consumo de oxigénio em vez de o aumentar, e o bloqueio da síntese de ATP estimulou a respiração. O potencial repolarizou apenas parcialmente. Um consumo elevado de oxigénio com acoplamento invertido não corresponde a uma produção normal de energia.
Por que razão os laboratórios discordam e o que resolve a questão
A explicação baseada na espécie falha em primeiro lugar. O terceiro grupo repetiu o trabalho em três roedores e obteve o mesmo bypass qualitativo em todos, incluindo a estirpe de ratinho em que anteriormente se tinha descrito a ausência desse bypass. O que varia, em vez disso, é a concentração (1 versus 2 micromolar), as doses dos inibidores, os tampões, os métodos de isolamento e, sobretudo, o estado energético comparado: o bypass é mais evidente antes da adição de ADP, precisamente onde surge a resposta paradoxal ao ADP. Um diagrama rigoroso deve, portanto, mostrar duas saídas dependentes das condições, uma no sítio Qo e outra no citocromo c. O transportador entrega os eletrões onde a química local o permite.
O custo em peróxido
O lado do custo é tão consistente como o lado da recuperação. No trabalho com porquinhos-da-índia, o corante aumentou a libertação de peróxido em todas as condições testadas — em repouso, durante a síntese de ATP e sob comprometimento químico — com os três substratos. Durante a síntese de ATP, a produção aumentou de cerca de 148 para mais de 1500 picomoles por minuto por miligrama a 1 micromolar, e mesmo 100 nanomolar mais do que quadruplicou o sinal. O corante também abrandou a eliminação de peróxido em cerca de 2.6 vezes, pelo que o sinal reflete simultaneamente uma formação mais rápida e uma eliminação mais lenta. A química proposta é a redução direta do oxigénio pelo corante reduzido sem superóxido detetável, embora isso continue a ser uma interpretação e não uma etapa demonstrada.
O trabalho em ratinhos torna o quadro mais complexo de forma útil. O peróxido aumentou acentuadamente com a dose, de um valor basal próximo de 76 para quase 2000 picomoles por minuto por miligrama a 2 micromolar, mas o bloqueio do Complexo III suprimiu a componente induzida pelo corante. Se o peróxido resultasse apenas da reação do corante reduzido com o oxigénio, bloquear a cadeia não deveria ter um efeito tão grande. Mas tem, o que significa que a cadeia participa. A revisão sobre efeitos antioxidantes e pró-oxidantes enquadra esta dualidade num contexto mais amplo, e a análise de oxigénio versus ATP explica por que razão os valores de oxigénio, por si só, nunca são suficientes para sustentar uma afirmação sobre energia.
Recuperação não é reparação
A expressão que deve ser abandonada é "o azul de metileno repara as mitocôndrias". Reparação implicaria uma correção duradoura: complexos reconstruídos, acoplamento que persiste depois de o composto desaparecer, recuperação em células intactas e, depois, melhoria da função num organismo vivo. Nenhum dos três artigos demonstra isso. Demonstram um redirecionamento agudo em organelos recém-isolados durante um bloqueio químico artificial, com uma produção de ATP correspondente a pequenas frações do normal e, por vezes, com um acoplamento claramente anómalo. A rotenona e a antimicina são ferramentas laboratoriais, não modelos de envelhecimento ou de doença mitocondrial humana, e nada aqui se traduz em mais energia para uma pessoa saudável, o que constitui uma questão de evidência distinta com a sua própria literatura em humanos.
Três limites mantêm rigorosa qualquer conclusão de biohacking. Primeiro, concentração no banho não é dose: 0.1 a 2 micromolar em torno de organelos isolados nada diz sobre que quantidade oral produz essa concentração livre numa mitocôndria cerebral humana, sobretudo porque o corante se acumula ou é libertado em função do próprio potencial de membrana. Segundo, oxigénio não é energia: o corante pode aumentar o consumo de oxigénio através de ciclos e fugas, bem como através de fosforilação produtiva, pelo que a respirometria sem medições de ATP e potencial não permite sustentar uma afirmação sobre energia. Terceiro, benefício e custo pertencem à mesma frase: qualquer afirmação sobre recuperação do potencial ou do ATP que omita o aumento concomitante de peróxido descreve incorretamente a experiência. Outros qualificadores relevantes incluem o equilíbrio redox de NAD, a forma da resposta à dose e o guia de seleção de ensaios.
Uma nota prática: o transporte é uma propriedade da molécula exata. Derivados desmetilados, como Azure B, também são redox ativos, mas apresentam comportamento diferente, pelo que uma solução parcialmente degradada constitui uma experiência diferente daquela realizada com o corante intacto. Esta é uma das razões para exigir a especificação farmacopéica completa e um documento de lote publicado, em vez de apenas um rastreio de metais. A química induzida pela luz acrescenta uma ressalva paralela para utilizações com iluminação, abordada em combinações com luz vermelha.
A afirmação restrita sobrevive a tudo isto e merece ser mantida: o azul de metileno pode atuar como transportador condicional de eletrões em mitocôndrias isoladas danificadas, preservando parcialmente o fluxo mediante um custo em peróxido. Tudo o que vá além disso — energia, longevidade, reparação — aguarda evidência que estes estudos nunca foram concebidos para fornecer. :::