
អត្ថបទ
មេទីឡែនប៊្លូក្នុងជីវវិទ្យាកោសិកា៖ គោលដៅ ម៉ូដែល និងផលដែលបានវាស់វែង
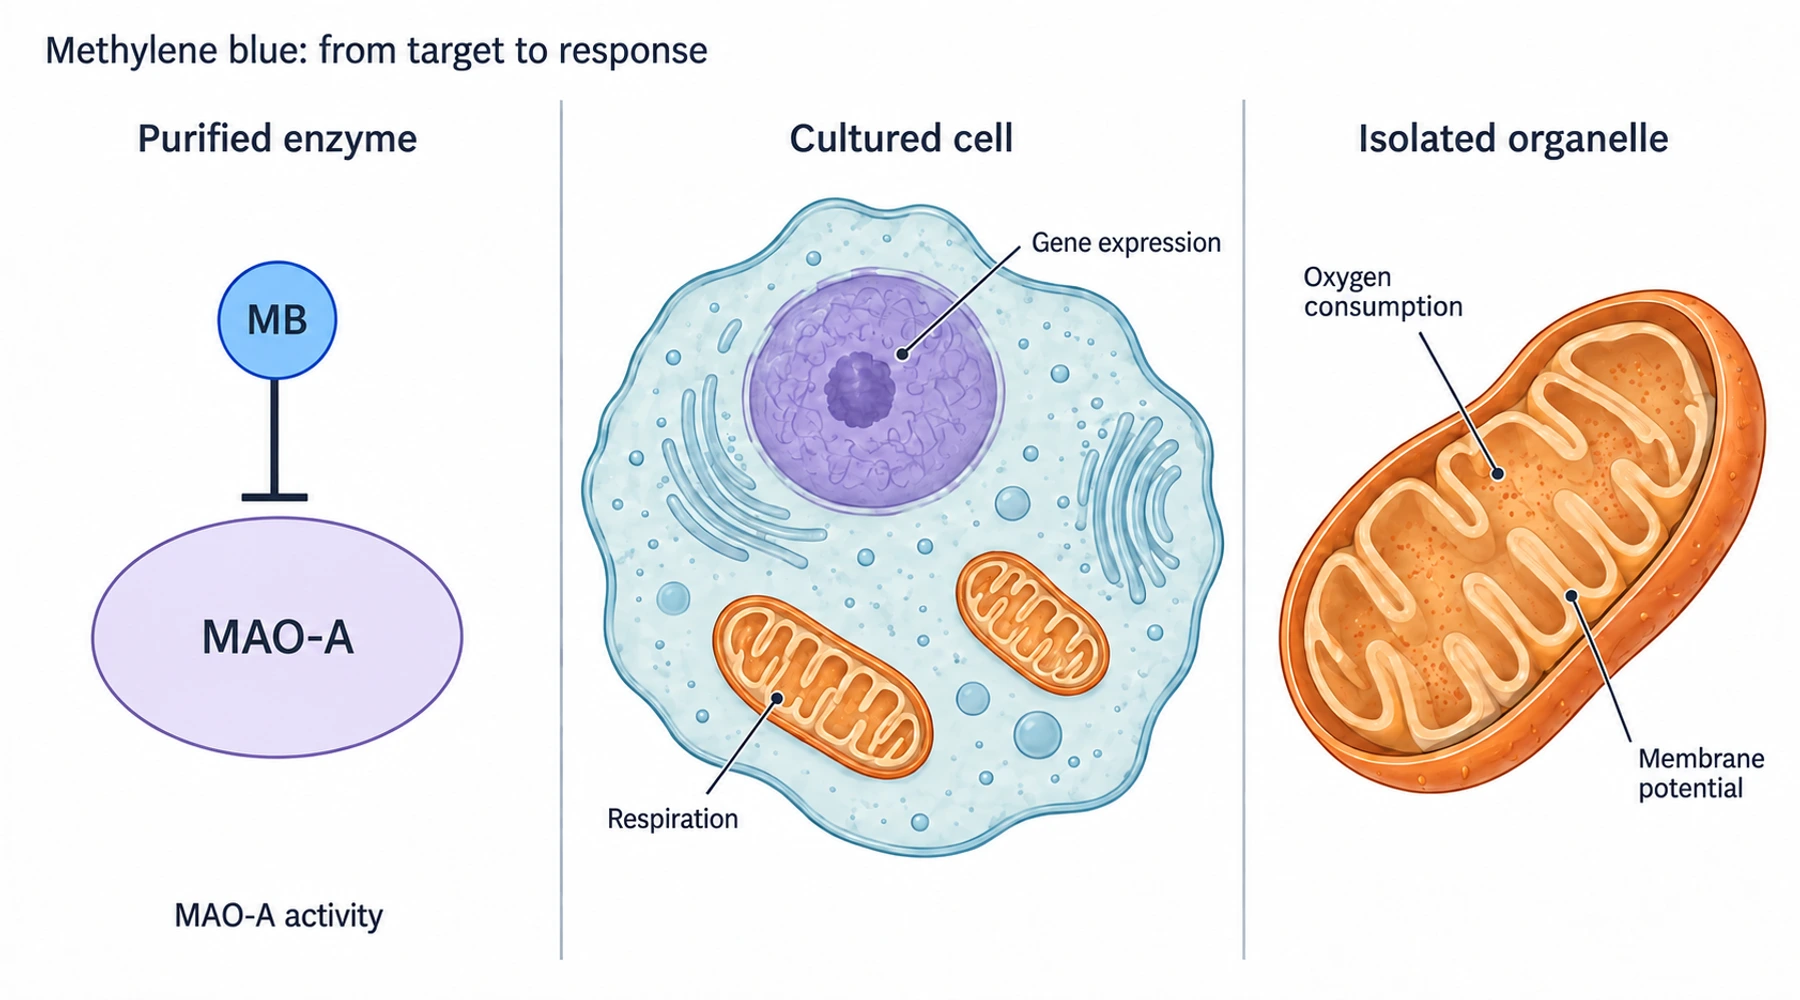
មេទីឡែនប៊្លូមានសកម្មភាពម៉ូលេគុលមួយចំនួនដែលមានការគាំទ្រពីការពិសោធន៍ ប៉ុន្តែបញ្ជីឈ្មោះផ្លូវជីវសាស្ត្រធ្វើឱ្យមិនច្បាស់ថាការពិសោធន៍នីមួយៗបានបញ្ជាក់អ្វីពិតប្រាកដ។ ការទប់ស្កាត់អង់ស៊ីមដែលបានបន្សុទ្ធ ការផ្លាស់ប្តូរការប្រើប្រាស់អុកស៊ីសែនក្នុងកោសិកាបណ្តុះ និងការបន្ថយសញ្ញាប្រូតេអ៊ីនក្នុងខួរក្បាលកណ្តុរ គឺជាការសង្កេតខុសៗគ្នា។ ការសង្កេតទាំងនេះត្រូវការលក្ខខណ្ឌត្រួតពិនិត្យខុសៗគ្នា និងគាំទ្រសេចក្តីសន្និដ្ឋានខុសៗគ្នា។
សន្ទស្សន៍ស្រាវជ្រាវនេះរៀបចំការសង្កេតទាំងនោះតាម ដំណើរការ ម៉ូដែល និងចំណុចវាស់វែង។ រូបគម្របដែលភ្ជាប់មកជាមួយគឺជារូបភាពបង្ហាញគំនិតអំពីប្រព័ន្ធពិសោធន៍ មិនមែនជាលទ្ធផលកំណត់រចនាសម្ព័ន្ធម៉ូលេគុល ឬរូបភាពពីមីក្រូទស្សន៍ទេ។ សម្រាប់គីមីវិទ្យាដែលជាមូលដ្ឋាន សូមចាប់ផ្តើមពី គីមីវិទ្យារេដុក និងយន្តការជីវសាស្ត្រ។
អានស្លាកភស្តុតាងជាមុន
ភស្តុតាងជីវគីមី សាកល្បងប្រូតេអ៊ីន ឬប្រតិកម្មដែលបានកំណត់ច្បាស់ នៅខាងក្រៅកោសិកាដែលនៅពេញលេញ។ វាអាចបញ្ជាក់ការទប់ស្កាត់ ឬការផ្ទេរអេឡិចត្រុងក្រោមលក្ខខណ្ឌជាក់លាក់។ ភស្តុតាងកម្រិតកោសិកា បន្ថែមការស្រូបចូល មេតាបូលីស ការបែងចែកក្នុងផ្នែកនានានៃកោសិកា និងផ្លូវជីវសាស្ត្រដែលមានអន្តរកម្មគ្នា។ ភស្តុតាងនៃការពឹងផ្អែក សួរថា តើការដកសមាសភាគនៃផ្លូវជីវសាស្ត្រដែលបានស្នើឡើង ធ្វើឱ្យការឆ្លើយតបបាត់បង់ឬទេ។ ភស្តុតាងកម្រិតសារពាង្គកាយ វាស់ផលក្នុងសត្វដែលមានចរន្តឈាម មេតាបូលីស និងជាលិកាច្រើនប្រភេទ។
ស្លាកទាំងនេះពិពណ៌នាអំពីសំណួរដែលត្រូវបានឆ្លើយ ជាជាងចំណាត់ថ្នាក់តែមួយ។ ការពិសោធន៍លុបហ្សែនអាចកំណត់សមាសភាគបញ្ជូនសញ្ញាដែលចាំបាច់ ដោយមិនបង្ហាញថាមេទីឡែនប៊្លូចងភ្ជាប់ផ្ទាល់ទៅសមាសភាគនោះទេ។ លទ្ធផលអាកប្បកិរិយារបស់សត្វអាចបញ្ជាក់លក្ខណៈសម្ដែងមួយ ដោយមិនកំណត់មូលហេតុម៉ូលេគុលរបស់វា។
ផែនទីគោលដៅម៉ូលេគុលដែលមានតំណភ្ជាប់
អានជួរនីមួយៗតាមទិសផ្ដេក។ ជួរឈរទីមួយភ្ជាប់ទៅការពិភាក្សាអំពីផ្លូវជីវសាស្ត្រ ហើយតំណភ្ជាប់ការសិក្សាបង្ហាញមូលដ្ឋានពិសោធន៍។ នេះជាផែនទីដែលជ្រើសរើសចំណុចយោងសំខាន់ៗនៃយន្តការ មិនមែនជាបញ្ជីពេញលេញនៃផលលើកោសិកាទាំងអស់ដែលធ្លាប់បានរាយការណ៍ទេ។
| ដំណើរការ ឬគោលដៅ | ប្រព័ន្ធពិសោធន៍ និងប្រភេទភស្តុតាង | ចំណុចវាស់វែង និងការបកស្រាយ |
|---|---|---|
| MAO និងមេតាបូលីសនៃសារធាតុបញ្ជូនសញ្ញាប្រសាទ | MAO-A និង MAO-B របស់មនុស្សដែលផលិតដោយបច្ចេកទេសរួមបញ្ចូលហ្សែន និងបានបន្សុទ្ធ; ស៊ីនេទិចជីវគីមី | Ramsay និងសហការី បានវាស់ការទប់ស្កាត់អង់ស៊ីម។ MAO-A មានភាពងាយរងឥទ្ធិពលខ្លាំងជាងច្រើន; មិនមានការវាស់ចំណុចវាស់វែងអំពីអារម្មណ៍ ឬសេរ៉ូតូនីនក្នុងខួរក្បាលទេ។ |
| NOS និងការបញ្ជូនសញ្ញា cGMP | អង់ស៊ីមសំយោគ NO ដែលបានបន្សុទ្ធ កោសិកាអង់ដូតេល្យូម សរសៃឈាមដែលបានញែកចេញ; តេស្តជីវគីមី និងមុខងារ | Mayer និងសហការី បានបែងចែកការបង្កើតស៊ីទ្រុយលីន ការផលិត cGMP និងការបន្ធូរសរសៃឈាម។ ការទប់ស្កាត់ NOS មិនអាចប្តូរឈ្មោះទៅជាការទប់ស្កាត់អង់ស៊ីម guanylyl cyclase រលាយដោយជ្រើសរើសជាក់លាក់បានទេ។ |
| ការដឹកជញ្ជូនអេឡិចត្រុងក្នុងមីតូកុងឌ្រី | កោសិកា HT-22 នៃហ៊ីប៉ូកាំពីកណ្តុរដែលបានបម្លែង និងប្រតិកម្មជីវគីមី; ភស្តុតាងកម្រិតកោសិកា និងជីវគីមី | Wen និងសហការី បានវាស់ការប្រើប្រាស់អុកស៊ីសែន ការកើនភាពអាស៊ីត ATP និងការផ្ទេរអេឡិចត្រុងដែលពឹងផ្អែកលើរេដុក។ ចំណុចវាស់វែងទាំងនេះត្រូវបានធ្វើតេស្តដោយឡែកពីគ្នា។ |
| ការឆ្លងកាត់ដោយរំលងកុំផ្លិច III | មីតូកុងឌ្រីដែលបានញែកពីខួរក្បាលកណ្តុរ ជាមួយសារធាតុទប់ស្កាត់ដង្ហើមកោសិកា; ការពិសោធន៍លើសរីរាង្គរងកោសិកា | ការសិក្សា antimycin លើកុំផ្លិច III បានរកឃើញថា មិនអាចស្តារដង្ហើមកោសិកា និងប៉ូតង់ស្យែលភ្នាសឡើងវិញក្រោយការទប់ស្កាត់នោះ ទោះបីមានការស្តារមួយផ្នែកក្រោយការទប់ស្កាត់កុំផ្លិច I ក៏ដោយ។ |
| Nrf2 និងការបង្កើតមីតូកុងឌ្រី | កោសិកាហ្វីប្រូប្លាសនៃអំប្រ៊ីយ៉ុងកណ្តុរប្រភេទធម្មតា និងប្រភេទលុបហ្សែន Nrf2; ការពឹងផ្អែកលើហ្សែន | Stack និងសហការី បានវាស់សំណៅចម្លង RNA នៃការឆ្លើយតបប្រឆាំងអុកស៊ីតកម្ម។ ការបាត់បង់ការជំរុញក្នុងកោសិកាដែលលុបហ្សែន គាំទ្រការពឹងផ្អែកលើ Nrf2 មិនមែនការចងភ្ជាប់ផ្ទាល់ទៅ Nrf2 ទេ។ |
| អូតូផាជី និងការបញ្ជូនសញ្ញា mTOR | កោសិកាអូវែរបស់កណ្តុរហាមស្ទ័រចិនដែលបញ្ចេញ tau របស់មនុស្ស; ការពិសោធន៍សញ្ញារាយការណ៍ និងការបន្ថយការបញ្ចេញហ្សែន | Congdon និងសហការី បានពិនិត្យសញ្ញារាយការណ៍ LC3 ការភ្ជាប់ក្រុមផូស្វាតទៅគីណាស និង tau។ ការបន្ថយការបញ្ចេញ BECN1 បានធ្វើឱ្យការឆ្លើយតបបន្ថយ tau ដែលបានសង្កេតឃើញបាត់បង់។ |
| ការគ្រប់គ្រង tau និងការកម្ចាត់ប្រូតេអ៊ីន | តេស្ត Hsp70 ដែលបានបន្សុទ្ធ និងកោសិកា HeLa ដែលបញ្ចេញ tau របស់មនុស្ស; ភស្តុតាងជីវគីមី និងកម្រិតកោសិកា | Jinwal និងសហការី បានភ្ជាប់ការទប់ស្កាត់ ATPase ជាមួយការបន្ថយ tau ដែលពឹងផ្អែកលើប្រូតេអាសូម។ នេះខុសពីការរារាំងការផ្គុំសរសៃ tau ដែលបានបន្សុទ្ធ។ |
| ការបង្កើតកំណកប្រមូលផ្ដុំ tau | ដំណក់ tau ដែលផលិតដោយបច្ចេកទេសរួមបញ្ចូលហ្សែន និងបានរៀបចំឡើងវិញ; តេស្តពុលកោសិកា SH-SY5Y ដាច់ដោយឡែក | ការសិក្សាបំបែកផាសឆ្នាំ 2023 បានវាស់ការបង្កើតដំណក់ និងការកកជាជែលនៅក្រៅសារពាង្គកាយ បន្ទាប់មកវាយតម្លៃភាពរស់របស់កោសិកាតាម MTT ក្រោយប៉ះពាល់នឹងទម្រង់ tau ដែលបានទុកឱ្យមានប្រតិកម្មក្រោមលក្ខខណ្ឌកំណត់។ តេស្តកោសិកានេះមិនបានវាស់ការបង្កើតកំណកប្រមូលផ្ដុំក្នុងកោសិកាទេ។ |
ផែនទីគោលដៅម៉ូលេគុលដែលអាចទាញយកបាន រក្សាទុកតំណភ្ជាប់ការសិក្សាដើម ស្លាកភស្តុតាង និងលក្ខខណ្ឌពិសោធន៍សំខាន់ៗក្នុងឯកសារអត្ថបទដែលអាចប្រើឡើងវិញបាន។
អ្វីដែលការពិសោធន៍ដើមបែងចែកឱ្យច្បាស់
ការទប់ស្កាត់អង់ស៊ីមមានបរិបទនៃតេស្ត
ការសិក្សាលើអង់ស៊ីមមនុស្សដែលបានបន្សុទ្ធបានរាយការណ៍ថេរទប់ស្កាត់ MAO-A Ki = 27 ± 3 nM ដោយប្រើការវិភាគការចងភ្ជាប់ខ្លាំង។ IC50 របស់ MAO-A គឺ 164 ± 8 nM ក្រោមលក្ខខណ្ឌតេស្តដែលបានបញ្ជាក់។ Ki និង IC50 មិនអាចប្រើជំនួសគ្នាបានទេ៖ តម្លៃទីពីរពឹងផ្អែកលើលក្ខខណ្ឌអង់ស៊ីម និងស៊ុបស្ត្រាតដែលប្រើសម្រាប់វាស់ការទប់ស្កាត់ពាក់កណ្តាល។ តម្លៃទាំងពីរនេះមិនមែនជាកម្រិតប្រើប្រាស់សម្រាប់មនុស្ស ឬកំហាប់ដែលបានព្យាករណ៍ក្នុងជាលិកាទេ។
ការប្រៀបធៀប NOS ក៏ផ្តល់ព័ត៌មានប្រហាក់ប្រហែលគ្នា។ អង់ស៊ីមសំយោគ NO ដែលបានបន្សុទ្ធបានបាត់បង់សកម្មភាពបង្កើតស៊ីទ្រុយលីនដែលបានវាស់ទាំងអស់ នៅកំហាប់មេទីឡែនប៊្លូ 30 μM។ ក្នុងអត្ថបទដដែល អង់ស៊ីម guanylyl cyclase ដែលត្រូវបានជំរុញដោយ S-nitrosoglutathione ត្រូវការប្រហែល 60 μM សម្រាប់ការទប់ស្កាត់ពាក់កណ្តាល។ ដូច្នេះ ការថយចុះ cGMP ក្នុងកោសិកា មិនអាចកំណត់ដោយខ្លួនឯងថាផលកើតនៅ guanylyl cyclase ទេ។ វាអាចឆ្លុះបញ្ចាំងពីការថយចុះនៃការផលិត NO ដែលធ្វើឱ្យអង់ស៊ីមនោះសកម្ម។
ដង្ហើមកោសិកាមិនមានន័យដូចការផលិត ATP ទេ
ក្នុងការសិក្សា HT-22 អ្នកស្រាវជ្រាវបានប្រើ oligomycin, FCCP និង rotenone ដើម្បីស៊ើបអង្កេតឥរិយាបថដង្ហើមកោសិកា។ ពួកគេក៏បានវាស់ ATP ដោយឯករាជ្យផងដែរ។ FCCP ដែលប្រើសម្រាប់ប្រៀបធៀបបានបង្កើនការប្រើប្រាស់អុកស៊ីសែន ខណៈបន្ថយ ATP ក្នុងកោសិកា ដែលបង្ហាញដោយផ្ទាល់ថា ហេតុអ្វីខ្សែកោងកត់ត្រាការប្រើប្រាស់អុកស៊ីសែនមិនអាចឆ្លើយសំណួរអំពី ATP តែម្នាក់ឯងបាន។ មគ្គុទ្ទេសក៍ជាក់លាក់អំពី ការប្រើប្រាស់អុកស៊ីសែនធៀបនឹង ATP ពន្យល់បន្តអំពីភាពខុសគ្នានោះ។
ការងារក្រោយមកលើមីតូកុងឌ្រីដែលបានញែកពីខួរក្បាលកណ្តុរ បានប្រើស៊ុបស្ត្រាតរួមមាន pyruvate និង malate។ នៅ 1 μM មេទីឡែនប៊្លូបានស្តារដង្ហើមកោសិកាដែលត្រូវបានទប់ស្កាត់ដោយ rotenone មួយផ្នែក ប៉ុន្តែមានផលតិចតួចក្រោយ antimycin។ លទ្ធផលនោះកំណត់ដែននៃការអះអាងជាសកលថាសារធាតុពណ៌នេះតែងតែឆ្លងកាត់ដោយរំលងកុំផ្លិច I និង III ទាំងពីរ។ ប្រភេទសត្វ ការរៀបចំមីតូកុងឌ្រី ស៊ុបស្ត្រាត សារធាតុទប់ស្កាត់ និងលក្ខខណ្ឌតេស្ត គួរតែបង្ហាញជាមួយដ្យាក្រាមផ្ទេរអេឡិចត្រុងណាមួយដែលបានស្នើឡើង។
ការឆ្លើយតបរបស់ហ្សែនមិនមែនជាភស្តុតាងនៃការធ្វើអន្តរកម្មផ្ទាល់ជាមួយគោលដៅទេ
ក្នុងការពិសោធន៍ Nrf2 មេទីឡែនប៊្លូកំហាប់ 0.1, 1 និង 10 μM បានបង្កើនសំណៅចម្លង RNA របស់ HO1 ក្នុងកោសិកាហ្វីប្រូប្លាសនៃអំប្រ៊ីយ៉ុងកណ្តុរប្រភេទធម្មតា ខណៈការឆ្លើយតបនេះមិនមានក្នុងកោសិកាដែលលុបហ្សែន Nrf2។ ការប្រៀបធៀបហ្សែននេះផ្តល់ព័ត៌មានអំពីការពឹងផ្អែកលើផ្លូវជីវសាស្ត្រច្រើនជាងការវាស់ការបញ្ចេញហ្សែនតែក្នុងកោសិកាដែលបានទទួលសារធាតុប៉ុណ្ណោះ។
ទោះជាយ៉ាងណា វានៅតែមិនទាន់កំណត់ព្រឹត្តិការណ៍ម៉ូលេគុលដែលចាប់ផ្តើមដំណើរការនេះ។ ការចម្លងហ្សែនដែលពឹងផ្អែកលើ Nrf2 ការបង្កើតមីតូកុងឌ្រី ការផ្លាស់ប្តូរ តុល្យភាព NAD+/NADH និងការបញ្ជូនសញ្ញា AMPK គួរតែនៅជាធាតុដាច់ដោយឡែក រហូតដល់មានការពិសោធន៍ភ្ជាប់វាជាមួយគ្នា។ ការកើនឡើងនៃការបញ្ចេញហ្សែនមីតូកុងឌ្រីមួយ មិនបញ្ជាក់ថាកោសិកាបានផលិតមីតូកុងឌ្រីដែលមានមុខងារច្រើនជាងមុនទេ។
ការកម្ចាត់ប្រូតេអ៊ីនមានផ្លូវជាច្រើន
ការសិក្សាអូតូផាជីបានឱ្យកោសិកា CHO ដែលបញ្ចេញ tau ប៉ះពាល់នឹងមេទីឡែនប៊្លូ 0.01 μM រយៈពេលប្រាំមួយម៉ោង ហើយប្រៀបធៀបជាមួយកោសិកាដែលទទួលតែសារធាតុដឹកនាំ។ សញ្ញារាយការណ៍ LC3 ពណ៌ក្រហម/បៃតងដែលភ្ជាប់ជាគូ បានជួយបែងចែកថង់តូចៗនៅដំណាក់កាលដំបូងពីអូតូលីសូសូមដែលមានភាពអាស៊ីត; bafilomycin ផ្តល់លក្ខខណ្ឌផ្ទុយសម្រាប់ប្រៀបធៀប ដែលរំខានលំហូរដំណើរការនេះ។ ការបន្ថយការបញ្ចេញ BECN1 បានសាកល្បងថា តើយន្តការអូតូផាជីរួមចំណែកដល់ការបន្ថយ tau ឬទេ។ ការពិសោធន៍ទាំងនេះហួសពីការរាប់ចំណុចដែលមានសញ្ញា LC3 ប៉ុណ្ណោះ ព្រោះចំណុចទាំងនោះអាចប្រមូលផ្តុំនៅពេលការបង្កើតកើនឡើង ឬការកម្ចាត់ថយល្បឿន។
ផ្ទុយទៅវិញ ការសិក្សា Hsp70 បានពិនិត្យសកម្មភាព ATPase និងការកម្ចាត់ tau ដែលពឹងផ្អែកលើប្រូតេអាសូម ក្នុងប្រព័ន្ធកោសិកាផ្សេងមួយ។ ការពិសោធន៍កំណកប្រមូលផ្ដុំឆ្នាំ 2023 បានសួរសំណួរមួយទៀត៖ តើម៉ូលេគុល tau បង្កើតដំណក់ និងផ្លាស់ប្តូរលក្ខណៈរូបវន្តរបស់វាយ៉ាងដូចម្តេច។ tau សរុប tau ដែលបានភ្ជាប់ក្រុមផូស្វាត សរសៃតូចៗមិនរលាយ និងកំណកប្រមូលផ្ដុំដូចជែល គឺជាចំណុចវាស់វែងខុសៗគ្នា។ ការរួមបញ្ចូលវាជាការអះអាង «ប្រឆាំង tau» តែមួយ លុបបំបាត់ភាពច្បាស់លាស់នៃយន្តការដែលកំពុងត្រូវបានសាកល្បង។
ជ្រើសរើសការពិសោធន៍បន្ទាប់តាមភាពខុសគ្នាដែលមិនទាន់បានបញ្ជាក់
សម្រាប់អត្ថបទស្រាវជ្រាវថ្មី សូមស្រង់អត្តសញ្ញាណគីមីជាក់លាក់ កំហាប់ រយៈពេលប៉ះពាល់ សារធាតុរំលាយ លក្ខខណ្ឌបំភ្លឺ ម៉ូដែល សារធាតុឬលក្ខខណ្ឌប្រៀបធៀប និងចំណុចវាស់វែង មុននឹងបកស្រាយដ្យាក្រាមផ្លូវជីវសាស្ត្ររបស់វា។ ផ្គូផ្គងតេស្តទៅនឹងការអះអាង៖ ដង្ហើមកោសិកាទៅនឹងលំហូរដង្ហើមកោសិកា ATP ទៅនឹងថាមពលដែលអាចប្រើបាន ស៊ីនេទិចអង់ស៊ីមទៅនឹងការទប់ស្កាត់ និងការកែប្រែហ្សែនទៅនឹងការពឹងផ្អែកលើផ្លូវជីវសាស្ត្រ។
មគ្គុទ្ទេសក៍អំពីការឆ្លើយតបតាមកម្រិតសារធាតុ ពិភាក្សាអំពីការឆ្លើយតបដែលប្តូរទិសនៅកំហាប់ផ្សេងៗ។ មគ្គុទ្ទេសក៍អំពីសកម្មភាពប្រឆាំងអុកស៊ីតកម្ម និងជំរុញអុកស៊ីតកម្ម បែងចែកវដ្តរេដុកពីការដាក់ស្លាកប្រឆាំងអុកស៊ីតកម្មជាសកល។ ការចូលកោសិកា និងការបែងចែកចូលភ្នាស ពន្យល់ថា ហេតុអ្វីកំហាប់កំណត់ក្នុងមជ្ឈដ្ឋានបណ្តុះមិនស្មើនឹងការប៉ះពាល់ក្នុងកោសិកាដោយស្វ័យប្រវត្តិ; ការស្រាវជ្រាវ Azure B ពន្យល់ថា ហេតុអ្វីមិនគួរចាត់ទុកទម្រង់សារធាតុពណ៌ដែលពាក់ព័ន្ធគ្នាថាអាចប្រើជំនួសគ្នាបាន។
ឯកសារស្រាវជ្រាវទូលំទូលាយក៏គ្របដណ្តប់សកម្មភាពកាស្ប៉ាស ហ្វេរ៉ូបតូស៊ីស ការបញ្ជូនសញ្ញារលាក និង ភាពចាស់របស់កោសិកា។ ទាំងនេះជាផ្លូវសិក្សាដែលមានប្រយោជន៍ នៅពេលចំណុចវាស់វែងគឺការស្លាប់កោសិកា ការបញ្ជូនសញ្ញាស៊ីតូគីន ឬការឈប់លូតលាស់ជាប់លាប់។ វាមិនមែនជាភស្តុតាងបន្ថែមថាសកម្មភាពម៉ូលេគុលទាំងអស់កើតឡើងក្នុងកោសិកាតែមួយនៅកំហាប់តែមួយទេ។ ផែនទីនេះកំណត់ផ្លូវសម្រាប់ស្វែងយល់តាមភស្តុតាងពិសោធន៍; វាមិនបម្លែងការពិសោធន៍ទាំងនោះទៅជាអត្ថប្រយោជន៍គ្លីនិកទេ។