
Articolo
Gli esperimenti che collegarono il blu di metilene alla respirazione cellulare
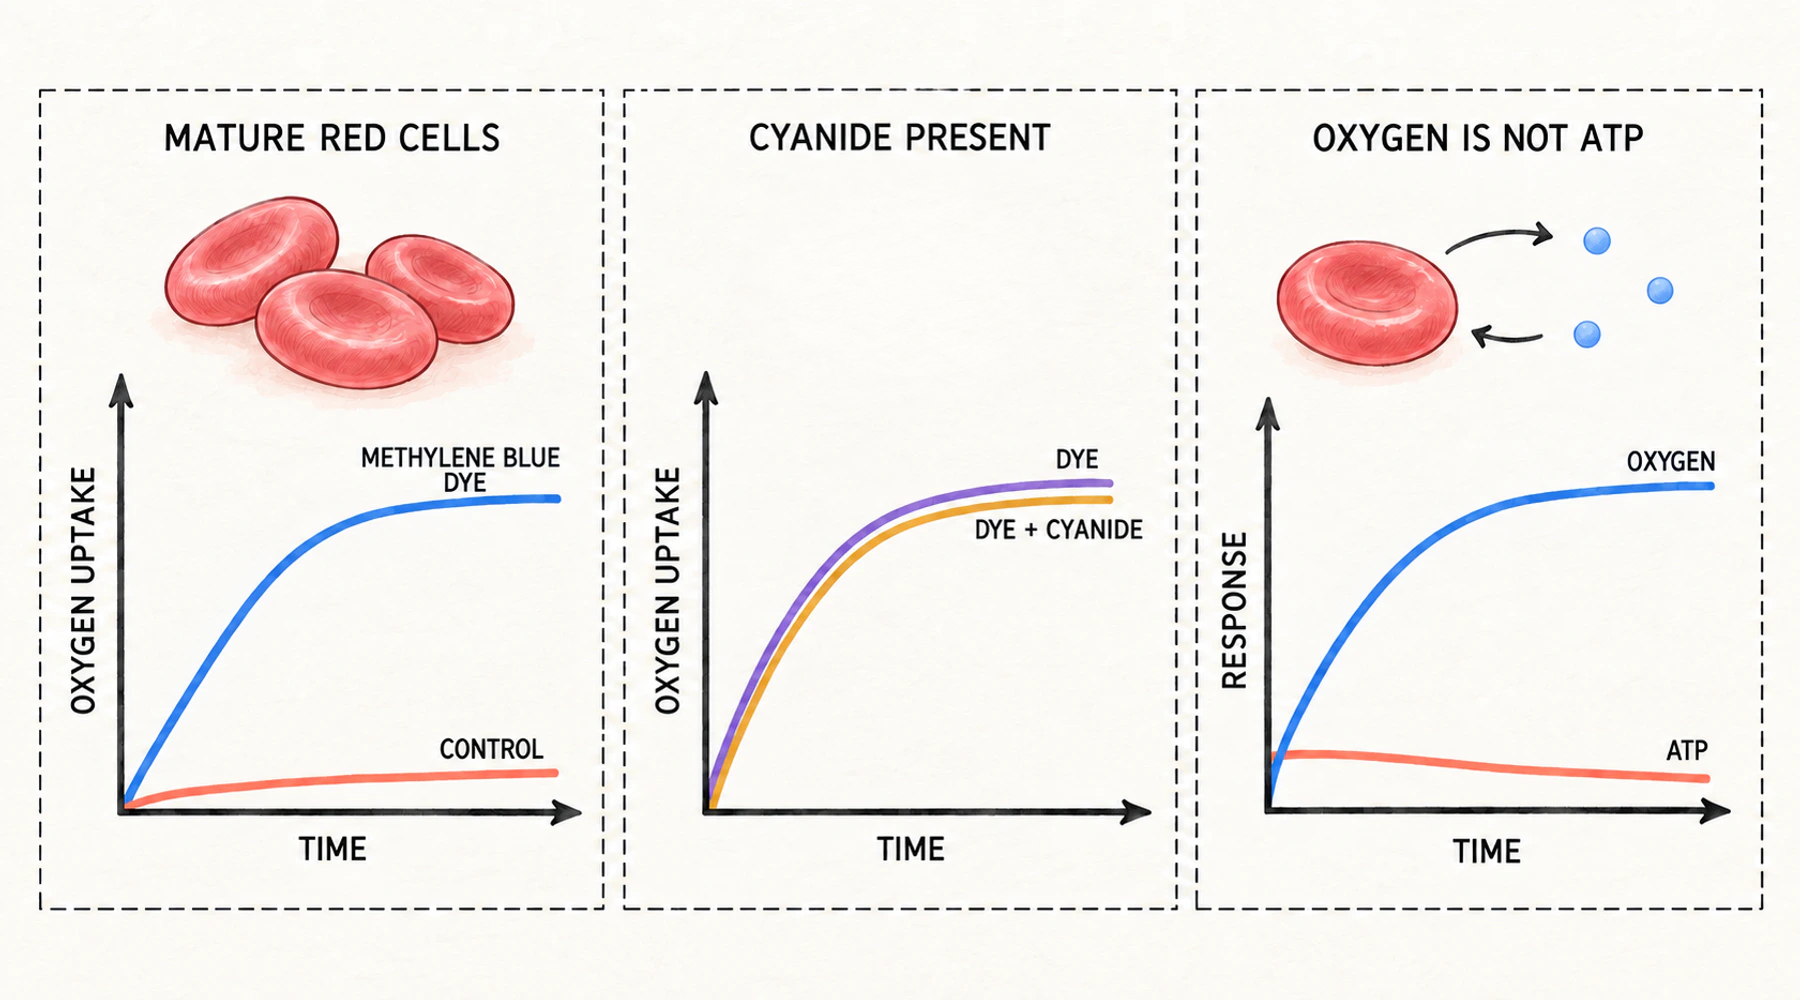
Il sangue umano defibrinato, mantenuto a 37 °C per tre ore, consuma circa il due per cento dell'ossigeno che contiene. Aggiungendo una piccola quantità di blu di metilene prima dell'incubazione, lo stesso sangue ne consuma circa il sessantacinque per cento. Nelle cellule non era cambiato nulla. Era cambiata solo la soluzione.
Quel dato proviene da un articolo del 1928 di George Harrop ed E. S. Guzman Barron della Johns Hopkins, ed è all'origine dell'affermazione, ampiamente ripetuta, secondo cui il blu di metilene migliora la respirazione cellulare. L'affermazione non è falsa, ma ha una portata più limitata di quanto sembri.
Che cosa misura davvero il numero nella tabella
Il parametro misurato era il consumo di ossigeno, determinato mediante analisi dei gas. Harrop e Barron filtrarono sangue appena prelevato attraverso ovatta a 10 °C per eliminare i globuli bianchi, saturarono il campione di ossigeno, lo divisero, aggiunsero il colorante a una porzione e analizzarono entrambe dopo l'incubazione. Le conte leucocitarie superavano raramente circa mille cellule per millimetro cubo. Il consumo di ossigeno veniva riportato come la quota del contenuto iniziale di ossigeno del campione che era scomparsa.
Misurarono anche l'anidride carbonica, ma in quel caso il metodo creò difficoltà. Nella prima ora di incubazione il sangue defibrinato rilasciava fino a due millimoli di anidride carbonica per 100 mL per ragioni estranee alla reazione studiata, rendendo inutilizzabili i quozienti respiratori del sangue intero. Solo le cellule lavate in soluzione di Locke fornivano valori interpretabili, che si concentravano tra 0.73 e 0.80, con e senza il colorante.
Non è un dettaglio secondario. In questi articoli, «respirazione» significa scambio di gas all'interno di un recipiente chiuso. La distanza tra consumo di ossigeno e produzione di energia utile viene esaminata separatamente in che cosa il consumo di ossigeno può e non può dirci sull'ATP.
Il colorante contribuiva di più dove le cellule respiravano meno
Gli eritrociti maturi dei mammiferi non hanno quasi alcun consumo di ossigeno misurabile. Gli eritrociti nucleati degli uccelli, invece, sì. Harrop e Barron esaminarono entrambi, e il contrasto costituisce il fulcro della loro argomentazione.
Nei campioni di mammiferi il colorante produsse aumenti da venti a cinquanta volte. Nel sangue d'oca, le cui cellule respiravano già, il tasso non aumentò mai oltre il doppio. Quanto maggiore era la respirazione iniziale, tanto minore era il contributo del colorante.
Lo stesso gradiente compare all'interno di una singola specie. Un campione umano di un paziente con policitemia vera, contenente cellule immature, consumava l'11.3 per cento del proprio ossigeno in assenza di colorante, contro il 2.8 per cento delle cellule lavate di un donatore sano. Il colorante lo portò soltanto al 63.4 per cento: un'accelerazione di sei volte, mentre nelle cellule normali l'accelerazione era di quasi trenta volte. Il colorante spingeva le cellule mature verso il comportamento di quelle immature, proprio come sostenevano gli autori.
Il cianuro avrebbe dovuto bloccare l'effetto
Era noto che il cianuro arrestasse l'ossidazione cellulare. Harrop e Barron lo aggiunsero comunque, insieme al colorante.
I risultati ottenuti con il sangue bovino sono rappresentativi. Senza aggiunte, il contenuto di ossigeno scese da 22.61 a 22.03 volumi per cento nell'arco di tre ore. Con il blu di metilene scese a 12.84. Con il blu di metilene e cianuro di potassio alla concentrazione di un cinquemillesimo molare, scese a 12.74. L'effetto del colorante rimase sostanzialmente inalterato.
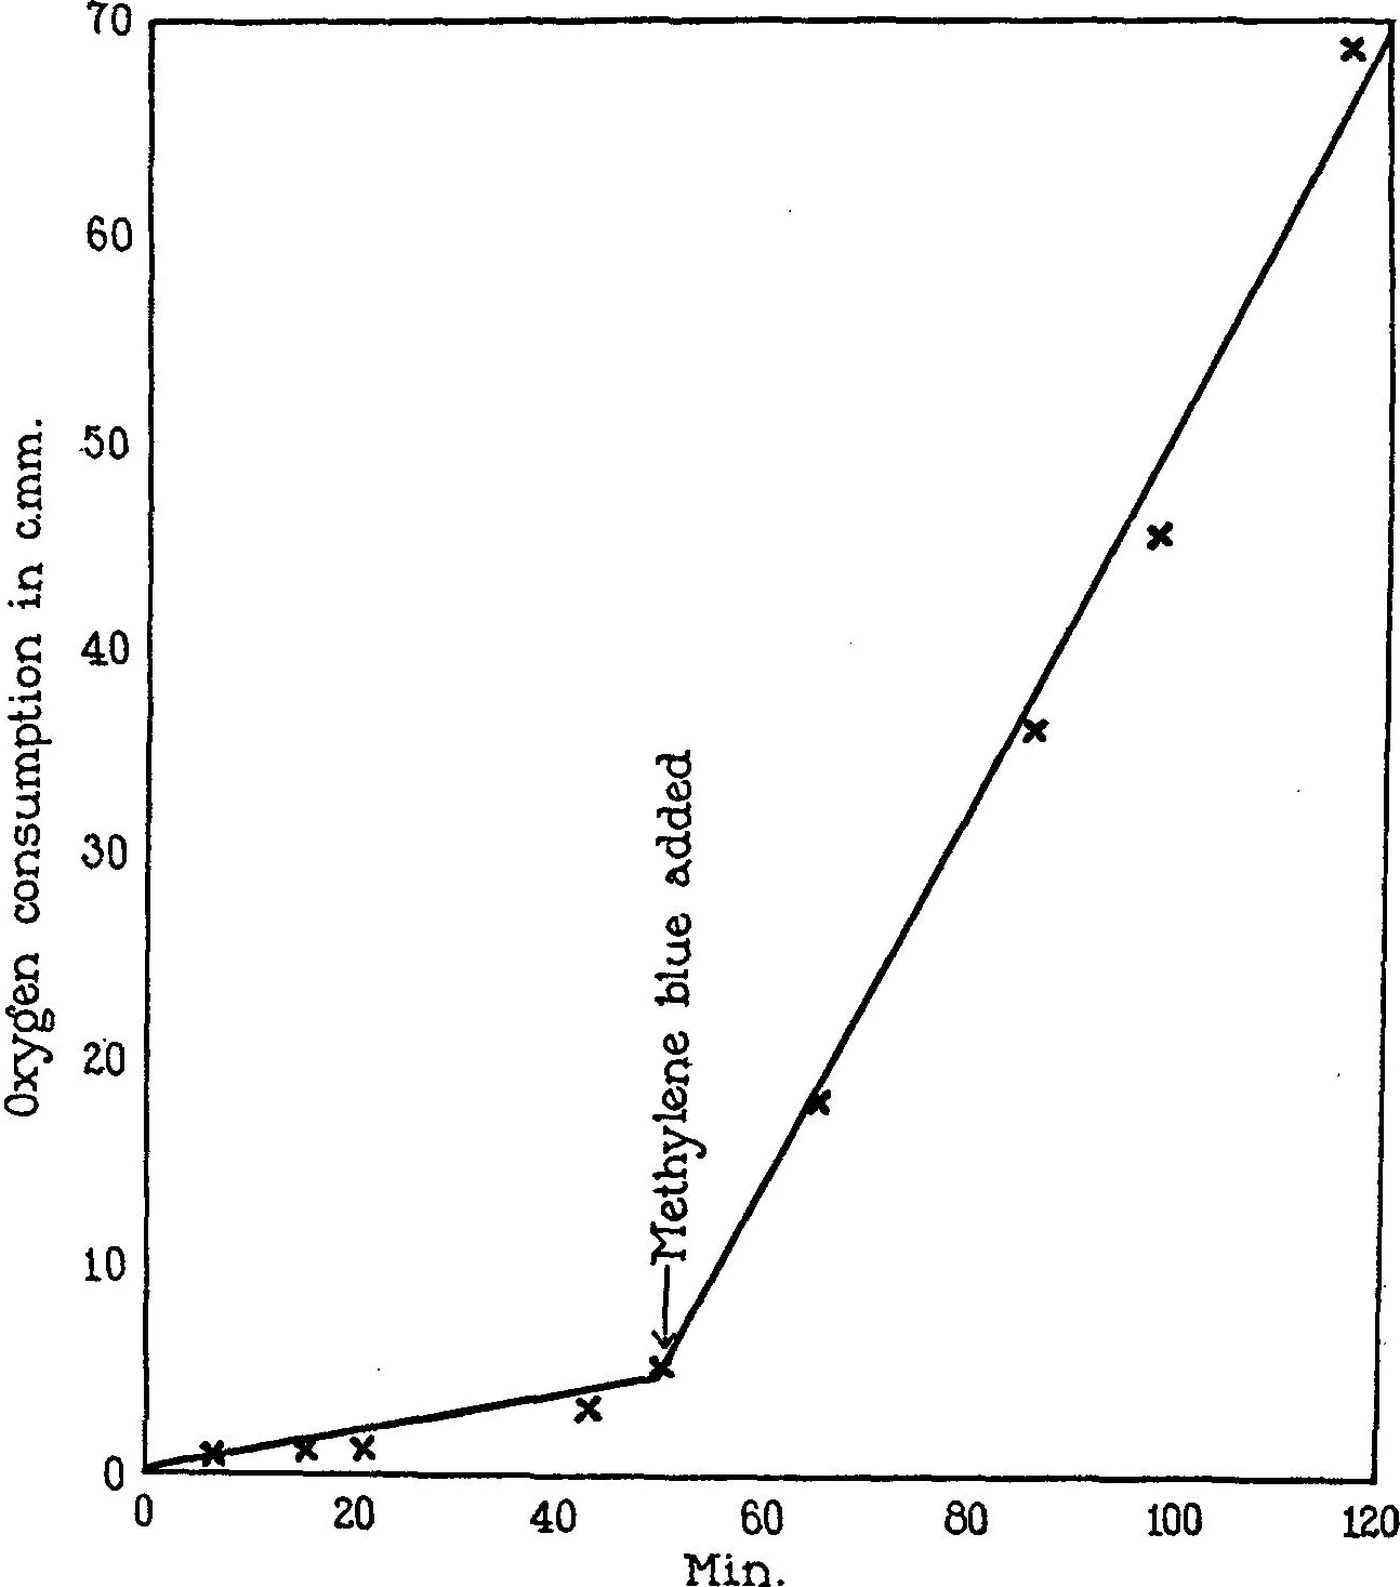
Figura: registrazione continua della microrespirazione di eritrociti umani. La freccia indica l'aggiunta del blu di metilene. Prima, il tracciato è quasi piatto; dopo, sale costantemente. Riprodotta da Harrop e Barron, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Conclusero che il colorante agiva come trasportatore di ossigeno, «fornendo una sostanza scomparsa dagli eritrociti non nucleati dei mammiferi adulti». Due anni dopo, Michaelis e Salomon del Rockefeller Institute formularono il dilemma in termini rimasti attuali. O l'effetto del colorante era «una proprietà accidentale del colorante», oppure il colorante era «un modello di una sostanza sconosciuta presente negli organismi». Il dilemma non è stato risolto. Ciò che è cambiato è che oggi le cellule possono essere descritte con molta più precisione.
Un estratto di fegato produceva lo stesso effetto
Michaelis e Salomon dimostrarono che estratti di organi ottenuti con acqua fredda producono la stessa stimolazione. Il fegato di ratto aveva l'effetto più forte, seguito da rene, milza e testicolo. Cervello, muscolo e siero sanguigno avevano un effetto scarso o nullo.
Misero poi alla prova l'estratto in presenza di monossido di carbonio. La respirazione indotta dall'estratto o dal colorante rimaneva invariata in una miscela composta per il 98 per cento da monossido di carbonio e per il 2 per cento da ossigeno. La stessa miscela gassosa inibiva la respirazione del lievito e quella degli eritrociti nucleati di pollo di circa il 60–80 per cento, in linea con la descrizione di Warburg di un fermento respiratorio sensibile al monossido di carbonio. La sostanza tissutale non identificata non era dunque l'enzima di Warburg.
Nel corso delle indagini furono escluse diverse possibili identità. Il glutatione ridotto e la cisteina producevano soltanto il consumo di ossigeno richiesto dalla propria ossidazione. Il coenzima di Harden e Young fu escluso perché il muscolo, che ne contiene la quantità maggiore, mostrava un effetto tra i più deboli. Il citocromo di Keilin, denominato pochi anni prima, incontrò la stessa contraddizione. Quanto alla loro ipotesi che la sostanza attiva provenisse dal nucleo cellulare, la definirono una semplice supposizione.
L'effetto dipendeva da determinate condizioni
Le cellule dovevano essere integre. L'emolisi provocata dall'acqua distillata o dal congelamento ripetuto aboliva la risposta sia al colorante sia all'estratto, mentre l'emolisi parziale la riduceva in proporzione.
Era necessario anche uno zucchero. Glucosio, fruttosio e saccarosio sostenevano la respirazione indotta dal colorante; il mannitolo no. In assenza di zucchero non si verificava alcuna respirazione, e nel processo il colorante sembrava danneggiare le cellule, tanto che l'aggiunta di glucosio una o due ore dopo non la ripristinava. Gli autori ipotizzarono che il colorante stesse ossidando un componente strutturale necessario alla cellula.
L'illuminazione aumentava considerevolmente l'effetto del colorante, benché l'effetto fosse evidente anche al buio. Altri coloranti riducibili si comportavano diversamente: il blu di toluilene eguagliava o superava il blu di metilene, mentre l'indaco disolfonato non aveva quasi alcun effetto. Non emerse una relazione chiara tra il potenziale di ossidoriduzione di un colorante e l'entità del suo effetto, circostanza che gli autori attribuirono alla permeabilità della membrana e alla tossicità.
L'effetto seguiva la fermentazione, non la respirazione
Lo studio di Barron del 1930 passò dalle sospensioni cellulari alle sezioni di tessuto di organi normali di ratto e di tumori trapiantati.
Nei tessuti privi di glicolisi aerobica, il blu di metilene non aveva alcun effetto oppure riduceva leggermente il consumo di ossigeno: nel rene di circa il 14 per cento, nel pancreas di circa il 14 per cento, nel fegato di circa il 5 per cento. Nei tessuti che fermentano in presenza di ossigeno, aumentava il consumo: nella milza di circa l'8 per cento, nel cervello di circa il 13 per cento. Gli aumenti nei tumori andavano da circa il 27 per cento in un carcinoma mammario umano a oltre l'80 per cento in un sarcoma di Rous del pollo, approssimativamente in proporzione alla glicolisi aerobica di ciascun tessuto.
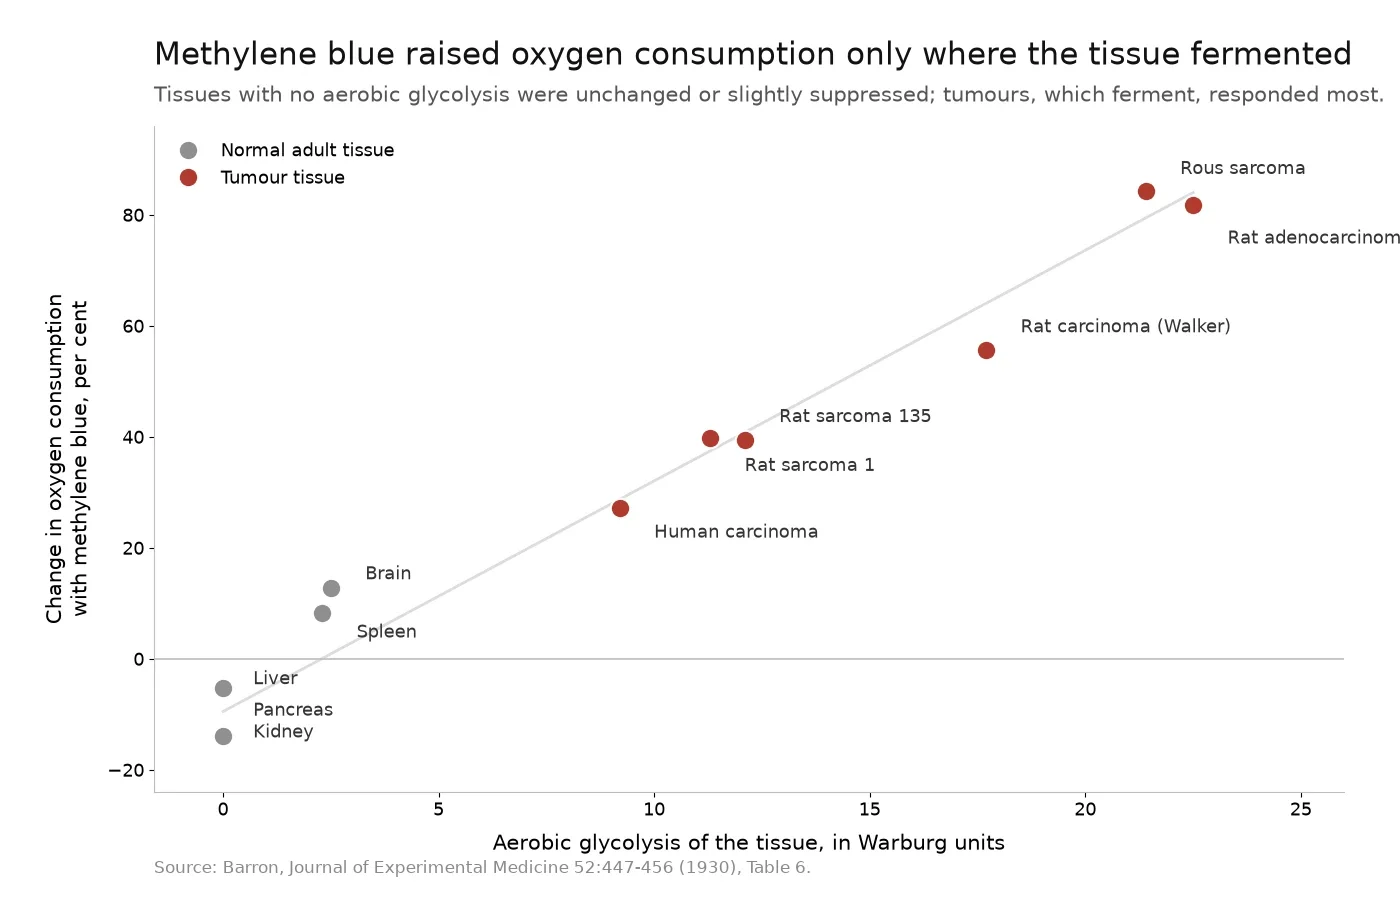
Figura: ogni punto rappresenta un tipo di tessuto. L'asse orizzontale indica la glicolisi aerobica; l'asse verticale indica la variazione del consumo di ossigeno dopo l'aggiunta di blu di metilene. Dati da Barron, Journal of Experimental Medicine 52:447–456 (1930), Tabella 6, PMID 19869777.
L'esperimento con il cianuro produsse poi un quadro speculare. Quando la respirazione di quei tessuti precedentemente non responsivi veniva bloccata con il cianuro e la fermentazione emergeva, il colorante aumentava nuovamente il consumo di ossigeno: nel rene di circa il 59 per cento, nel fegato di circa il 19 per cento, nella milza di circa il 286 per cento, nel testicolo di circa il 200 per cento.
Barron propose che il colorante potesse servire come test della capacità fermentativa di una cellula o di un tessuto, e concluse con una congettura: generazioni di colture tumorali in un terreno contenente il colorante avrebbero potuto, un giorno, rendere il metabolismo di un tumore permanentemente simile a quello di un tessuto normale. Era un quesito di ricerca formulato nel 1930. Non è un'affermazione terapeutica.
Che cosa gli esperimenti non potevano misurare
Nel 1928 e nel 1930, «respirazione» significava consumo di ossigeno. L'adenosina trifosfato fu descritta per la prima volta nel 1929, e la dimostrazione che i mitocondri isolati esterificano il fosfato mentre trasferiscono elettroni arrivò nel 1949. Nessuno dei primi articoli sul blu di metilene avrebbe potuto misurare la produzione di energia, e nessuno affermava di averlo fatto.
Il secondo problema riguarda le cellule. Gli eritrociti maturi dei mammiferi non contengono mitocondri. Durante lo stadio di reticolocita eliminano mitocondri e ribosomi mediante autofagia selettiva: per questo un globulo rosso maturo ricava energia dalla glicolisi e dipende dalla via dei pentoso fosfati principalmente per il NADPH, anziché per l'ATP. Negli esperimenti del 1928 non era presente alcuna catena di trasporto degli elettroni da riparare. Qualunque cosa consumasse l'ossigeno stava facendo altro.
Oggi questo altro processo è descritto con ragionevole precisione. Il blu di metilene accetta elettroni dagli equivalenti riducenti cellulari e diventa leucometilene blu, che viene riossidato dall'ossigeno molecolare, chiudendo il ciclo. Nei globuli rossi umani, la flavina reduttasi NADPH-dipendente e le disolfuro reduttasi correlate svolgono la fase di riduzione. Uno studio del 1976 con glucosio marcato rilevò che il colorante stimola la via dell'esoso monofosfato, che l'effetto a bassa concentrazione dipendeva dall'ossiemoglobina e che una concentrazione più elevata, 0.1 mM, generava perossido di idrogeno. Un colorante ridotto che incontra l'ossigeno produce perossido, non legami fosfato.
Nei mitocondri il quadro è più controverso di quanto ammettano le sintesi divulgative. Un filone di ricerca sostiene che il colorante prelevi elettroni dalla regione del complesso I e li ceda al citocromo c. Un altro ha riscontrato che nei mitocondri cerebrali di topo non può ripristinare la respirazione dopo un blocco con antimicina, collocando invece l'accettore di elettroni nel sito di legame dell'ubichinolo del complesso III. Un terzo ha riscontrato che basse concentrazioni aumentavano il consumo di ossigeno a riposo, lasciando invariata la respirazione stimolata dall'ADP. La formulazione più diretta del punto è che il consumo di ossigeno indotto dal blu di metilene non dipende affatto dalla fosforilazione ossidativa: persisteva quando la catena respiratoria era inibita e in preparati che ne erano privi.
Esistono anche misurazioni dirette della distanza tra le due grandezze. Nei mitocondri isolati di fegato di ratto, concentrazioni crescenti del colorante riducevano i rapporti di controllo respiratorio e provocavano rigonfiamento, fenomeni che gli autori descrissero come disaccoppiamento della fosforilazione ossidativa. Nel fegato di ratto perfuso, il blu di metilene aumentava il consumo di ossigeno mentre il rapporto ATP/ADP diminuiva.
La documentazione clinica trasmette lo stesso messaggio. La metaemoglobinemia viene trattata con circa uno o due milligrammi di blu di metilene per chilogrammo per via endovenosa, attraverso una via di riduzione NADPH-dipendente, mentre dosi maggiori causano la condizione che si sta trattando. La stessa rassegna osserva che l'effetto antidotico è massimo negli eritrociti integri e si riduce in presenza di emolisi: il risultato sull'emolisi del 1930 ricompare così settantatré anni dopo in un contesto ospedaliero. Un composto i cui effetti utili e nocivi si trovano sui lati opposti di una soglia di dose non è un composto la cui dose possa essere dedotta da una misurazione del consumo di ossigeno.
Perché il lotto fa parte della discussione
Harrop e Barron notarono un aspetto che merita una seconda lettura. Il blu di metilene stesso produce nello spettroscopio una banda tra le due bande caratteristiche della metaemoglobina, «che può facilmente generare confusione a un esame sommario». Il colorante può imitare la sostanza che si sta cercando.
Lo stesso problema ha una forma chimica. Una fenotiazina affine presente come componente minoritario ha un proprio comportamento redox, una propria permeabilità e una propria tossicità. Un caso documentato rende concrete le implicazioni: in uno studio sulla iodurazione del blu di metilene, campioni contenenti circa il 7–8 per cento di Azure B produssero principalmente Azure B iodurato, perciò a dominare la reazione fu l'impurità, anziché il blu di metilene.
Chiunque usi il blu di metilene come reagente, in un laboratorio, su un banco di colorazione o in un acquario, lavora con un ingrediente non definito se il lotto non è stato caratterizzato. Sostanze correlate, identità, impurezze elementari, solventi residui e residuo alla calcinazione sono parte dell'esperimento, non semplici documenti di contorno. Blupreme si procura il blu di metilene da un produttore farmaceutico e pubblica un certificato di analisi completo, verificando l'intera specifica USP anziché soltanto i metalli pesanti; la guida alla lettura di un certificato di analisi e che cosa attesta e che cosa non attesta la designazione di grado USP spiegano come verificare che il documento corrisponda a quanto dichiarato.
Il numero era corretto
Gli esperimenti del 1928 e del 1930 furono accurati, e la loro osservazione centrale ha resistito nel tempo: un colorante riducibile può far consumare ossigeno a una cellula che respira appena a un tasso molte volte superiore a quello a riposo, senza passare attraverso il passaggio bloccato dal cianuro.
L'errore compare in seguito, quando «respirazione» viene letta nel suo significato moderno. Una misurazione dello scambio gassoso dice che gli elettroni sono arrivati all'ossigeno. Non dice che qualcuno di essi sia stato usato per produrre ATP e, in una cellula priva di mitocondri, la distanza tra queste due affermazioni è massima. La mappa più ampia di ciò che il blu di metilene fa nelle cellule colloca la stessa distinzione in un quadro più vasto, mentre la storia del composto, da colorante a medicinale spiega come un colorante tessile sia arrivato a questi esperimenti.