
Artigo
Os experimentos que vincularon o azul de metileno coa respiración celular
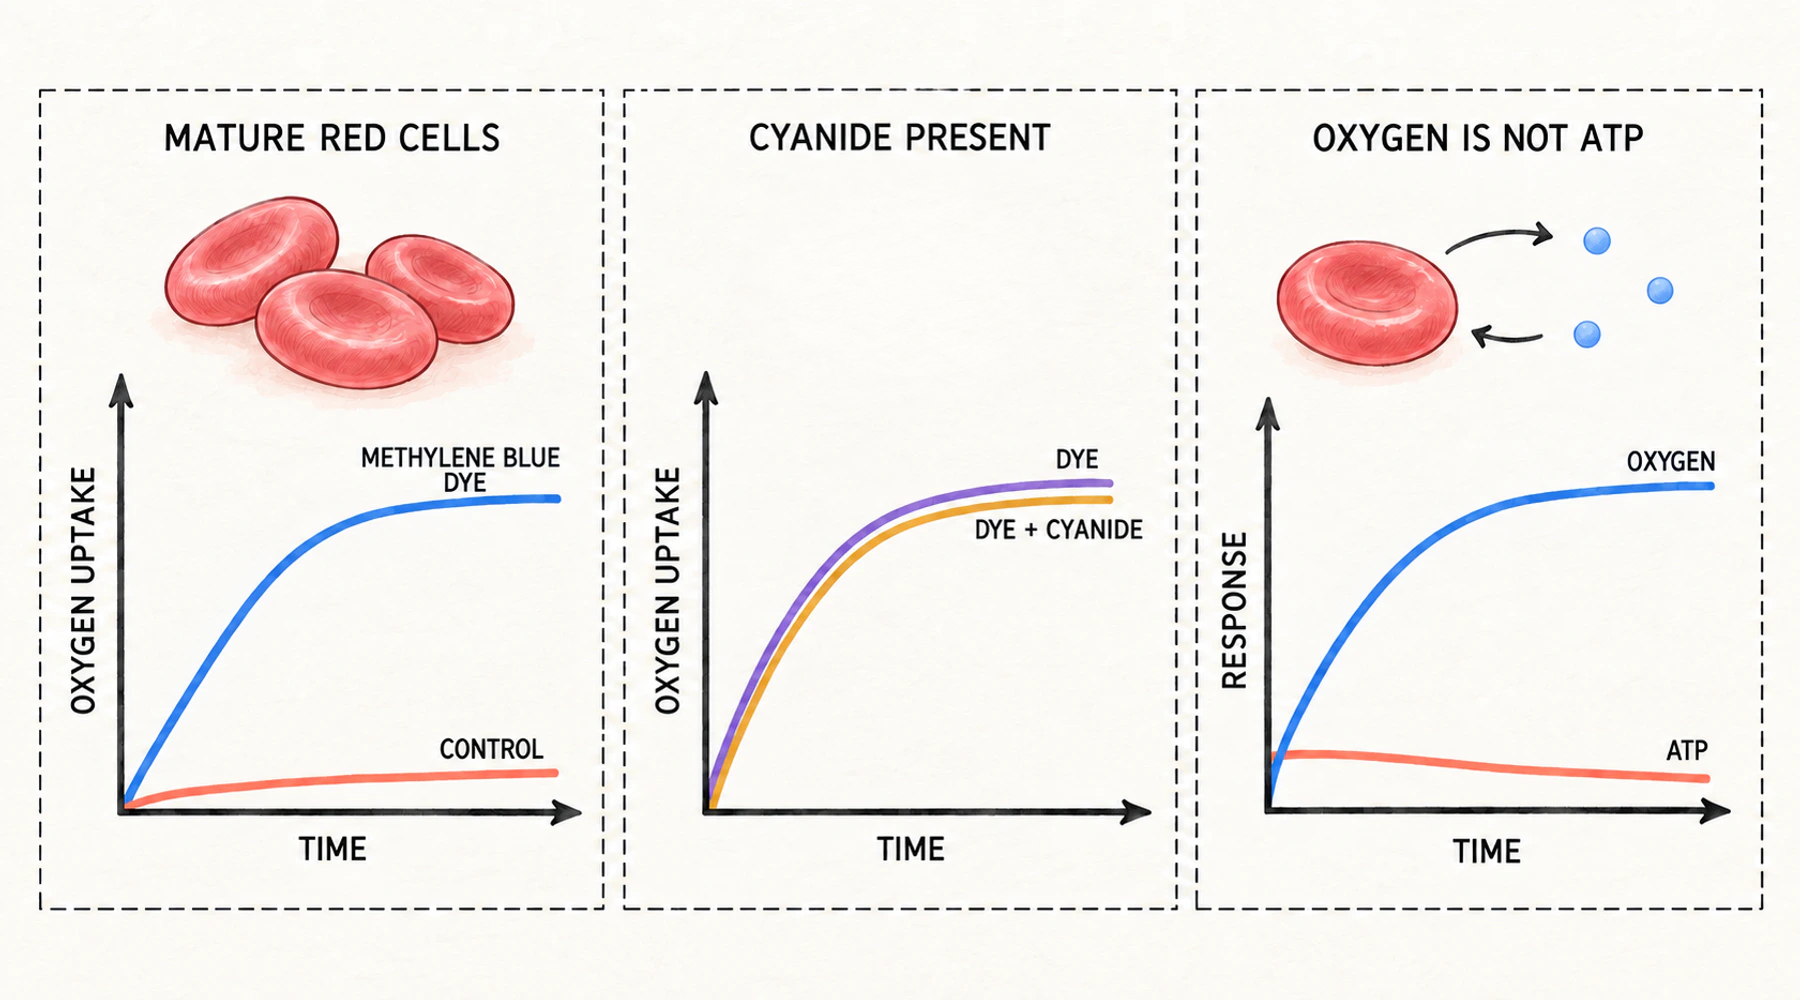
O sangue humano desfibrinado, mantido a 37 °C durante tres horas, consome arredor do dous por cento do osíxeno que contén. Se se engade unha pequena cantidade de azul de metileno antes da incubación, o mesmo sangue consome arredor do sesenta e cinco por cento. Nada cambiou nas células. Só cambiou a solución.
Esa cifra procede dun artigo de 1928 de George Harrop e E. S. Guzman Barron, da Johns Hopkins, e é a orixe da afirmación, moi repetida, de que o azul de metileno mellora a respiración celular. A afirmación non é falsa, pero ten un alcance máis limitado do que parece.
Que mide realmente a cifra da táboa
A variable medida foi a captación de osíxeno, determinada mediante análise de gases. Harrop e Barron filtraron sangue acabado de extraer a través de algodón a 10 °C para eliminar os glóbulos brancos, saturaron a mostra con osíxeno, dividírona, engadiron colorante a unha das porcións e analizaron ambas tras a incubación. Os recontos de leucocitos rara vez superaban uns mil por milímetro cúbico. O consumo de osíxeno expresouse como a proporción do contido inicial de osíxeno da mostra que desaparecera.
Tamén mediron o dióxido de carbono, e aí o método presentou dificultades. O sangue desfibrinado liberaba ata dous milimoles de dióxido de carbono por 100 mL na primeira hora de incubación por razóns alleas á reacción estudada, polo que os cocientes respiratorios do sangue enteiro non eran utilizables. Só as células lavadas en solución de Locke deron cifras interpretables, e estas agrupábanse entre 0.73 e 0.80 tanto co colorante como sen el.
Ese detalle non é unha trivialidade. Nestes artigos, «respiración» significa intercambio de gases nun recipiente pechado. A diferenza entre o consumo de osíxeno e a produción de enerxía útil examínase por separado en o que o consumo de osíxeno indica e non indica sobre o ATP.
O colorante contribuíu máis onde as células respiraban menos
Os eritrocitos maduros dos mamíferos case non teñen consumo de osíxeno medible. Os eritrocitos nucleados das aves si o teñen. Harrop e Barron probaron ambos, e o contraste é o eixe do seu argumento.
Nas mostras de mamíferos, o colorante produciu aumentos de entre vinte e cincuenta veces. No sangue de ganso, cuxas células xa respiraban, nunca chegou a máis que duplicar a taxa. Canto maior era a respiración inicial, menor era a contribución do colorante.
O mesmo gradiente aparece dentro dunha soa especie. Unha mostra humana dun paciente con policitemia vera, que contiña células inmaturas, consumiu o 11.3 por cento do seu osíxeno sen colorante, fronte ao 2.8 por cento das células lavadas dun doador san. O colorante só a levou ata o 63.4 por cento: unha aceleración de seis veces, mentres que as células normais aceleraban case trinta veces. O colorante achegaba as células maduras ao comportamento das inmaturas, que era precisamente o que os autores dicían que facía.
O cianuro debería telo detido
Sabíase que o cianuro detiña a oxidación celular. Harrop e Barron engadírono de todos os xeitos, xunto co colorante.
Os resultados co sangue bovino son representativos. O contido de osíxeno baixou de 22.61 a 22.03 volumes por cento en tres horas sen engadir nada. Co azul de metileno baixou a 12.84. Co azul de metileno e cianuro de potasio a unha concentración molar dunha cincomilésima, baixou a 12.74. O efecto do colorante quedou practicamente intacto.
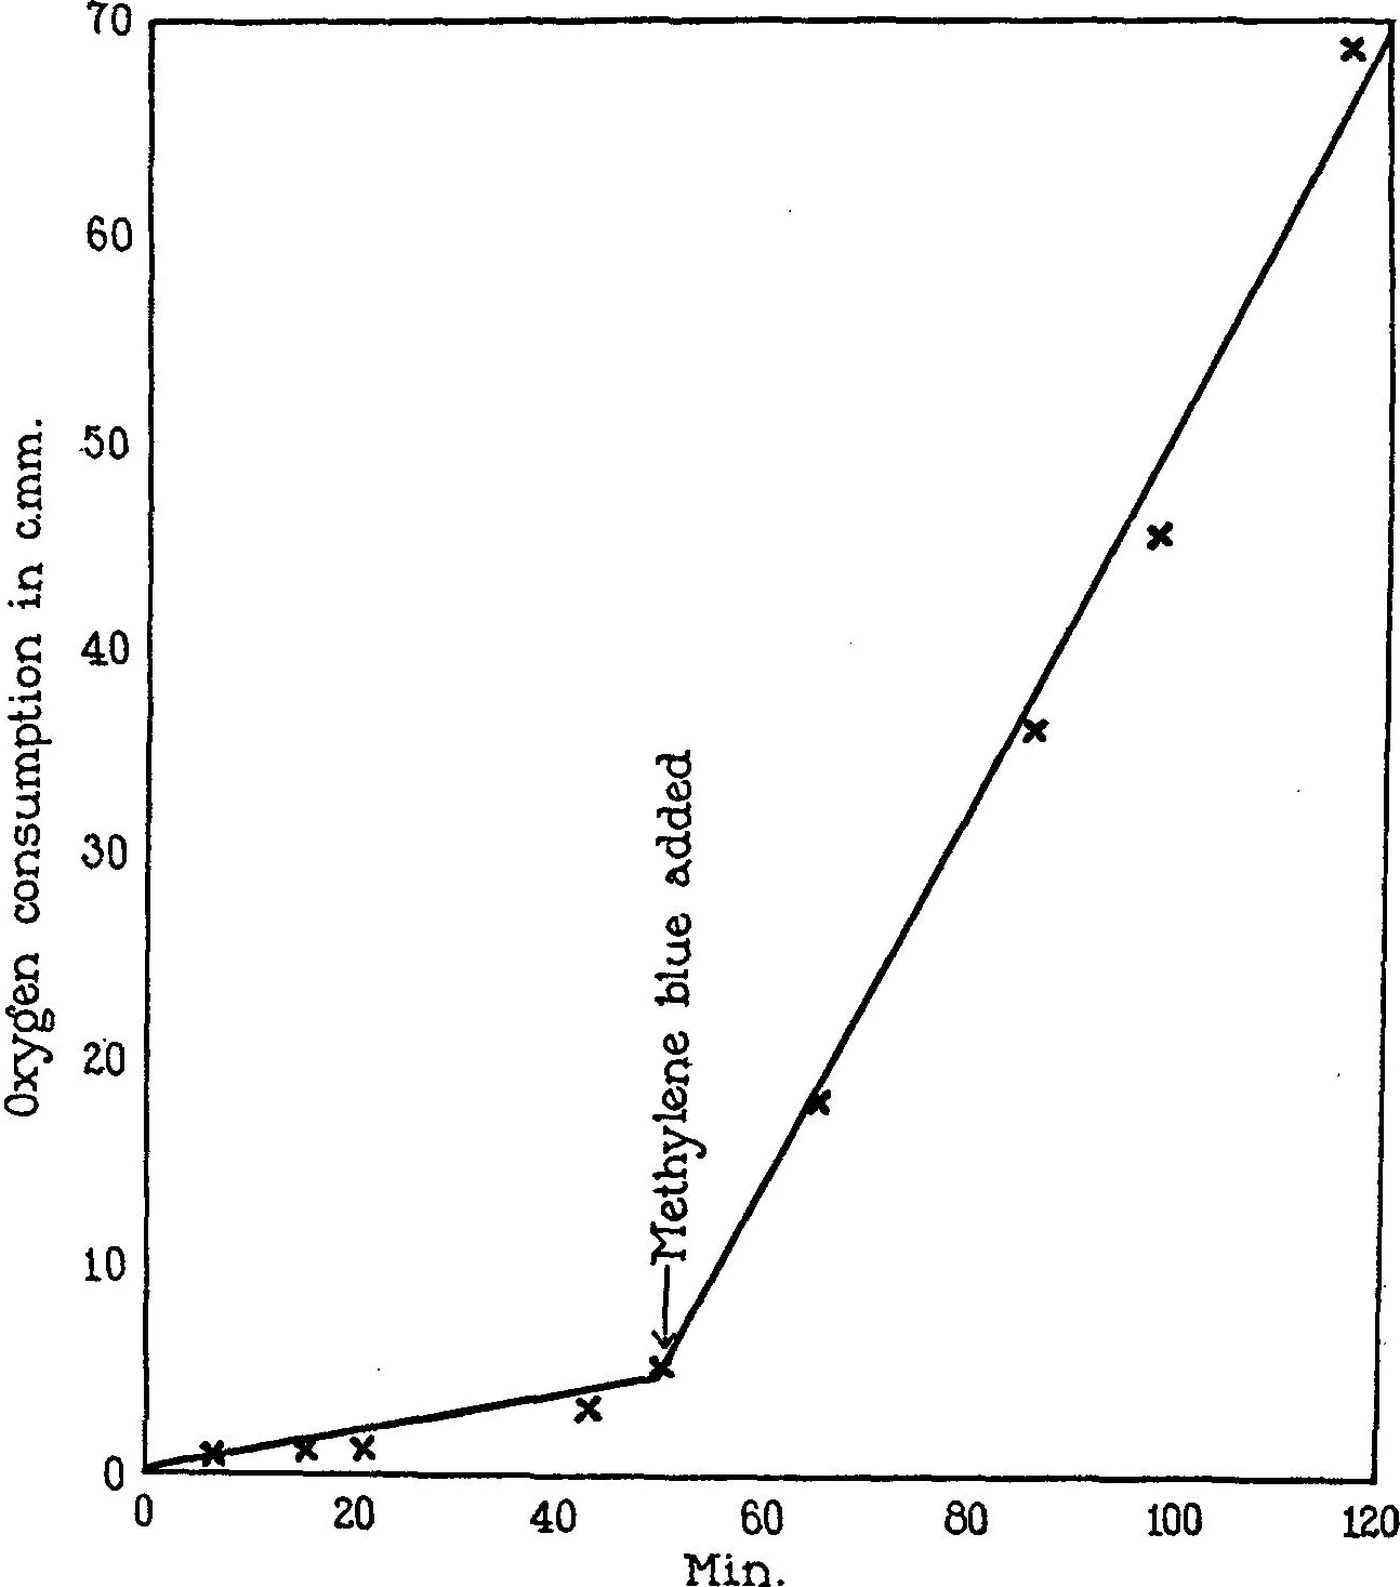
Figura: un rexistro continuo de microrrespiración de eritrocitos humanos. A frecha marca a adición de azul de metileno. Antes dela, o trazado é case plano; despois, ascende de maneira constante. Reproducido de Harrop e Barron, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
A súa conclusión foi que o colorante actuaba como transportador de osíxeno, «achegando unha substancia que desapareceu dos eritrocitos non nucleados dos mamíferos adultos». Dous anos despois, Michaelis e Salomon, do Instituto Rockefeller, formularon o desacordo en termos que perduraron. Ou ben o efecto do colorante era «unha propiedade accidental do colorante», ou ben este era «un modelo dalgunha substancia descoñecida nos organismos». Esa disxuntiva non se resolveu. O que cambiou é que agora as células poden describirse con moita máis precisión.
Un extracto de fígado fixo o mesmo
Michaelis e Salomon demostraron que os extractos de órganos obtidos con auga fría producen a mesma estimulación. O fígado de rata foi o máis activo, seguido do ril, o bazo e o testículo. O cerebro, o músculo e o soro sanguíneo tiveron pouco ou ningún efecto.
Despois probaron o extracto fronte ao monóxido de carbono. A respiración inducida polo extracto ou polo colorante non cambiou nunha mestura do 98 por cento de monóxido de carbono e do 2 por cento de osíxeno. A mesma mestura de gases inhibiu a respiración dos lévedos e dos eritrocitos nucleados das aves nun 60 a 80 por cento aproximadamente, en consonancia coa descrición de Warburg dun fermento respiratorio sensible ao monóxido de carbono. Polo tanto, a substancia tisular non identificada non era o encima de Warburg.
Polo camiño descartáronse varias posibles identidades. O glutatión reducido e a cisteína só producían o consumo de osíxeno necesario para a súa propia oxidación. O coencima de Harden e Young descartouse porque o músculo é o tecido que máis contén e mostrou case o menor efecto. O citocromo de Keilin, denominado uns anos antes, atopouse coa mesma contradición. A súa propia proposta, que a substancia activa procedía do núcleo celular, cualificárona de mera suxestión.
O efecto dependía de certas condicións
As células tiñan que estar intactas. A hemólise por auga destilada ou por conxelacións repetidas eliminaba a resposta tanto ao colorante como ao extracto, e a hemólise parcial reducíaa proporcionalmente.
Tamén se precisaba azucre. A glicosa, a frutosa e a sacarosa permitían a respiración inducida polo colorante; o manitol non. Sen azucre non había respiración ningunha, e parecía que o colorante danaba as células durante o proceso, de modo que engadir glicosa unha ou dúas horas despois non a restablecía. Os autores suxeriron que o colorante oxidaba un compoñente estrutural que a célula necesitaba.
A iluminación aumentaba considerablemente o efecto do colorante, aínda que este era claro na escuridade. Outros colorantes reducibles comportábanse de maneira distinta: o azul de toluileno igualaba ou superaba o azul de metileno, mentres que o disulfonato de índigo case non facía nada. Non se atopou unha relación clara entre o potencial de oxidación-redución dun colorante e a magnitude do seu efecto, algo que os autores atribuíron á permeabilidade da membrana e á toxicidade.
O efecto seguía a fermentación, non a respiración
O estudo de Barron de 1930 pasou das suspensións celulares aos cortes de tecido de órganos normais de rata e de tumores transplantados.
Nos tecidos sen glicólise aerobia, o azul de metileno non facía nada ou reducía lixeiramente o consumo de osíxeno: no ril, arredor do 14 por cento; no páncreas, arredor do 14 por cento; no fígado, arredor do 5 por cento. Nos tecidos que fermentan en presenza de osíxeno, aumentaba o consumo: no bazo, arredor do 8 por cento; no cerebro, arredor do 13 por cento. Os aumentos nos tumores ían de arredor do 27 por cento nun carcinoma mamario humano a máis do 80 por cento nun sarcoma de Rous de polo, aproximadamente en proporción á glicólise aerobia de cada tecido.
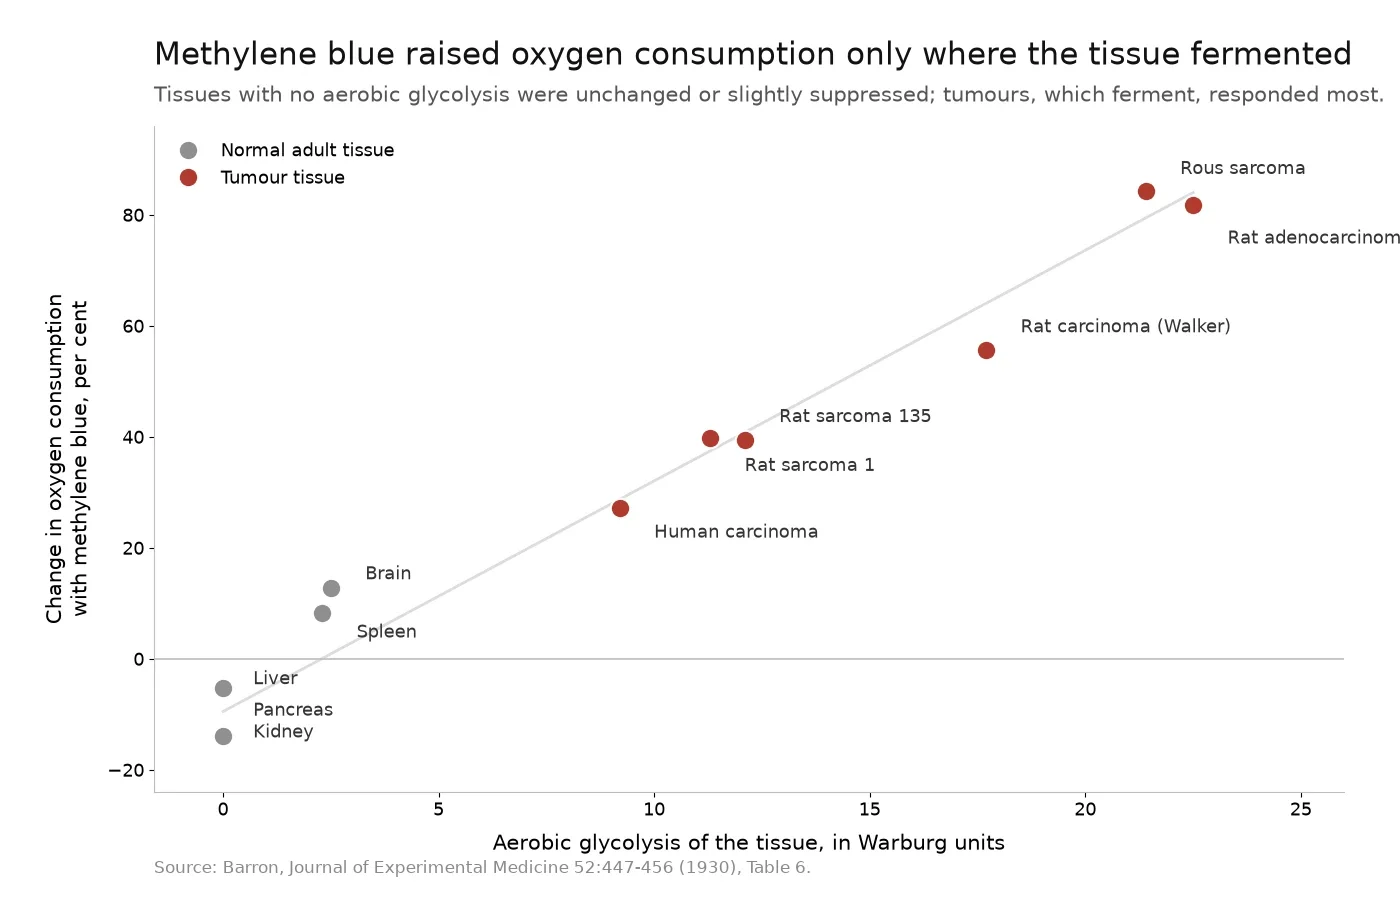
Figura: cada punto é un tipo de tecido. O eixe horizontal representa a glicólise aerobia; o eixe vertical, o cambio no consumo de osíxeno tras engadir azul de metileno. Datos de Barron, Journal of Experimental Medicine 52:447–456 (1930), Táboa 6, PMID 19869777.
O experimento co cianuro produciu entón a imaxe inversa. Cando se bloqueou con cianuro a respiración daqueles tecidos que antes non respondían e a fermentación se fixo patente, o colorante volveu aumentar o consumo de osíxeno: no ril, arredor do 59 por cento; no fígado, arredor do 19 por cento; no bazo, arredor do 286 por cento; no testículo, arredor do 200 por cento.
Barron propuxo que o colorante podería servir como proba da capacidade fermentativa dunha célula ou dun tecido, e rematou cunha especulación: xeracións de cultivo tumoral nun medio con colorante poderían algún día facer que o metabolismo dun tumor se volvese permanentemente semellante ao dun tecido normal. Aquilo era unha cuestión de investigación escrita en 1930. Non é unha afirmación sobre un tratamento.
O que os experimentos non podían estar medindo
En 1928 e 1930, «respiración» significaba consumo de osíxeno. O trifosfato de adenosina describiuse por primeira vez en 1929, e a demostración de que as mitocondrias illadas esterifican fosfato mentres transfiren electróns chegou en 1949. Ningún dos primeiros artigos sobre o azul de metileno podía ter medido a produción de enerxía, e ningún deles afirmou facelo.
As células son o segundo problema. Os eritrocitos maduros dos mamíferos non conteñen mitocondrias. Durante a fase de reticulocito eliminan as mitocondrias e os ribosomas mediante autofaxia selectiva, polo que un glóbulo vermello maduro funciona grazas á glicólise e depende da súa vía das pentosas fosfato principalmente para obter NADPH, non ATP. Nos experimentos de 1928 non había ningunha cadea de transporte de electróns que reparar. O que consumía o osíxeno estaba a facer outra cousa.
En que consistía esa outra cousa está hoxe razoablemente ben descrito. O azul de metileno acepta electróns dos equivalentes redutores celulares e convértese en leucoazul de metileno, que se reoxida polo osíxeno molecular, pechando o ciclo. Nos glóbulos vermellos humanos, a flavina redutase dependente de NADPH e outras disulfuro redutases relacionadas realizan o paso de redución. Un estudo de 1976 con glicosa marcada descubriu que o colorante estimula a vía da hexosa monofosfato, que o efecto a baixa concentración dependía da oxihemoglobina e que unha concentración maior, de 0.1 mM, xeraba peróxido de hidróxeno. Un colorante reducido que entra en contacto co osíxeno produce peróxido, non enlaces fosfato.
Nas mitocondrias, o panorama é máis controvertido do que admiten os resumos populares. Unha liña de investigación sostén que o colorante toma electróns da rexión do complexo I e os entrega ao citocromo c. Outra descubriu que, nas mitocondrias do cerebro de rato, non pode restablecer a respiración tras un bloqueo con antimicina, e situou o aceptor de electróns no sitio de unión do ubiquinol do complexo III. Unha terceira descubriu que as concentracións baixas aumentaban o consumo de osíxeno en repouso sen modificar a respiración estimulada por ADP. A formulación máis directa deste punto é que o consumo de osíxeno inducido polo azul de metileno non depende en absoluto da fosforilación oxidativa: persistía cando se inhibía a cadea respiratoria e en preparacións que carecían dela.
Tamén existen medicións directas da diferenza entre as dúas magnitudes. En mitocondrias illadas de fígado de rata, as concentracións crecentes de colorante reduciron os cocientes de control respiratorio e provocaron inchamento, o que os autores describiron como desacoplamento da fosforilación oxidativa. No fígado de rata perfundido, o azul de metileno aumentou o consumo de osíxeno mentres diminuía a relación ATP/ADP.
A experiencia clínica transmite a mesma mensaxe. A metahemoglobinemia trátase con aproximadamente un a dous miligramos de azul de metileno por quilogramo por vía intravenosa, a través dunha vía de redución dependente de NADPH, e doses maiores causan a afección que se está a tratar. A mesma revisión sinala que o efecto como antídoto é maior nos eritrocitos intactos e diminúe cando hai hemólise, o que supón a reaparición do achado sobre a hemólise de 1930, setenta e tres anos despois, nun contexto hospitalario. Un composto cuxos efectos útiles e nocivos se sitúan a ambos os lados dun limiar de dose non é un composto cuxa dose deba deducirse dunha medición do consumo de osíxeno.
Por que o lote forma parte da discusión
Harrop e Barron observaron algo que merece unha segunda lectura. O propio azul de metileno produce no espectroscopio unha banda entre as dúas bandas características da metahemoglobina, «o que pode causar facilmente confusión nunha inspección superficial». O colorante pode imitar a substancia que se busca.
O mesmo problema ten unha vertente química. Unha fenotiazina relacionada, presente como compoñente minoritario, ten o seu propio comportamento redox, a súa propia permeabilidade e a súa propia toxicidade. Un caso documentado concreta o que está en xogo: nun estudo da iodación do azul de metileno, as mostras que contiñan arredor dun 7 a 8 por cento de Azure B produciron principalmente Azure B iodado, polo que foi a impureza, e non o azul de metileno, a que dominou a reacción.
Calquera persoa que utilice azul de metileno como reactivo, nun laboratorio, nunha bancada de tinguidura ou nun acuario, está a traballar cun ingrediente sen especificar a menos que o lote estea caracterizado. As substancias relacionadas, a identidade, as impurezas elementais, os disolventes residuais e o residuo de ignición forman parte do experimento, non son simples trámites que o acompañan. Blupreme obtén o seu azul de metileno dun fabricante farmacéutico e publica un certificado de análise completo, verificando toda a especificación USP e non só os metais pesados; a guía para ler un certificado de análise e o que a designación de grao USP acredita e non acredita explican como contrastar o documento coa afirmación.
A cifra era correcta
Os experimentos de 1928 e 1930 foron coidadosos, e a súa observación central segue vixente: un colorante reducible pode facer que unha célula que apenas respira consuma osíxeno a unha taxa moitas veces superior á de repouso, sen pasar polo paso que bloquea o cianuro.
O erro aparece despois, cando se interpreta «respiración» co seu significado moderno. Unha medición do intercambio de gases indica que os electróns chegaron ao osíxeno. Non indica que ningún deles se utilizase para producir ATP e, nunha célula sen mitocondrias, a distancia entre esas dúas afirmacións é máxima. O mapa máis amplo do que fai o azul de metileno nas células sitúa a mesma distinción nun marco máis extenso, e a historia do composto, de colorante a medicamento explica como un colorante téxtil chegou a estes experimentos.