
Article
Comment fonctionne le bleu de méthylène : transfert d’électrons et destination des électrons
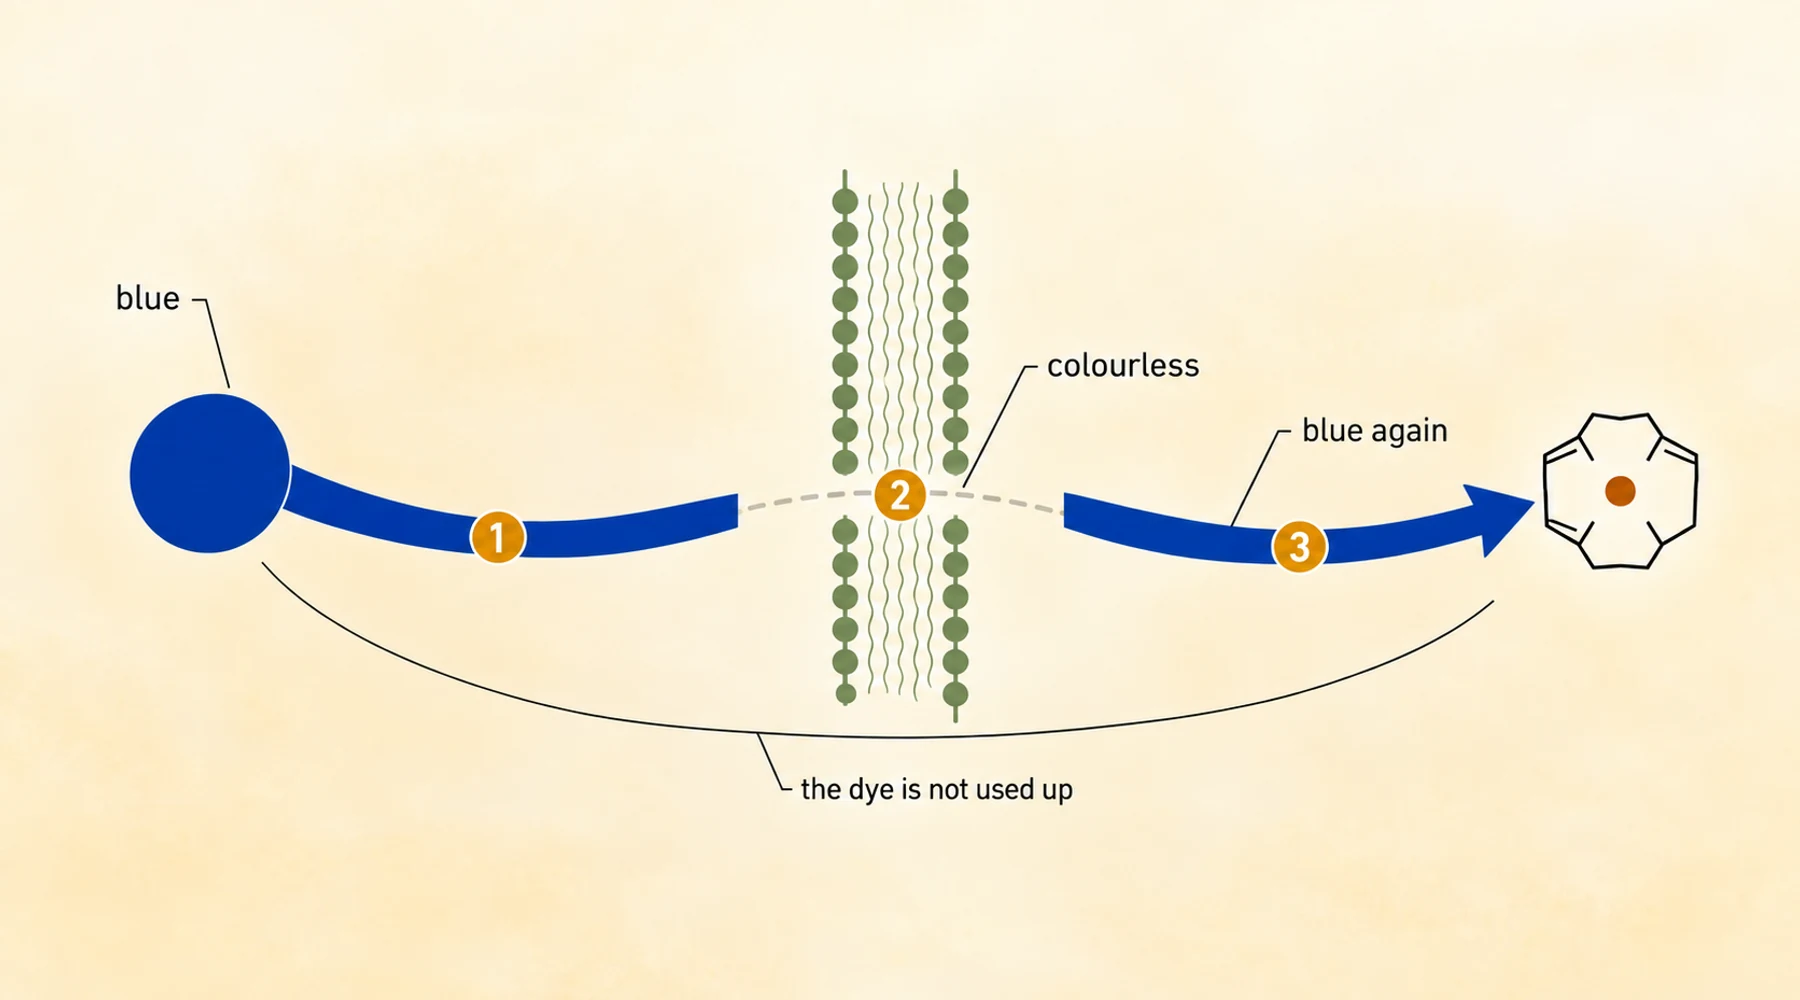
Un flacon bouché posé sur une paillasse constitue l’introduction la plus courte et la plus fidèle au fonctionnement du bleu de méthylène. De l’eau, du glucose, une pincée d’hydroxyde de sodium et suffisamment de colorant pour donner au liquide un bleu profond et impossible à confondre. Attendez quelques minutes et le bleu disparaît progressivement jusqu’à ce que le flacon ressemble à un flacon d’eau. Secouez-le, et la couleur réapparaît instantanément. Puis elle s’estompe à nouveau, et le phénomène continuera tant qu’il restera du glucose prêt à céder des électrons et de l’oxygène prêt à les accepter.
Rien n’a changé dans le colorant, si ce n’est le nombre d’électrons qu’il transporte. Oxydé, il est bleu. Réduit, il ne l’est pas. Presque tout le reste de la littérature thérapeutique et scientifique consacrée à cette molécule découle de cette unique étape réversible, car une molécule capable de prendre des électrons à un partenaire et de les transmettre à un autre agit comme un relais, et un relais ne fait rien par lui-même. Son action dépend entièrement de ce qui se trouve à chacune de ses extrémités.
Deux formes, et pourquoi le couple est important
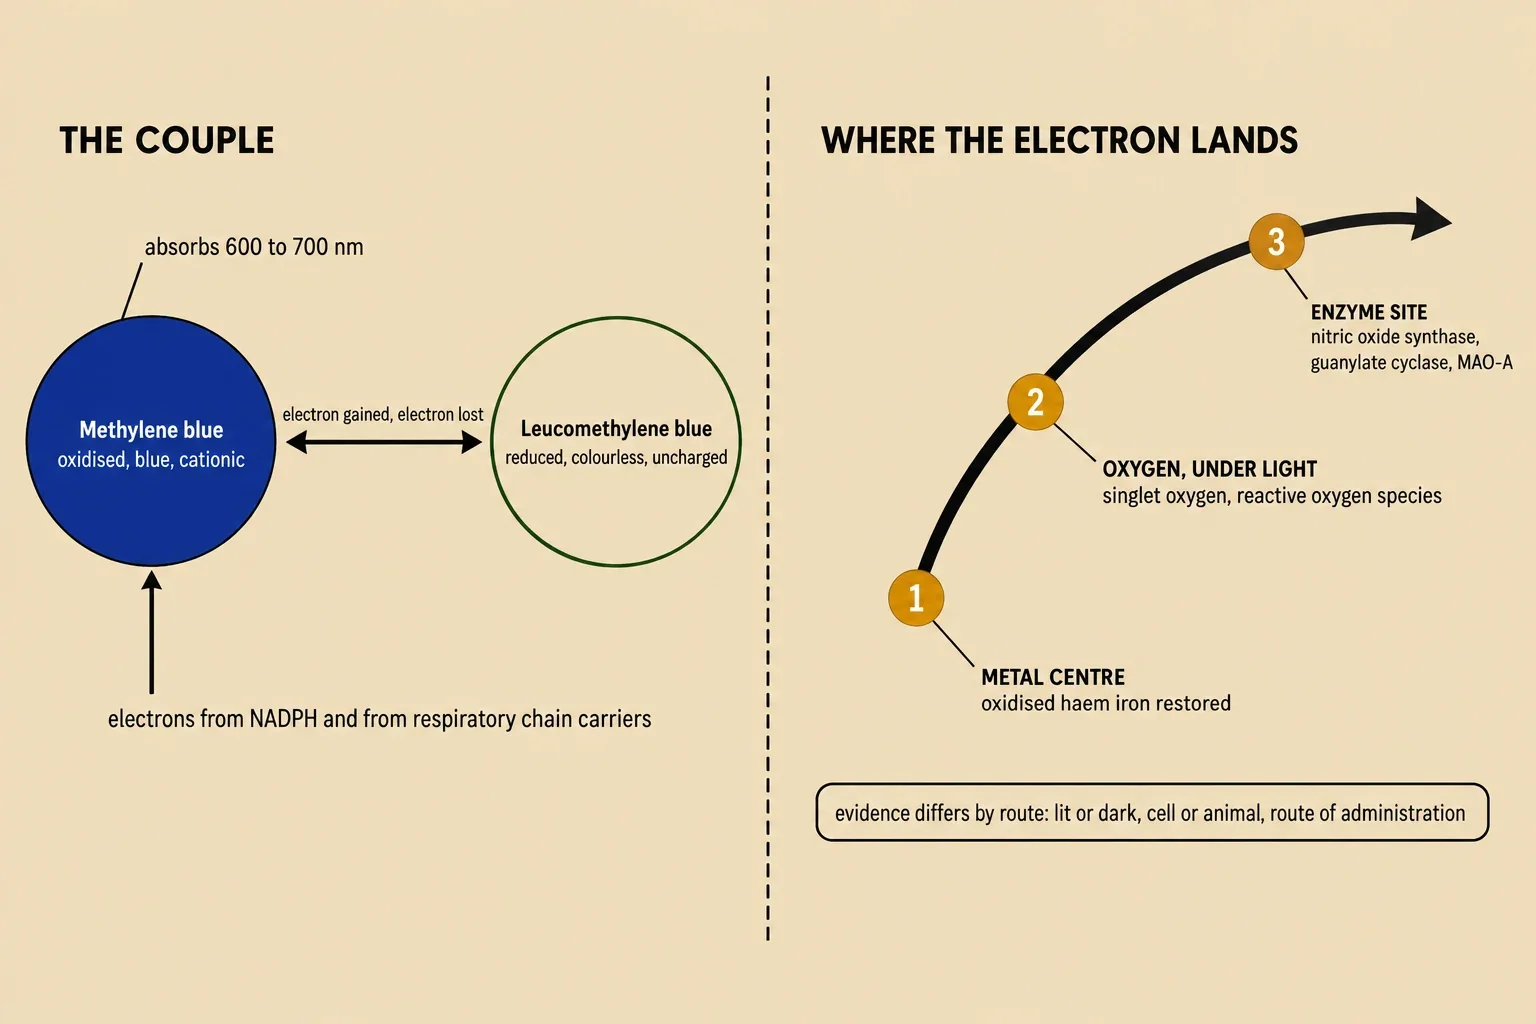
La forme oxydée est un système cyclique plan chargé positivement. Cette forme plate et chargée explique pourquoi elle s’empile contre les acides nucléiques, pourquoi elle se lie aux structures sialylées des membranes cellulaires et pourquoi elle absorbe fortement la lumière visible entre environ 600 et 700 nanomètres, soit la partie du spectre que l’œil humain perçoit comme bleue.
La forme réduite est différente. Elle ne porte aucune charge, se dissout dans les graisses plutôt que dans l’eau et est incolore. Son ionisation est très faible au pH présent dans l’organisme, de l’ordre de quelques pour cent. La molécule réduite traverse donc facilement une membrane cellulaire par diffusion et, une fois à l’intérieur, où l’environnement est plus oxydant, elle peut être réoxydée et se retrouver effectivement piégée. Le système cyclique oxydé est plat ; le système réduit peut se tordre. Ces conséquences structurelles, ainsi que le changement de couleur lui-même, font pleinement partie de l’histoire de ces deux formes et sont présentées plus en détail dans la comparaison entre le bleu de méthylène et le leucométhylène bleu.
Accepter des électrons
Le colorant oxydé accepte des électrons provenant d’un large éventail de donneurs. Le glucose du flacon de démonstration en est un. À l’intérieur d’une cellule, les nucléotides pyridiniques réduits et les composants de la chaîne mitochondriale de transport des électrons en sont d’autres. Lorsque le bleu de méthylène est réduit dans un tissu contenant de l’oxygène, le cycle qu’il met en place consomme à la fois l’agent réducteur et l’oxygène, et produit des espèces réactives de l’oxygène, principalement du peroxyde d’hydrogène. Le colorant ressort du cycle inchangé, prêt à recommencer.
Ce dernier point explique une contradiction qui, autrement, pourrait sembler négligente. Le bleu de méthylène est décrit dans la littérature à la fois comme pro-oxydant et comme antioxydant, et les deux descriptions peuvent se défendre. Il peut réduire la production de superoxyde en agissant comme accepteur artificiel d’électrons, détournant le flux d’électrons des sites enzymatiques où l’oxygène serait autrement transformé en radicaux superoxyde. Dans des cultures de cellules hépatiques, il a été montré qu’il induisait des enzymes de défense antioxydante de phase 2, notamment la thiorédoxine réductase 1 et la NADPH quinone oxydoréductase. La face que l’on observe dépend de l’extrémité du relais qui manque d’électrons à cet instant. Une question comme « le bleu de méthylène est-il un antioxydant ? » est mal posée tant que l’on ne précise pas dans quel système, à quelle concentration et en présence de quels autres éléments.
Transmettre les électrons
Une fois que le colorant porte un électron supplémentaire, trois choses très différentes peuvent se produire, et elles sont généralement regroupées sous un même intitulé. Elles ne devraient pas l’être.
Il peut transmettre l’électron à un centre métallique. Le cas le plus clair est celui de l’hémoglobine qui a été oxydée de l’état ferreux à l’état ferrique. Dans cet état, elle ne peut pas transporter l’oxygène. Dans les globules rouges, une enzyme réduit le colorant, puis le colorant réduit transmet des électrons de manière non enzymatique au fer de l’hème oxydé, restaurant une hémoglobine fonctionnelle et ramenant le colorant à sa forme oxydée. Le colorant n’est pas consommé par ce processus ; il effectue un cycle. Le contexte clinique reposant sur cette réaction relève de l’hôpital, et l’explication du bleu de méthylène dans la méthémoglobinémie décrit son utilisation et les raisons de sa surveillance étroite.
Une remarque importante concernant les sources : les deux articles de synthèse sur lesquels repose cet article ne désignent pas le même cofacteur réducteur pour l’étape enzymatique, l’un indiquant NADH et l’autre NADPH. Cette divergence est réelle et n’est pas résolue dans les sources disponibles ici ; la description la plus prudente consiste donc à préciser le rôle de chaque composant plutôt qu’à retenir le nom d’un seul cofacteur.
Il peut transmettre de l’énergie, ou un électron, à l’oxygène, s’il y a de la lumière. Cette voie n’existe que sous illumination. Le colorant excité atteint un état triplet, à partir duquel deux mécanismes sont possibles. Dans le premier, le colorant excité interagit directement avec une molécule voisine, en captant un hydrogène ou en transférant un électron, ce qui génère des radicaux ; une réaction de ce type avec l’eau produit des radicaux hydroxyle. Dans le second, l’énergie d’excitation est transmise à l’oxygène lui-même, produisant de l’oxygène singulet, une espèce fortement électrophile qui se désintègre en quelques microsecondes et qui est généralement considérée comme la principale voie par laquelle le bleu de méthylène illuminé endommage les cellules microbiennes. Les réactions avec les lipides et les peptides de l’enveloppe cellulaire, ainsi qu’avec les bases guanine de l’ADN, figurent parmi les effets documentés.
La conséquence pratique de cette voie est que l’illumination modifie les valeurs de plusieurs ordres de grandeur. Dans les données rassemblées par Wainwright et Crossley, le bleu de méthylène contre Pseudomonas aeruginosa présente une concentration bactéricide minimale d’environ 500 micromolaires dans l’obscurité et d’environ 25 micromolaires sous une dose lumineuse de 12 joules par centimètre carré. Contre une souche de Staphylococcus aureus, les valeurs dans l’obscurité et sous illumination sont toutes deux de 5 micromolaires. Autrement dit, le fait que la molécule puisse ou non être considérée comme antimicrobienne n’est pas une propriété de la molécule seule ; c’est une propriété de la molécule associée à la lumière.
Il peut agir directement sur un site enzymatique, sans passer par le relais. Le bleu de méthylène oxyde le fer ferreux lié à la synthase de l’oxyde nitrique, ce qui inactive l’enzyme. Il bloque la guanylate cyclase soluble, et une concentration comprise entre 1 et 10 micromolaires est couramment utilisée en laboratoire à cette fin. Il inhibe la monoamine oxydase de type A avec une IC50 comprise entre 27 et 180 nanomolaires, mécanisme à l’origine de l’interaction bien documentée avec les inhibiteurs de la recapture de la sérotonine et raison pour laquelle les interactions médicamenteuses du bleu de méthylène constituent une catégorie à part entière.
Ces trois voies sont chimiquement distinctes. Les réduire à une seule affirmation selon laquelle le bleu de méthylène agit par cycle redox est la principale raison pour laquelle tant de textes à son sujet paraissent à la fois affirmatifs et vagues.
Quatre distinctions qui déterminent si une affirmation mécanistique a un sens
Quelle forme. Le colorant réduit n’est pas interchangeable avec le colorant oxydé. L’inhibition de l’acétylcholinestérase illustre bien le piège : lors d’une longue incubation in vitro, le bleu de méthylène est progressivement réduit vers sa forme incolore et l’inhibition diminue, car la molécule réduite n’inhibe pas cette enzyme. Un essai suffisamment long pour modifier la forme produira un effet plus faible et favorisera une interprétation erronée.
Quelle concentration. La plage utilisée en laboratoire pour inhiber la guanylate cyclase soluble est de 1 à 10 micromolaires. La suppression de la transmission médiée par le glutamate dans des coupes d’hippocampe de rat a nécessité 5 à 50 micromolaires. Des effets toxiques en culture cellulaire sont signalés au-dessus de 100 micromolaires. Il ne s’agit pas de la même expérience, et un mécanisme confirmé à 50 micromolaires n’est pas automatiquement pertinent chez un patient dont la concentration plasmatique n’en représente qu’une fraction.
Quelle voie. La biodisponibilité orale absolue est d’environ 72 pour cent, et la demi-vie plasmatique terminale est de 5 à 7 heures. L’administration orale produit des concentrations plus élevées dans l’intestin et le foie ; l’administration intraveineuse produit des concentrations plus élevées dans le cerveau. La voie détermine quel tissu rencontre les électrons.
Quel modèle, et les lumières étaient-elles allumées. Une grande partie de la littérature mécanistique repose sur des cultures cellulaires et des travaux chez les rongeurs, et les résultats in vitro obtenus avec cette molécule dépendent de l’exposition à la lumière, du potentiel membranaire et de l’état redox des cellules, car la lampe d’un microscope suffit à la photosensibiliser. Entre 65 et 85 pour cent d’une dose administrée est réduite en forme incolore dans les globules rouges et les tissus périphériques. Chacune de ces variables s’interpose entre un mécanisme clairement observé dans une boîte de laboratoire et une affirmation concernant une personne.
Pourquoi la question de la pureté est une question de chimie
L’illumination déméthyle le bleu de méthylène. Le premier produit est Azure B, puis Azure A, puis la thionine, et une intensité lumineuse plus élevée provoque davantage de dégradation qu’une intensité plus faible. Une molécule dont l’utilité repose sur sa capacité à accepter et à donner des électrons est donc une molécule dont les produits de dégradation probables sont des proches parents chimiques qui restent dans la même solution. La composition de ce qui se trouve dans le contenant n’est pas un détail cosmétique.
C’est pourquoi la conformité à la spécification USP constitue le test pertinent pour un acheteur. Un produit qui ne la respecte pas est un colorant, et un colorant contient des impuretés, notamment Azure B, des métaux lourds et des solvants résiduels, qu’une personne qui l’avale ne souhaite pas ingérer. Un autre piège consiste à choisir un vendeur qui ne teste que les métaux lourds et présente ce résultat comme une conformité complète. Blupreme s’est associé à un fabricant pharmaceutique de bleu de méthylène et teste l’ensemble de la spécification : identité, pureté, impuretés organiques, solvants résiduels, impuretés élémentaires, résidu après calcination, limites microbiennes et endotoxines bactériennes. Le document d’analyse de laboratoire associé à chaque lot est publié, et le choix d’un fournisseur consiste en grande partie à vérifier si ce document existe et ce qu’il couvre.
Un seul couple réversible. Plusieurs voies peuvent en découler. La voie détermine ce que l’affirmation peut réellement signifier. :::