
Article
Bleu de méthylène et mitochondries : transport des électrons et état des preuves
Imaginez deux préparations côte à côte. Toutes deux contiennent des mitochondries cérébrales empoisonnées par la roténone, une substance chimique qui bloque le Complexe I de la chaîne respiratoire. Dans l’une, l’expérimentateur ajoute à la pipette une dose micromolaire de bleu de méthylène. La consommation d’oxygène se rétablit en partie. Le potentiel de membrane revient partiellement. Une petite quantité de synthèse d’ATP redémarre. Dans la cuvette voisine, un capteur de peroxyde révèle l’autre moitié de l’histoire : la production de peroxyde d’hydrogène a été multipliée plusieurs fois, à chaque dose testée et avec chaque substrat essayé.
Les deux mesures sont correctes. Le bleu de méthylène est une navette électronique capable de maintenir le flux d’électrons autour d’une section endommagée de la chaîne respiratoire, et cette même navette impose en parallèle un coût en peroxyde. Gardez ces deux faits à l’esprit simultanément et la littérature sur la fonction mitochondriale du bleu de méthylène devient lisible. N’en retenez qu’un seul et elle ressemble à un miracle ou à une menace, selon l’article que vous avez ouvert en premier.
La navette, expliquée simplement
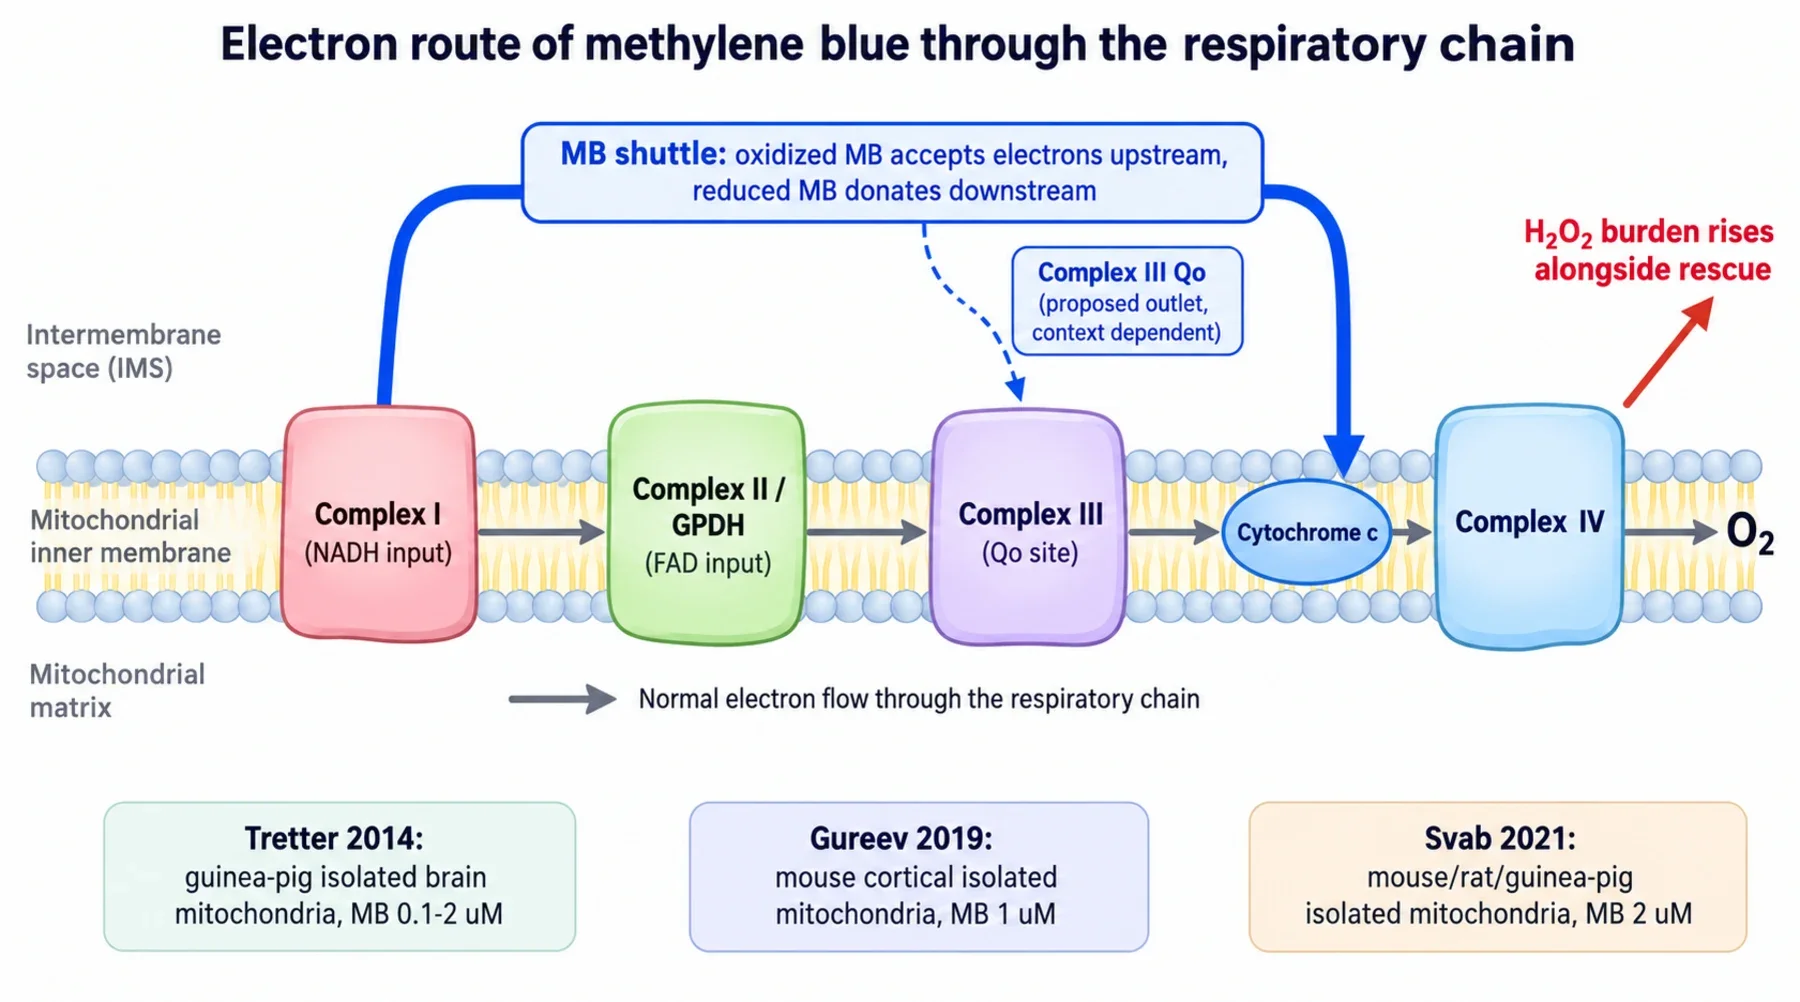
La chaîne respiratoire fonctionne comme une ligne de relais. Les électrons entrent au niveau du Complexe I (à partir du NADH) ou du Complexe II et d’enzymes flaviniques apparentées (à partir du succinate et de donneurs similaires), passent par le Complexe III vers le transporteur mobile cytochrome c, puis par le Complexe IV jusqu’à l’oxygène. Chaque transfert pompe des protons à travers la membrane interne, et le gradient qui en résulte alimente la synthèse d’ATP. Bloquez n’importe quelle étape et la ligne située en amont s’arrête.
Le bleu de méthylène s’insère comme un transporteur parallèle. Sa forme oxydée capte des électrons auprès des transporteurs en amont et devient la forme réduite incolore, le leucométhylène bleu, qui transmet ensuite ces électrons plus en aval avant de redevenir bleue. Les deux formes sont décrites dans la présentation du couple redox, tandis que ce comportement général de relais est expliqué dans l’article général sur le mécanisme. La question ouverte est de savoir où le transporteur réintègre la chaîne : dans la poche de liaison au quinol du Complexe III appelée site Qo, ou directement au niveau du cytochrome c. La voie de sortie dominante dépend des conditions, comme l’analyse du contournement du Complexe III l’expose en détail.
Ce que trois études chez les rongeurs ont réellement mesuré
Les trois études ont utilisé des mitochondries cérébrales isolées, c’est-à-dire des organites retirés des cellules puis suspendus dans un tampon défini. Aucune cellule intacte, aucun animal ayant reçu une dose, aucun sujet humain. Les concentrations correspondent au bain entourant les organites, et non à une dose orale humaine. Gardez ce cadre fixe et les chiffres deviennent clairs.
La première étude, menée sur des mitochondries cérébrales isolées de cobaye à des concentrations de 100 nanomolaires à 2 micromolaires, a cartographié le bénéfice et le coût dans une même préparation. Dans des mitochondries saines, le colorant augmentait la consommation d’oxygène au repos mais ne modifiait pas la respiration stimulée par l’ADP, de sorte que la production d’ATP couplée ne s’améliorait pas. Sous blocage du Complexe I, 2 micromolaires ont rétabli la synthèse d’ATP de 46 à 93 nanomoles par minute par milligramme, contre un taux normal proche de 1109. Sous blocage du Complexe III, la même dose a rétabli l’ATP d’environ 46 à 63, contre un taux normal proche de 910. Le potentiel et l’absorption de calcium se sont partiellement rétablis. Le blocage du Complexe IV par le cyanure ne pouvait pas être contourné, ce qui situe la sortie électronique utile en amont d’un Complexe IV fonctionnel. Chaque récupération était statistiquement réelle et faible : des pourcentages à un seul chiffre de la production normale d’ATP.
La deuxième étude, menée sur des mitochondries corticales de souris à environ 1 micromolaire, a confirmé le contournement du Complexe I et établi une limite au niveau du Complexe III. La roténone a fait chuter la respiration d’environ 121 à moins de 2 nanomoles d’oxygène par minute par milligramme, et le colorant l’a relevée à environ 21, soit approximativement un sixième de la normale, tandis que le potentiel de membrane se rétablissait presque complètement. Mais après blocage du Complexe III, ni la respiration ni le potentiel ne se sont rétablis entre 1 et 5 micromolaires, et le blocage a supprimé le signal de peroxyde induit par le colorant. Les auteurs ont proposé que le colorant réduit transmette ses électrons au site Qo du Complexe III : lorsque ce site est occupé, le transporteur n’a plus d’endroit où les délivrer.
La troisième étude, menée sur des mitochondries cérébrales de souris, de rats et de cobayes principalement à 2 micromolaires, a testé directement ce désaccord et constaté qu’un blocage du Complexe III peut être franchi. Lorsque l’inhibiteur du site Qo, le myxothiazol, réduisait la respiration basale de 88 percent, le colorant rétablissait la consommation d’oxygène à environ 62 percent du taux non bloqué. Lors d’un test direct, un demi-micromolaire réduisait le cytochrome c exogène même lorsque le Complexe III était bloqué, ce qui étaye une voie allant du NADH, via le colorant, jusqu’au cytochrome c puis au Complexe IV. Mais la respiration récupérée se comportait anormalement : l’ajout d’ADP réduisait la consommation d’oxygène au lieu de l’augmenter, et le blocage de la synthèse d’ATP stimulait la respiration. Le potentiel ne se repolarisait que partiellement. Une forte consommation d’oxygène avec un couplage inversé ne correspond pas à une production énergétique normale.
Pourquoi les laboratoires divergent, et ce qui permet de trancher
L’explication fondée sur l’espèce échoue en premier. Le troisième groupe a répété les travaux chez trois rongeurs et obtenu le même contournement qualitatif chez tous, y compris dans la souche de souris pour laquelle l’absence de contournement avait été rapportée. Ce qui diffère plutôt, ce sont la concentration (1 contre 2 micromolaires), les doses d’inhibiteurs, les tampons, les méthodes d’isolation et, surtout, l’état énergétique comparé : le contournement est le plus net avant l’ajout d’ADP, précisément là où apparaît la réponse paradoxale à l’ADP. Un schéma fidèle doit donc montrer deux sorties dépendantes des conditions, l’une au niveau du site Qo et l’autre au niveau du cytochrome c. Le transporteur livre les électrons là où la chimie locale le permet.
Le coût en peroxyde
Le coût est aussi cohérent que la récupération. Dans les travaux sur le cobaye, le colorant a augmenté la libération de peroxyde dans toutes les conditions testées, au repos, pendant la synthèse d’ATP et en situation d’altération chimique, avec chacun des trois substrats. Pendant la synthèse d’ATP, la production est passée d’environ 148 à plus de 1500 picomoles par minute par milligramme à 1 micromolaire, et même 100 nanomolaires ont plus que quadruplé le signal. Le colorant a également ralenti l’élimination du peroxyde d’environ 2.6 fois, de sorte que le signal reflète à la fois une formation plus rapide et une élimination plus lente. Le mécanisme chimique proposé est une réduction directe de l’oxygène par le colorant réduit sans superoxyde détectable, mais cela reste une interprétation plutôt qu’une étape démontrée.
Les travaux sur la souris compliquent utilement le tableau. Le peroxyde augmentait fortement avec la dose, passant d’une valeur initiale proche de 76 à près de 2000 picomoles par minute par milligramme à 2 micromolaires, tandis que le blocage du Complexe III supprimait la composante induite par le colorant. Si le peroxyde provenait uniquement de la réaction du colorant réduit avec l’oxygène, le blocage de la chaîne ne devrait pas avoir autant d’effet. Or il en a un, ce qui montre que la chaîne participe. La revue des effets antioxydants et pro-oxydants replace cette dualité dans un contexte plus large, et l’analyse oxygène contre ATP explique pourquoi les chiffres de consommation d’oxygène, à eux seuls, ne suffisent jamais à étayer une affirmation sur l’énergie.
Récupération ne signifie pas réparation
L’expression qu’il faut abandonner est « le bleu de méthylène répare-t-il les mitochondries ». Une réparation impliquerait une correction durable : des complexes reconstruits, un couplage qui persiste après le départ du composé, une récupération dans des cellules intactes, puis une amélioration du fonctionnement dans un organisme vivant. Aucun des trois articles ne montre cela. Ils montrent une déviation aiguë du flux dans des organites fraîchement isolés soumis à un blocage chimique artificiel, avec une production d’ATP correspondant à de faibles fractions de la normale et, parfois, un couplage franchement inhabituel. La roténone et l’antimycine sont des outils de laboratoire, pas des modèles du vieillissement ou des maladies mitochondriales humaines, et rien ici ne se traduit par davantage d’énergie chez une personne en bonne santé, ce qui constitue une question distincte sur les preuves avec sa propre littérature chez l’humain.
Trois limites permettent de garder toute conclusion de biohacking rigoureuse. Premièrement, une concentration dans le bain n’est pas une dose : 0.1 à 2 micromolaires autour d’organites isolés ne dit rien sur la quantité orale nécessaire pour produire cette concentration libre au niveau d’une mitochondrie cérébrale humaine, d’autant plus que le colorant s’accumule ou se libère en fonction du potentiel de membrane lui-même. Deuxièmement, l’oxygène n’est pas l’énergie : le colorant peut augmenter la consommation d’oxygène par cyclage et fuite aussi bien que par phosphorylation productive, de sorte qu’une respirométrie sans mesures de l’ATP et du potentiel ne permet pas d’étayer une affirmation sur l’énergie. Troisièmement, bénéfice et charge doivent figurer dans la même phrase : toute affirmation sur une récupération du potentiel ou de l’ATP qui omet l’augmentation concomitante du peroxyde décrit mal l’expérience. Parmi les autres nuances pertinentes figurent l’équilibre redox NAD, la forme de la réponse à la dose et le guide de sélection des essais.
Une remarque pratique : la navette est une propriété de la molécule exacte. Des composés apparentés déméthylés tels que Azure B sont eux aussi actifs sur le plan redox, avec un comportement différent, de sorte qu’une solution partiellement dégradée constitue une expérience différente de celle réalisée avec le colorant intact. C’est l’une des raisons d’exiger la spécification pharmacopéique complète ainsi qu’un document de lot publié, plutôt qu’un simple contrôle limité aux métaux. La chimie induite par la lumière ajoute une réserve parallèle pour les usages sous illumination, abordée dans les associations avec la lumière rouge.
L’affirmation étroite résiste à toutes ces réserves et mérite d’être conservée : le bleu de méthylène peut agir comme un transporteur conditionnel d’électrons dans des mitochondries isolées endommagées, en préservant partiellement le flux au prix d’une production de peroxyde. Tout ce qui va au-delà — énergie, longévité, réparation — attend encore des preuves que ces études n’ont jamais été conçues pour fournir. :::