
Article
Bleu de méthylène en biologie cellulaire : cibles, modèles et effets mesurés
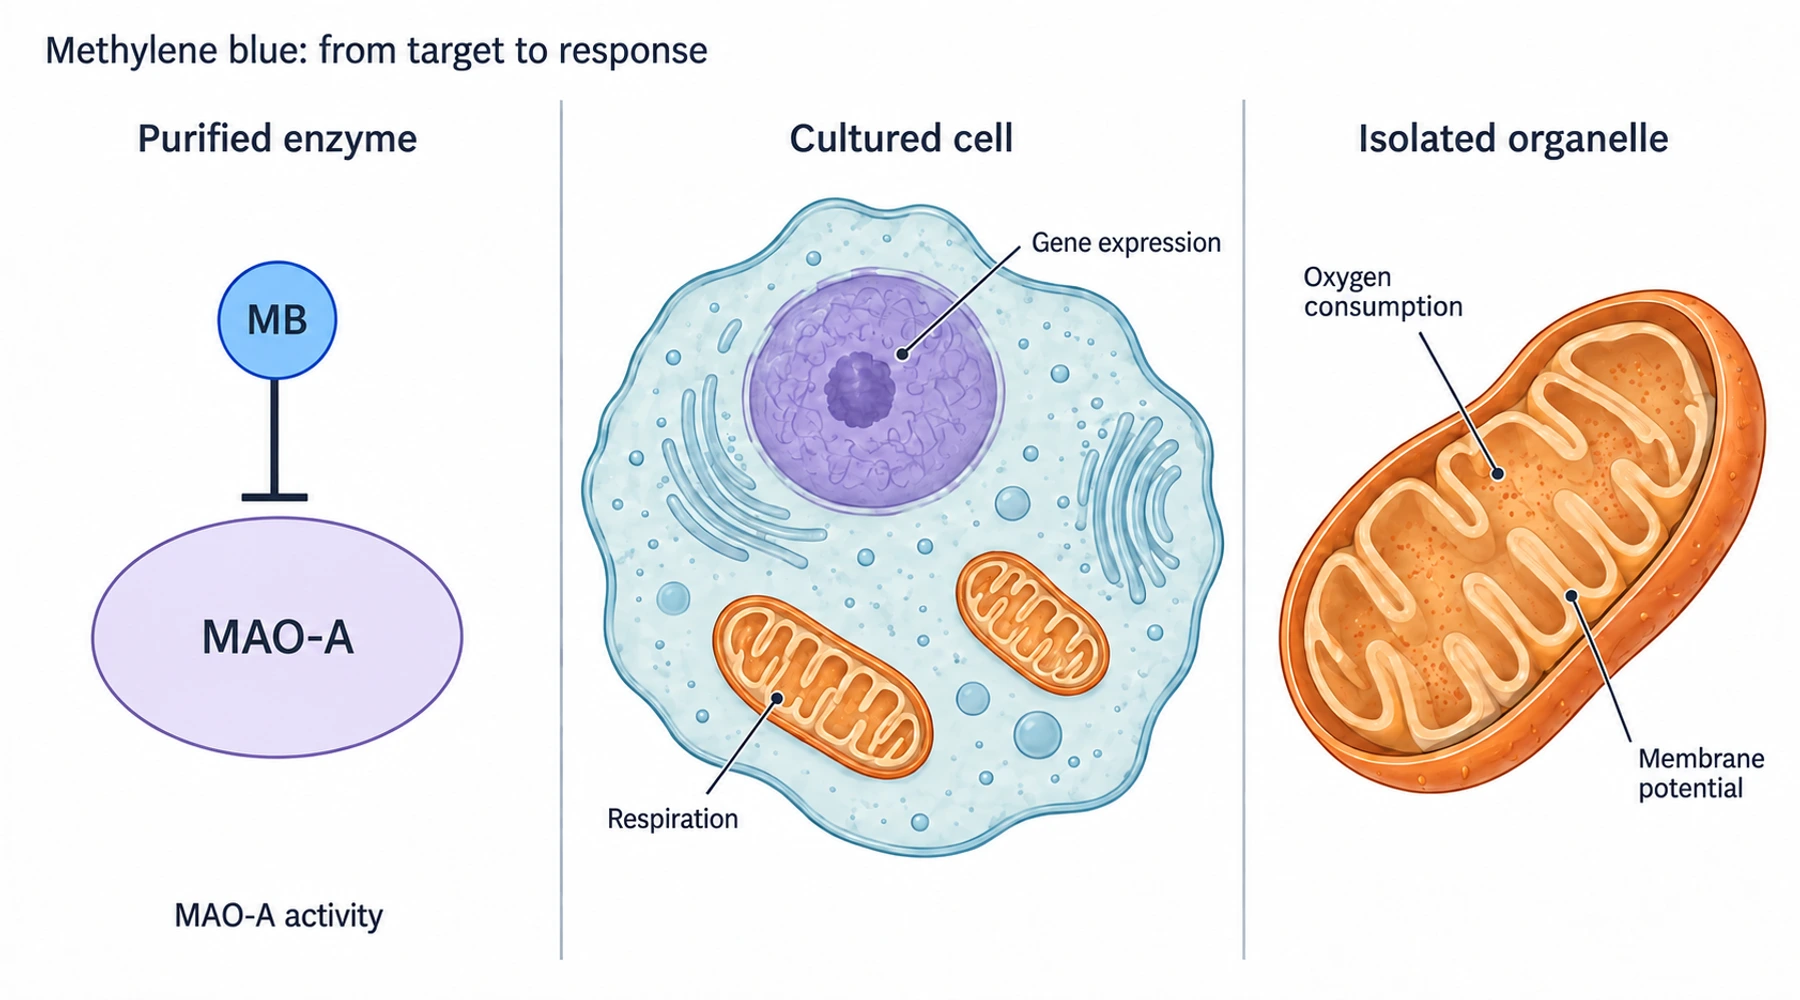
Le bleu de méthylène présente plusieurs actions moléculaires étayées expérimentalement, mais une simple liste de voies masque ce que chaque expérience a réellement établi. Inhiber une enzyme purifiée, modifier la consommation d’oxygène dans des cellules en culture et réduire un signal protéique dans le cerveau de souris sont des observations différentes. Elles nécessitent des contrôles différents et étayent des conclusions différentes.
Cet index de recherche organise ces observations selon le processus, le modèle et le paramètre mesuré. L’illustration de couverture associée est une représentation conceptuelle de systèmes expérimentaux, et non une détermination de structure moléculaire ni une image de microscopie. Pour la chimie sous-jacente, commencez par la chimie redox et les mécanismes biologiques.
Lisez d’abord les catégories de preuves
Les preuves biochimiques testent une protéine ou une réaction définie en dehors d’une cellule intacte. Elles peuvent établir une inhibition ou un transfert d’électrons dans des conditions déterminées. Les preuves cellulaires ajoutent l’absorption, le métabolisme, la compartimentation et les voies en interaction. Les preuves de dépendance examinent si la suppression d’un composant proposé d’une voie abolit la réponse. Les preuves à l’échelle de l’organisme mesurent les effets chez un animal disposant d’une circulation, d’un métabolisme et de plusieurs tissus.
Ces catégories décrivent la question à laquelle il est répondu, plutôt qu’un classement unique. Une expérience de knockout peut identifier un composant de signalisation nécessaire sans montrer que le bleu de méthylène se lie directement à ce composant. Un résultat comportemental chez l’animal peut établir un phénotype sans en identifier la cause moléculaire.
Carte reliée des cibles moléculaires
Lisez chaque ligne horizontalement. La première colonne renvoie à la discussion de la voie ; le lien vers l’étude identifie la base expérimentale. Il s’agit d’une sélection de points d’ancrage mécanistiques, et non d’un catalogue exhaustif de tous les effets cellulaires rapportés.
| Processus ou cible | Système expérimental et type de preuve | Paramètre mesuré et interprétation |
|---|---|---|
| MAO et métabolisme des neurotransmetteurs | MAO-A et MAO-B humaines recombinantes purifiées ; cinétique biochimique | Ramsay et ses collègues ont mesuré l’inhibition enzymatique. La MAO-A était beaucoup plus sensible ; aucun paramètre relatif à l’humeur ou à la sérotonine cérébrale n’a été mesuré. |
| NOS et signalisation cGMP | NO synthase purifiée, cellules endothéliales, vaisseaux isolés ; essais biochimiques et fonctionnels | Mayer et ses collègues ont distingué la formation de citrulline, la production de cGMP et la relaxation. L’inhibition de NOS ne peut pas être requalifiée en inhibition sélective de la guanylyl cyclase soluble. |
| Transport mitochondrial des électrons | Cellules hippocampiques murines transformées HT-22 et réactions biochimiques ; preuves cellulaires et biochimiques | Wen et ses collègues ont mesuré la consommation d’oxygène, l’acidification, l’ATP et le transfert d’électrons dépendant du redox. Ces paramètres ont été évalués séparément. |
| Contournement du complexe III | Mitochondries isolées de cerveau de souris avec inhibiteurs respiratoires ; expérience sur organites | Une étude utilisant l’antimycine sur le complexe III a constaté l’absence de restauration de la respiration et du potentiel membranaire après ce blocage, malgré une restauration partielle après inhibition du complexe I. |
| Nrf2 et biogenèse mitochondriale | Fibroblastes embryonnaires de souris de type sauvage et knockout pour Nrf2 ; dépendance génétique | Stack et ses collègues ont mesuré les transcrits de réponse antioxydante. La disparition de l’induction dans les cellules knockout étaye une dépendance à Nrf2, et non une liaison directe à Nrf2. |
| Autophagie et signalisation mTOR | Cellules d’ovaire de hamster chinois exprimant la tau humaine ; expériences avec rapporteurs et knockdown | Congdon et ses collègues ont étudié les rapporteurs LC3, la phosphorylation des kinases et tau. Le knockdown de BECN1 a supprimé la réponse observée de diminution de tau. |
| Gestion de tau et élimination des protéines | Essai sur Hsp70 purifiée et cellules HeLa exprimant la tau humaine ; preuves biochimiques et cellulaires | Jinwal et ses collègues ont relié l’inhibition de l’ATPase à une réduction de tau dépendante du protéasome. Cela diffère de l’empêchement de l’assemblage de fibrilles de tau purifiée. |
| Formation de condensats de tau | Gouttelettes reconstituées de tau recombinante ; essai distinct de cytotoxicité sur SH-SY5Y | Une étude de séparation de phase de 2023 a mesuré la formation de gouttelettes et la gélification in vitro, puis évalué la viabilité cellulaire par MTT après exposition à des espèces de tau incubées. L’essai cellulaire n’a pas mesuré la formation de condensats intracellulaires. |
La carte téléchargeable des cibles moléculaires conserve les liens vers les études primaires, les catégories de preuves et les principales conditions expérimentales dans un document texte réutilisable.
Ce que distinguent les expériences primaires
L’inhibition enzymatique dépend du contexte de l’essai
L’étude sur des enzymes humaines purifiées a rapporté une constante d’inhibition de la MAO-A, Ki = 27 ± 3 nM, obtenue à l’aide d’une analyse de liaison forte. Son IC50 pour la MAO-A était de 164 ± 8 nM dans les conditions d’essai indiquées. Ki et IC50 ne sont pas interchangeables : cette dernière dépend des conditions relatives à l’enzyme et au substrat utilisées pour mesurer la demi-inhibition. Aucun de ces nombres ne correspond à une dose humaine ni à une concentration tissulaire prédite.
La comparaison portant sur NOS est tout aussi instructive. La NO synthase purifiée a perdu toute l’activité mesurée de formation de citrulline à 30 μM de bleu de méthylène. Dans le même article, la guanylyl cyclase stimulée par le S-nitrosoglutathion nécessitait environ 60 μM pour atteindre la demi-inhibition. Ainsi, une diminution du cGMP cellulaire ne permet pas à elle seule de localiser l’effet au niveau de la guanylyl cyclase. Elle peut refléter une réduction de la production du NO qui l’active.
La respiration n’est pas synonyme de production d’ATP
Dans l’étude sur les cellules HT-22, les chercheurs ont utilisé l’oligomycine, le FCCP et la roténone pour étudier le comportement respiratoire. Ils ont également mesuré l’ATP indépendamment. Leur comparateur FCCP a augmenté la consommation d’oxygène tout en diminuant l’ATP cellulaire, illustrant directement pourquoi une courbe de consommation d’oxygène ne peut pas, à elle seule, répondre à la question concernant l’ATP. Le guide consacré à la consommation d’oxygène par rapport à l’ATP développe cette distinction.
Des travaux ultérieurs sur des mitochondries isolées de cerveau de souris ont utilisé des substrats comprenant le pyruvate et le malate. À 1 μM, le bleu de méthylène a partiellement restauré la respiration inhibée par la roténone, mais a eu peu d’effet après l’antimycine. Ce résultat limite toute affirmation universelle selon laquelle le colorant contourne toujours à la fois les complexes I et III. L’espèce, la préparation mitochondriale, les substrats, les inhibiteurs et les conditions d’essai doivent accompagner tout schéma proposé de transfert d’électrons.
Une réponse génique ne prouve pas l’engagement direct d’une cible
Dans l’expérience sur Nrf2, 0.1, 1 et 10 μM de bleu de méthylène ont augmenté le transcrit HO1 dans des fibroblastes embryonnaires de souris de type sauvage, tandis que la réponse était absente dans les cellules knockout pour Nrf2. Cette comparaison génétique apporte davantage d’informations sur la dépendance à la voie que la seule mesure de l’expression dans des cellules traitées.
Elle ne résout toutefois pas l’événement moléculaire initial. La transcription dépendante de Nrf2, la biogenèse mitochondriale, la modification de l’équilibre NAD+/NADH et la signalisation AMPK doivent rester des entrées distinctes jusqu’à ce qu’une expérience les relie. L’augmentation de l’expression d’un gène mitochondrial ne permet pas d’établir que les cellules ont produit davantage de mitochondries fonctionnelles.
L’élimination des protéines emprunte plusieurs voies
L’étude sur l’autophagie a exposé des cellules CHO exprimant tau à 0.01 μM de bleu de méthylène pendant six heures et les a comparées à un véhicule. Un rapporteur LC3 tandem rouge/vert a permis de distinguer les vésicules précoces des autolysosomes acidifiés ; la bafilomycine a fourni une condition de comparaison dans laquelle le flux était altéré. Le knockdown de BECN1 a permis de tester si la machinerie autophagique contribuait à la réduction de tau. Ces expériences vont au-delà du simple comptage des structures LC3-positives, qui peuvent s’accumuler aussi bien lorsque leur formation augmente que lorsque leur élimination ralentit.
À l’inverse, l’étude sur Hsp70 a examiné l’activité ATPase et l’élimination de tau dépendante du protéasome dans un autre système cellulaire. Les expériences de 2023 sur les condensats posaient encore une autre question : comment les molécules de tau forment des gouttelettes et modifient leurs propriétés matérielles. La tau totale, la tau phosphorylée, les fibrilles insolubles et les condensats de type gel sont des paramètres distincts. Les regrouper sous une seule affirmation « anti-tau » efface le mécanisme réellement testé.
Choisir la prochaine expérience selon la distinction manquante
Pour un nouvel article, relevez l’identité chimique exacte, la concentration, la durée d’exposition, le solvant, les conditions d’illumination, le modèle, le comparateur et le paramètre mesuré avant d’interpréter son schéma de voie. Faites correspondre l’essai à l’affirmation : la respiration au flux respiratoire, l’ATP à la disponibilité énergétique, la cinétique enzymatique à l’inhibition et la perturbation génétique à la dépendance à une voie.
Le guide sur la relation dose-réponse traite des réponses qui changent de direction selon les concentrations. Le guide sur les effets antioxydants et pro-oxydants distingue le cycle redox d’une qualification universelle d’antioxydant. L’entrée dans les cellules et la répartition membranaire expliquent pourquoi la concentration nominale dans le milieu ne correspond pas automatiquement à l’exposition intracellulaire ; les recherches sur Azure B expliquent pourquoi des espèces de colorants apparentées ne doivent pas être considérées comme interchangeables.
La littérature plus large couvre également l’activité des caspases, la ferroptose, la signalisation inflammatoire et la sénescence cellulaire. Ces pistes sont utiles lorsque le paramètre étudié est la mort cellulaire, la signalisation des cytokines ou un arrêt persistant de la croissance. Elles ne constituent pas une preuve supplémentaire que chaque action moléculaire se produit dans la même cellule à la même concentration. Cette carte présente des voies étayées par des preuves expérimentales ; elle ne transforme pas ces expériences en bénéfices cliniques. :::