
Článok
Experimenty, ktoré spojili metylénovú modrú s bunkovým dýchaním
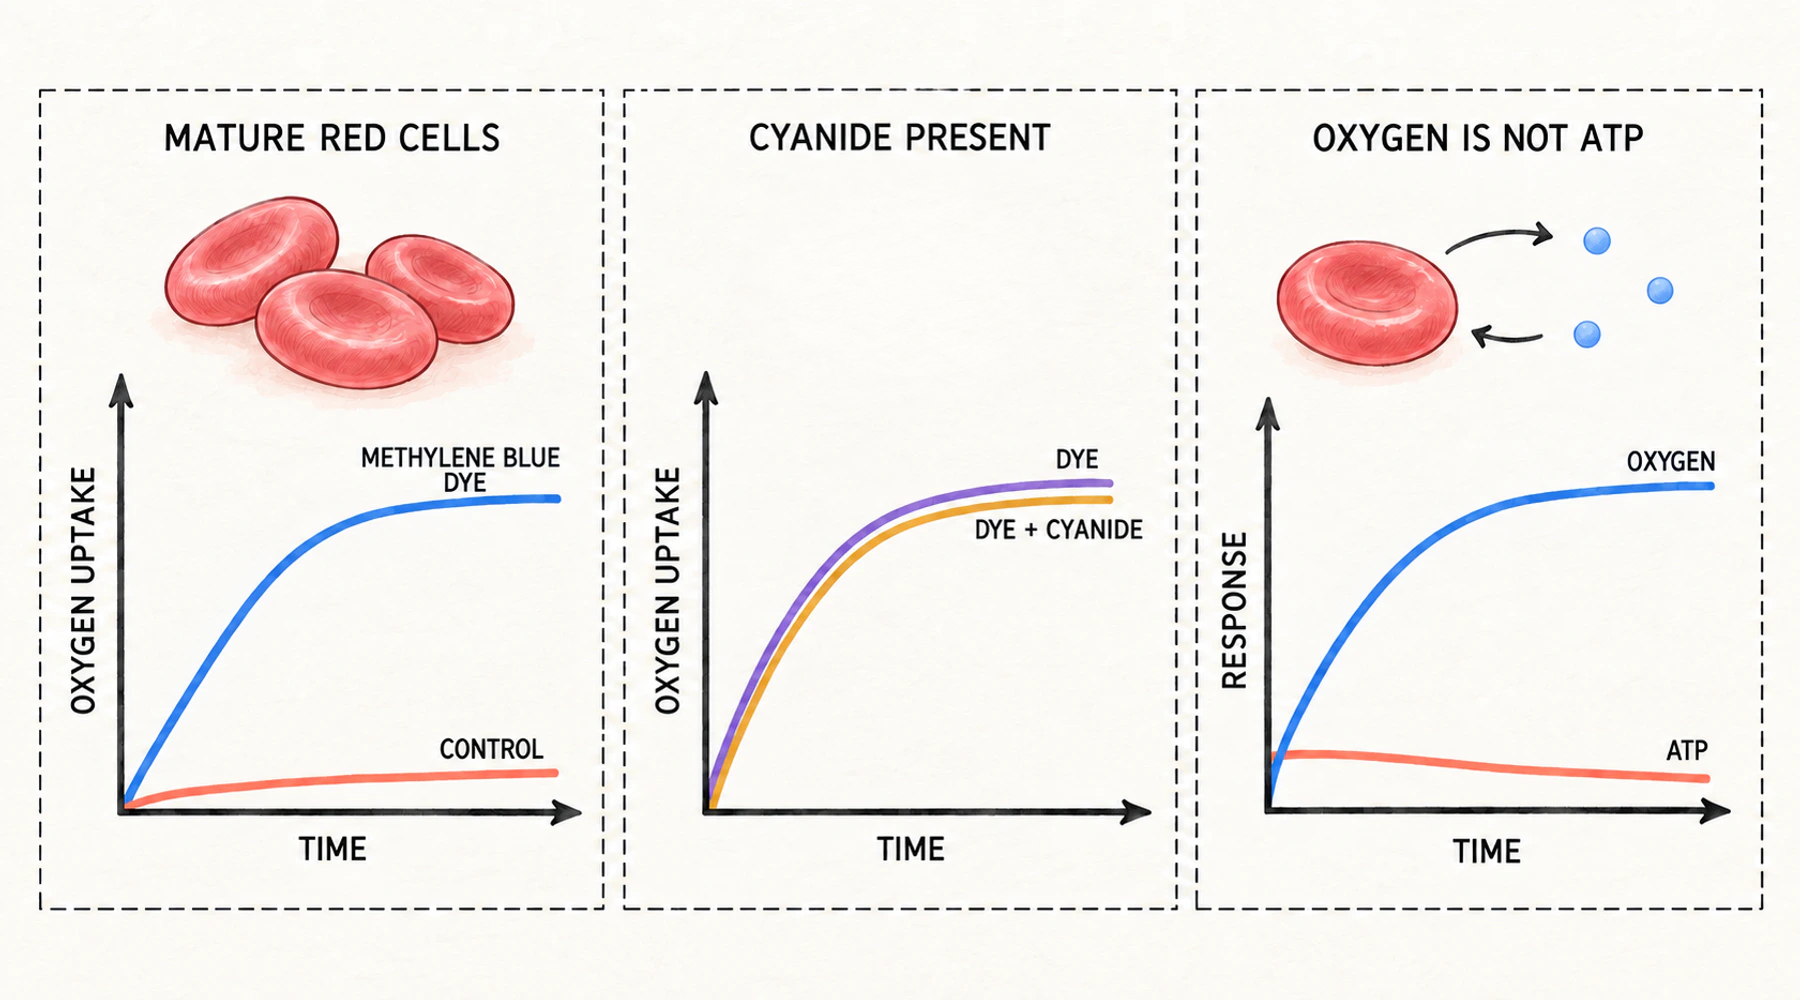
Defibrinovaná ľudská krv udržiavaná pri 37 °C počas troch hodín spotrebuje približne dve percentá kyslíka, ktorý obsahuje. Ak sa pred inkubáciou pridá malé množstvo metylénovej modrej, tá istá krv spotrebuje približne šesťdesiatpäť percent. Na bunkách sa nič nezmenilo. Zmenil sa len roztok.
Tento údaj pochádza z článku Georgea Harropa a E. S. Guzmana Barrona z Johns Hopkins z roku 1928 a je pôvodom často opakovaného tvrdenia, že metylénová modrá zlepšuje bunkové dýchanie. Toto tvrdenie nie je nepravdivé, ale má užší význam, než sa na prvý pohľad zdá.
Čo číslo v tabuľke skutočne meria
Meraným ukazovateľom bola spotreba kyslíka stanovená analýzou plynov. Harrop a Barron prefiltrovali čerstvo odobratú krv cez vatu pri 10 °C, aby odstránili biele krvinky, nasýtili vzorku kyslíkom, rozdelili ju, do jednej časti pridali farbivo a po inkubácii obe analyzovali. Počet leukocytov zriedka presahoval približne tisíc na kubický milimeter. Spotrebu kyslíka uvádzali ako podiel počiatočného obsahu kyslíka vo vzorke, ktorý zmizol.
Merali aj oxid uhličitý, no pri ňom narážali na obmedzenia metódy. Defibrinovaná krv počas prvej hodiny inkubácie uvoľnila až dva milimoly oxidu uhličitého na 100 mL z dôvodov nesúvisiacich so skúmanou reakciou, takže respiračné kvocienty z plnej krvi boli nepoužiteľné. Interpretovateľné hodnoty poskytli iba premyté bunky v Lockeho roztoku a tie sa s farbivom aj bez neho pohybovali medzi 0.73 a 0.80.
Tento detail nie je nepodstatný. „Dýchanie“ v týchto článkoch znamená výmenu plynov v uzavretej nádobe. Rozdiel medzi spotrebou kyslíka a tvorbou využiteľnej energie sa samostatne rozoberá v článku čo vám spotreba kyslíka hovorí a nehovorí o ATP.
Farbivo pridávalo najviac tam, kde bunky dýchali najmenej
Zrelé erytrocyty cicavcov nemajú takmer žiadnu merateľnú spotrebu kyslíka. Jadrové erytrocyty vtákov ju majú. Harrop a Barron skúmali oba typy a tento kontrast tvorí jadro ich argumentácie.
Vo vzorkách cicavcov spôsobilo farbivo dvadsať- až päťdesiatnásobné zvýšenie. V krvi husí, ktorých bunky už dýchali, rýchlosť nikdy nezvýšilo viac než dvojnásobne. Čím vyššie bolo východiskové dýchanie, tým menej ho farbivo dokázalo zvýšiť.
Rovnaký vzťah sa objavuje aj v rámci jedného druhu. Ľudská vzorka od pacienta s pravou polycytémiou, ktorá obsahovala nezrelé bunky, spotrebovala bez farbiva 11.3 percenta svojho kyslíka, oproti 2.8 percenta pri premytých bunkách zdravého darcu. Farbivo ju zvýšilo iba na 63.4 percenta, teda na šesťnásobok, zatiaľ čo pri normálnych bunkách išlo o takmer tridsaťnásobné zrýchlenie. Farbivo posúvalo správanie zrelých buniek smerom k správaniu nezrelých, čo zodpovedalo vysvetleniu autorov.
Kyanid to mal zastaviť
Bolo známe, že kyanid zastavuje bunkovú oxidáciu. Harrop a Barron ho napriek tomu pridali spolu s farbivom.
Výsledky s hovädzou krvou sú reprezentatívne. Bez prísad klesol obsah kyslíka za tri hodiny z 22.61 na 22.03 objemových percent. S metylénovou modrou klesol na 12.84. S metylénovou modrou a kyanidom draselným v koncentrácii jednej päťtisíciny moláru klesol na 12.74. Účinok farbiva zostal v podstate nedotknutý.
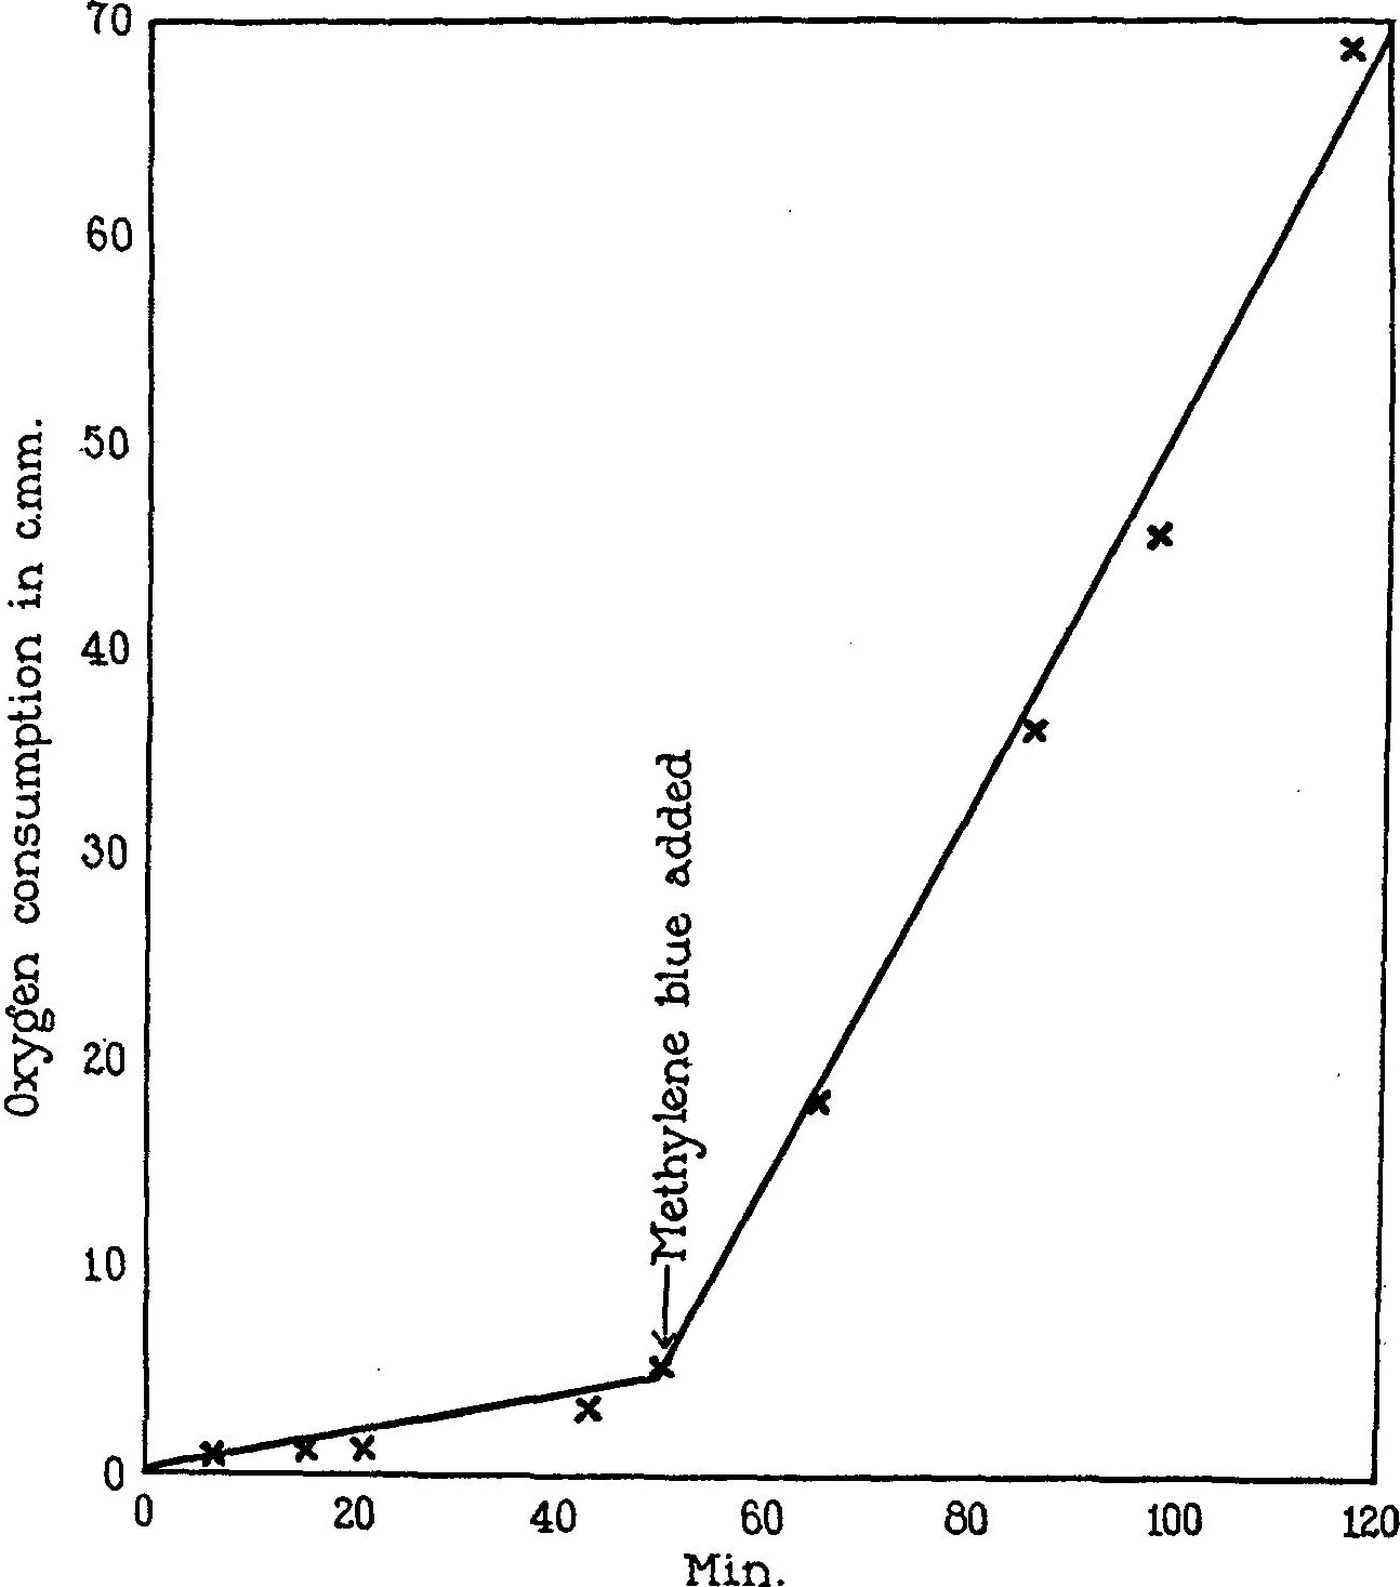
Obrázok: priebežný mikrorespirometrický záznam ľudských erytrocytov. Šípka označuje pridanie metylénovej modrej. Pred jej pridaním je krivka takmer vodorovná; potom sústavne stúpa. Prevzaté z článku Harropa a Barrona, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Dospeli k záveru, že farbivo pôsobí ako prenášač kyslíka, „dodávajúci látku, ktorá zo zrelých bezjadrových erytrocytov cicavcov vymizla“. O dva roky neskôr Michaelis a Salomon z Rockefellerovho inštitútu sformulovali rozpor v podobe, ktorá pretrvala. Buď bol účinok farbiva „náhodnou vlastnosťou farbiva“, alebo bolo farbivo „modelom nejakej neznámej látky v organizmoch“. Táto otázka zostáva otvorená. Zmenilo sa to, že bunky dnes dokážeme opísať oveľa presnejšie.
Pečeňový extrakt pôsobil rovnako
Michaelis a Salomon ukázali, že extrakty orgánov pripravené studenou vodou vyvolávajú rovnakú stimuláciu. Najsilnejší účinok mala pečeň potkana, po nej oblička, slezina a semenník. Mozog, sval a krvné sérum mali malý alebo žiadny účinok.
Potom skúšali extrakt v prítomnosti oxidu uhoľnatého. Dýchanie vyvolané extraktom alebo farbivom sa v zmesi 98 percent oxidu uhoľnatého a 2 percent kyslíka nezmenilo. Rovnaká zmes plynov inhibovala dýchanie kvasiniek aj jadrových erytrocytov hydiny približne o 60 až 80 percent, v súlade s Warburgovým opisom respiračného fermentu citlivého na oxid uhoľnatý. Neidentifikovaná tkanivová látka teda nebola Warburgovým enzýmom.
Postupne vylúčili niekoľko kandidátov. Redukovaný glutatión a cysteín vyvolali iba spotrebu kyslíka potrebnú na ich vlastnú oxidáciu. Hardenov a Youngov koenzým vylúčili, pretože sval ho obsahuje najviac, no vykazoval takmer najmenší účinok. Keilinov cytochróm, pomenovaný o niekoľko rokov skôr, narazil na rovnaký rozpor. Svoju vlastnú domnienku, že aktívna látka pochádza z bunkového jadra, označili len za domnienku.
Účinok závisel od podmienok
Bunky museli zostať neporušené. Hemolýza vyvolaná destilovanou vodou alebo opakovaným zmrazovaním zrušila reakciu na farbivo aj extrakt a čiastočná hemolýza ju úmerne znížila.
Potrebný bol aj cukor. Glukóza, fruktóza a sacharóza podporovali dýchanie vyvolané farbivom; manitol nie. Bez cukru nedochádzalo k žiadnemu dýchaniu a zdalo sa, že farbivo pritom poškodzuje bunky, takže glukóza pridaná o jednu alebo dve hodiny neskôr ho neobnovila. Autori predpokladali, že farbivo oxiduje štruktúrnu zložku, ktorú bunka potrebuje.
Osvetlenie výrazne zvyšovalo účinok farbiva, hoci účinok bol zreteľný aj v tme. Iné redukovateľné farbivá sa správali odlišne: toluylénová modrá dosahovala alebo prekonávala účinok metylénovej modrej, zatiaľ čo indigodisulfonát nepôsobil takmer vôbec. Medzi oxidačno-redukčným potenciálom farbiva a veľkosťou jeho účinku sa neobjavil jednoznačný vzťah, čo autori pripisovali priepustnosti membrány a toxicite.
Účinok súvisel s fermentáciou, nie s dýchaním
Barronova štúdia z roku 1930 prešla od bunkových suspenzií k rezom tkanív normálnych orgánov potkanov a transplantovaných nádorov.
V tkanivách bez aeróbnej glykolýzy metylénová modrá nepôsobila alebo mierne potláčala spotrebu kyslíka: v obličke približne o 14 percent, v pankrease približne o 14 percent a v pečeni približne o 5 percent. V tkanivách, ktoré fermentujú za prítomnosti kyslíka, spotrebu zvýšila: v slezine približne o 8 percent a v mozgu približne o 13 percent. Zvýšenie v nádoroch siahalo od približne 27 percent pri ľudskom karcinóme prsníka po viac než 80 percent pri Rousovom sarkóme kurčaťa, približne úmerne aeróbnej glykolýze jednotlivých tkanív.
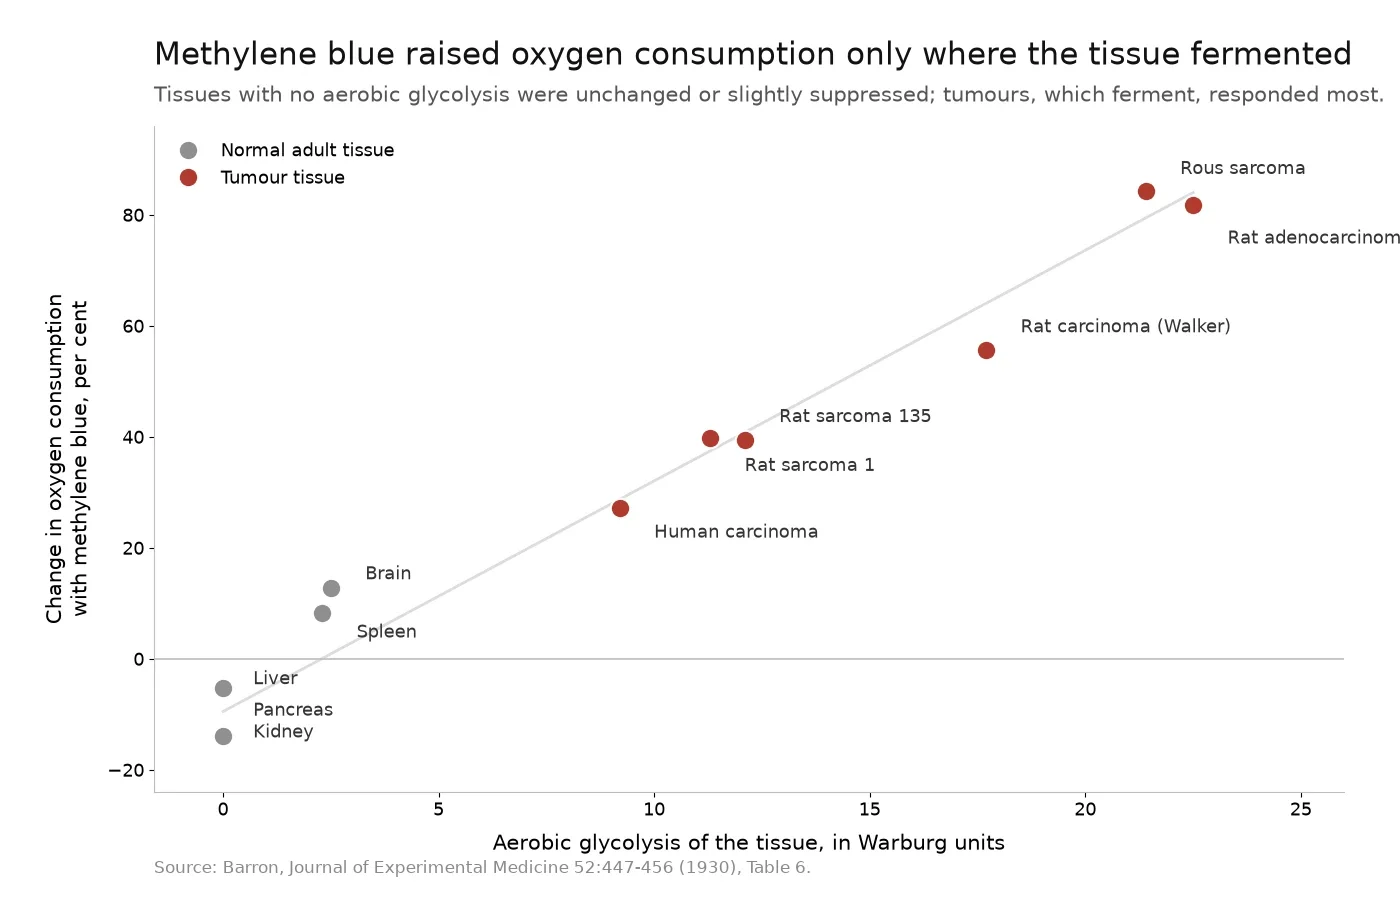
Obrázok: každý bod predstavuje jeden typ tkaniva. Vodorovná os znázorňuje aeróbnu glykolýzu; zvislá os zmenu spotreby kyslíka po pridaní metylénovej modrej. Údaje z článku Barrona, Journal of Experimental Medicine 52:447–456 (1930), tabuľka 6, PMID 19869777.
Experiment s kyanidom potom priniesol zrkadlovo opačný obraz. Keď sa dýchanie v tkanivách, ktoré predtým nereagovali, zablokovalo kyanidom a prejavila sa fermentácia, farbivo opäť zvýšilo spotrebu kyslíka: v obličke približne o 59 percent, v pečeni približne o 19 percent, v slezine približne o 286 percent a v semenníku približne o 200 percent.
Barron navrhol, že farbivo by mohlo slúžiť ako test fermentačnej schopnosti bunky alebo tkaniva, a na záver vyslovil domnienku: opakované kultivovanie nádorových buniek počas viacerých generácií v médiu obsahujúcom farbivo by jedného dňa mohlo natrvalo priblížiť metabolizmus nádoru metabolizmu normálneho tkaniva. Bola to výskumná otázka napísaná v roku 1930. Nie je to tvrdenie o liečbe.
Čo tieto experimenty nemohli merať
V rokoch 1928 a 1930 znamenalo „dýchanie“ spotrebu kyslíka. Adenozíntrifosfát bol prvýkrát opísaný v roku 1929 a dôkaz, že izolované mitochondrie pri prenose elektrónov esterifikujú fosfát, prišiel v roku 1949. Žiadny z raných článkov o metylénovej modrej nemohol merať tvorbu energie a žiadny z nich to ani netvrdil.
Druhým problémom sú bunky. Zrelé erytrocyty cicavcov neobsahujú mitochondrie. Počas štádia retikulocytu odstraňujú mitochondrie a ribozómy selektívnou autofágiou, preto zrelá červená krvinka získava energiu glykolýzou a jej pentózofosfátová dráha slúži najmä na tvorbu NADPH, nie ATP. V experimentoch z roku 1928 nebol prítomný žiadny elektrónový transportný reťazec, ktorý by sa dal opraviť. Čokoľvek spotrebúvalo kyslík, robilo niečo iné.
Čo bolo týmto iným procesom, je dnes pomerne dobre opísané. Metylénová modrá prijíma elektróny z bunkových redukčných ekvivalentov a mení sa na leukometylénovú modrú, ktorú molekulový kyslík opäť oxiduje, čím sa cyklus uzatvára. V ľudských červených krvinkách vykonávajú redukčný krok flavínreduktáza závislá od NADPH a príbuzné disulfidreduktázy. Štúdia z roku 1976 s použitím značenej glukózy zistila, že farbivo stimuluje hexózomonofosfátový skrat, že účinok pri nízkej koncentrácii závisel od oxyhemoglobínu a že vyššia koncentrácia, 0.1 mM, vytvárala peroxid vodíka. Keď sa redukované farbivo stretne s kyslíkom, vzniká peroxid, nie fosfátové väzby.
V mitochondriách je situácia spornejšia, než pripúšťajú populárne zhrnutia. Jeden smer výskumu zastáva názor, že farbivo odoberá elektróny z oblasti komplexu I a odovzdáva ich cytochrómu c. Ďalší zistil, že v mitochondriách myšieho mozgu nedokáže obnoviť dýchanie po blokáde antimycínom, a namiesto toho umiestnil akceptor elektrónov na väzbové miesto ubichinolu v komplexe III. Tretí zistil, že nízke koncentrácie zvýšili pokojovú spotrebu kyslíka, zatiaľ čo dýchanie stimulované ADP zostalo nezmenené. Najpriamejším vyjadrením podstaty je, že spotreba kyslíka vyvolaná metylénovou modrou vôbec nezávisí od oxidačnej fosforylácie: pretrvávala pri inhibícii respiračného reťazca aj v preparátoch, ktoré ho nemali.
Existujú aj priame merania rozdielu medzi týmito dvoma veličinami. V izolovaných mitochondriách pečene potkanov zvyšovanie koncentrácie farbiva znižovalo pomery respiračnej kontroly a spôsobovalo napúčanie, čo autori opísali ako rozpojenie oxidačnej fosforylácie. V perfundovanej pečeni potkana metylénová modrá zvýšila spotrebu kyslíka, zatiaľ čo pomer ATP k ADP klesol.
Klinické záznamy prinášajú rovnaké posolstvo. Methemoglobinémia sa lieči približne jedným až dvoma miligramami metylénovej modrej na kilogram intravenózne prostredníctvom redukčnej dráhy závislej od NADPH a vyššie dávky vyvolávajú stav, ktorý sa má liečiť. Ten istý prehľad uvádza, že antidotický účinok je najväčší v neporušených erytrocytoch a pri hemolýze sa znižuje, čo je poznatok o hemolýze z roku 1930, ktorý sa o sedemdesiattri rokov neskôr znovu objavil v nemocničnom prostredí. Pri látke, ktorej užitočné a škodlivé účinky ležia na opačných stranách dávkového prahu, by sa dávka nemala odvodzovať z merania spotreby kyslíka.
Prečo do diskusie patrí aj šarža
Harrop a Barron si všimli niečo, čo stojí za opätovné prečítanie. Samotná metylénová modrá vytvára v spektroskope pás medzi dvoma charakteristickými pásmi methemoglobínu, „čo môže pri zbežnom pozorovaní ľahko viesť k zámene“. Farbivo môže napodobňovať hľadanú látku.
Rovnaký problém má aj chemickú podobu. Príbuzný fenotiazín prítomný ako minoritná zložka má vlastné redoxné správanie, vlastnú priepustnosť a vlastnú toxicitu. Jeden zdokumentovaný prípad ukazuje konkrétne dôsledky: v štúdii jodácie metylénovej modrej tvorili vzorky obsahujúce približne 7 až 8 percent Azure B prevažne jodovaný Azure B, takže reakcii dominovala nečistota, nie metylénová modrá.
Každý, kto používa metylénovú modrú ako činidlo v laboratóriu, pri farbení preparátov alebo v akváriu, pracuje s nešpecifikovanou zložkou, pokiaľ šarža nebola charakterizovaná. Príbuzné látky, identita, elementárne nečistoty, zvyškové rozpúšťadlá a zvyšok po žíhaní sú súčasťou experimentu, nie iba sprievodnou administratívou. Blupreme získava metylénovú modrú od farmaceutického výrobcu a zverejňuje úplný certifikát analýzy, pričom testuje celú špecifikáciu USP, nielen ťažké kovy; sprievodca čítaním certifikátu analýzy a článok čo označenie kvality USP potvrdzuje a čo nie vysvetľujú, ako porovnať dokument s tvrdením.
Číslo bolo správne
Experimenty z rokov 1928 a 1930 boli dôsledné a ich hlavné pozorovanie obstálo: redukovateľné farbivo dokáže prinútiť bunku, ktorá takmer nedýcha, spotrebúvať kyslík mnohonásobne rýchlejšie než v pokojovom stave bez toho, aby prechádzala krokom, ktorý blokuje kyanid.
Chyba sa objavuje až neskôr, keď sa „dýchanie“ chápe v jeho modernom význame. Meranie výmeny plynov vám hovorí, že elektróny sa dostali ku kyslíku. Nehovorí vám, že sa niektoré z nich využili na tvorbu ATP, a v bunke bez mitochondrií je rozdiel medzi týmito dvoma tvrdeniami najväčší možný. Širší prehľad toho, čo metylénová modrá robí v bunkách zasadzuje rovnaké rozlíšenie do širšieho rámca a história tejto zlúčeniny od farbiva po liečivo vysvetľuje, ako sa textilné farbivo vôbec dostalo k týmto experimentom.