
Articol
Experimentele care au legat albastrul de metilen de respirația celulară
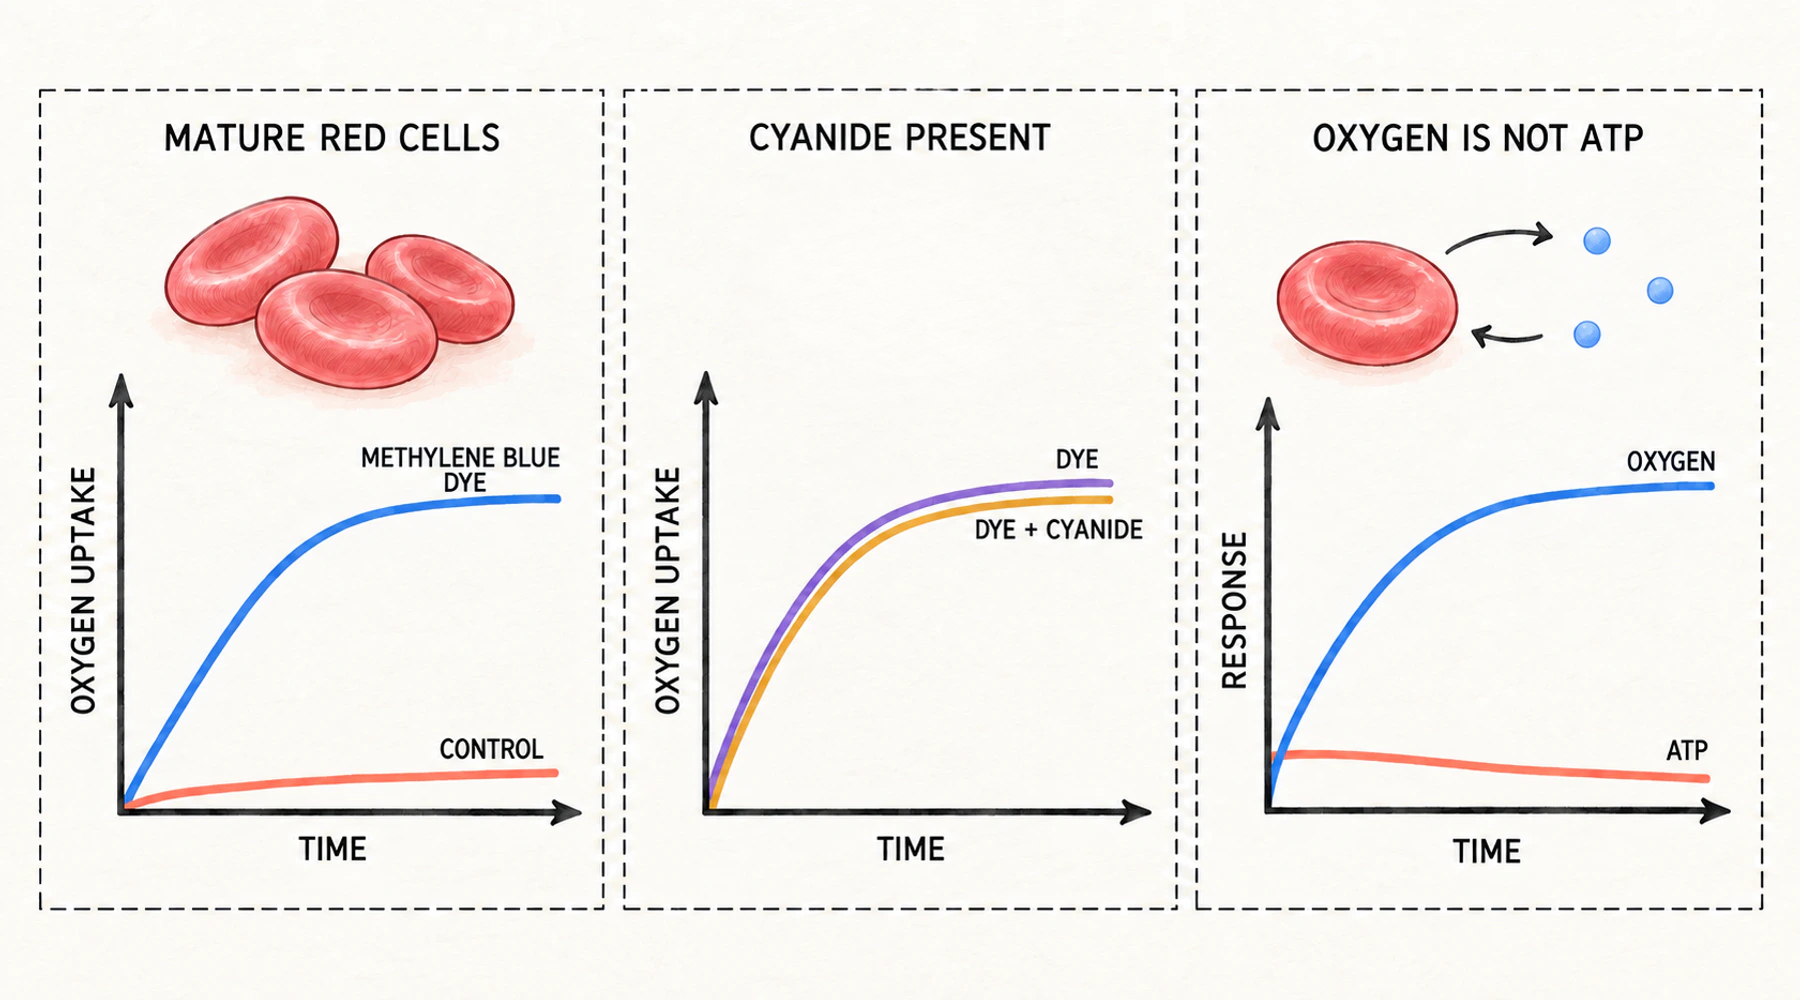
Sângele uman defibrinat, încălzit la 37 °C timp de trei ore, consumă aproximativ două procente din oxigenul pe care îl conține. Dacă se adaugă o cantitate mică de albastru de metilen înainte de incubare, același sânge consumă aproximativ șaizeci și cinci de procente. Celulele nu s-au schimbat cu nimic. Doar soluția s-a schimbat.
Această valoare provine dintr-un articol publicat în 1928 de George Harrop și E. S. Guzman Barron la Johns Hopkins și stă la originea afirmației, repetate frecvent, că albastrul de metilen îmbunătățește respirația celulară. Afirmația nu este falsă, dar are un sens mai restrâns decât pare.
Ce măsoară de fapt valoarea din tabel
Parametrul măsurat a fost consumul de oxigen, determinat prin analiza gazelor. Harrop și Barron au filtrat sânge proaspăt recoltat prin vată la 10 °C pentru a îndepărta leucocitele, au saturat proba cu oxigen, au împărțit-o, au adăugat colorant într-o porțiune și le-au analizat pe amândouă după incubare. Numărul leucocitelor depășea rareori aproximativ o mie pe milimetru cub. Consumul de oxigen a fost raportat ca proporția din conținutul inițial de oxigen al probei care dispăruse.
Au măsurat și dioxidul de carbon, însă aici metoda le-a creat dificultăți. Sângele defibrinat elibera până la doi milimoli de dioxid de carbon la 100 mL în prima oră de incubare, din motive fără legătură cu reacția studiată, astfel încât coeficienții respiratori obținuți din sângele integral nu puteau fi folosiți. Doar celulele spălate, aflate în soluție Locke, au oferit valori interpretabile, iar acestea se situau între 0.73 și 0.80, atât cu colorant, cât și fără.
Acest detaliu nu este lipsit de importanță. „Respirație” în aceste articole înseamnă schimb de gaze într-un vas închis. Diferența dintre consumul de oxigen și producția de energie utilă este examinată separat în ce vă spune și ce nu vă spune consumul de oxigen despre ATP.
Colorantul a avut cel mai mare aport acolo unde celulele respirau cel mai puțin
Eritrocitele mature ale mamiferelor nu au aproape niciun consum de oxigen măsurabil. Eritrocitele nucleate ale păsărilor au. Harrop și Barron le-au testat pe ambele, iar contrastul constituie baza argumentului lor.
În probele provenite de la mamifere, colorantul a produs creșteri de douăzeci până la cincizeci de ori. În sângele de gâscă, ale cărui celule respirau deja, nu a crescut niciodată rata la mai mult de dublu. Cu cât respirația inițială era mai intensă, cu atât aportul colorantului era mai mic.
Același gradient apare în cadrul aceleiași specii. O probă de sânge uman de la un pacient cu policitemie vera, care conținea celule imature, consuma 11.3 la sută din oxigen fără colorant, față de 2.8 la sută pentru celulele spălate de la un donator sănătos. Colorantul a dus consumul doar până la 63.4 la sută, o accelerare de șase ori, în timp ce celulele normale înregistrau o accelerare de aproape treizeci de ori. Colorantul apropia comportamentul celulelor mature de cel al celor imature, exact așa cum susțineau autorii.
Cianura ar fi trebuit să oprească procesul
Se știa că cianura oprește oxidarea celulară. Harrop și Barron au adăugat-o totuși, alături de colorant.
Rezultatele obținute cu sânge bovin sunt reprezentative. Fără nicio substanță adăugată, conținutul de oxigen a scăzut de la 22.61 la 22.03 volume la sută în trei ore. Cu albastru de metilen, a scăzut la 12.84. Cu albastru de metilen și cianură de potasiu la o concentrație de o cincimiime molară, a scăzut la 12.74. Efectul colorantului a rămas practic neatins.
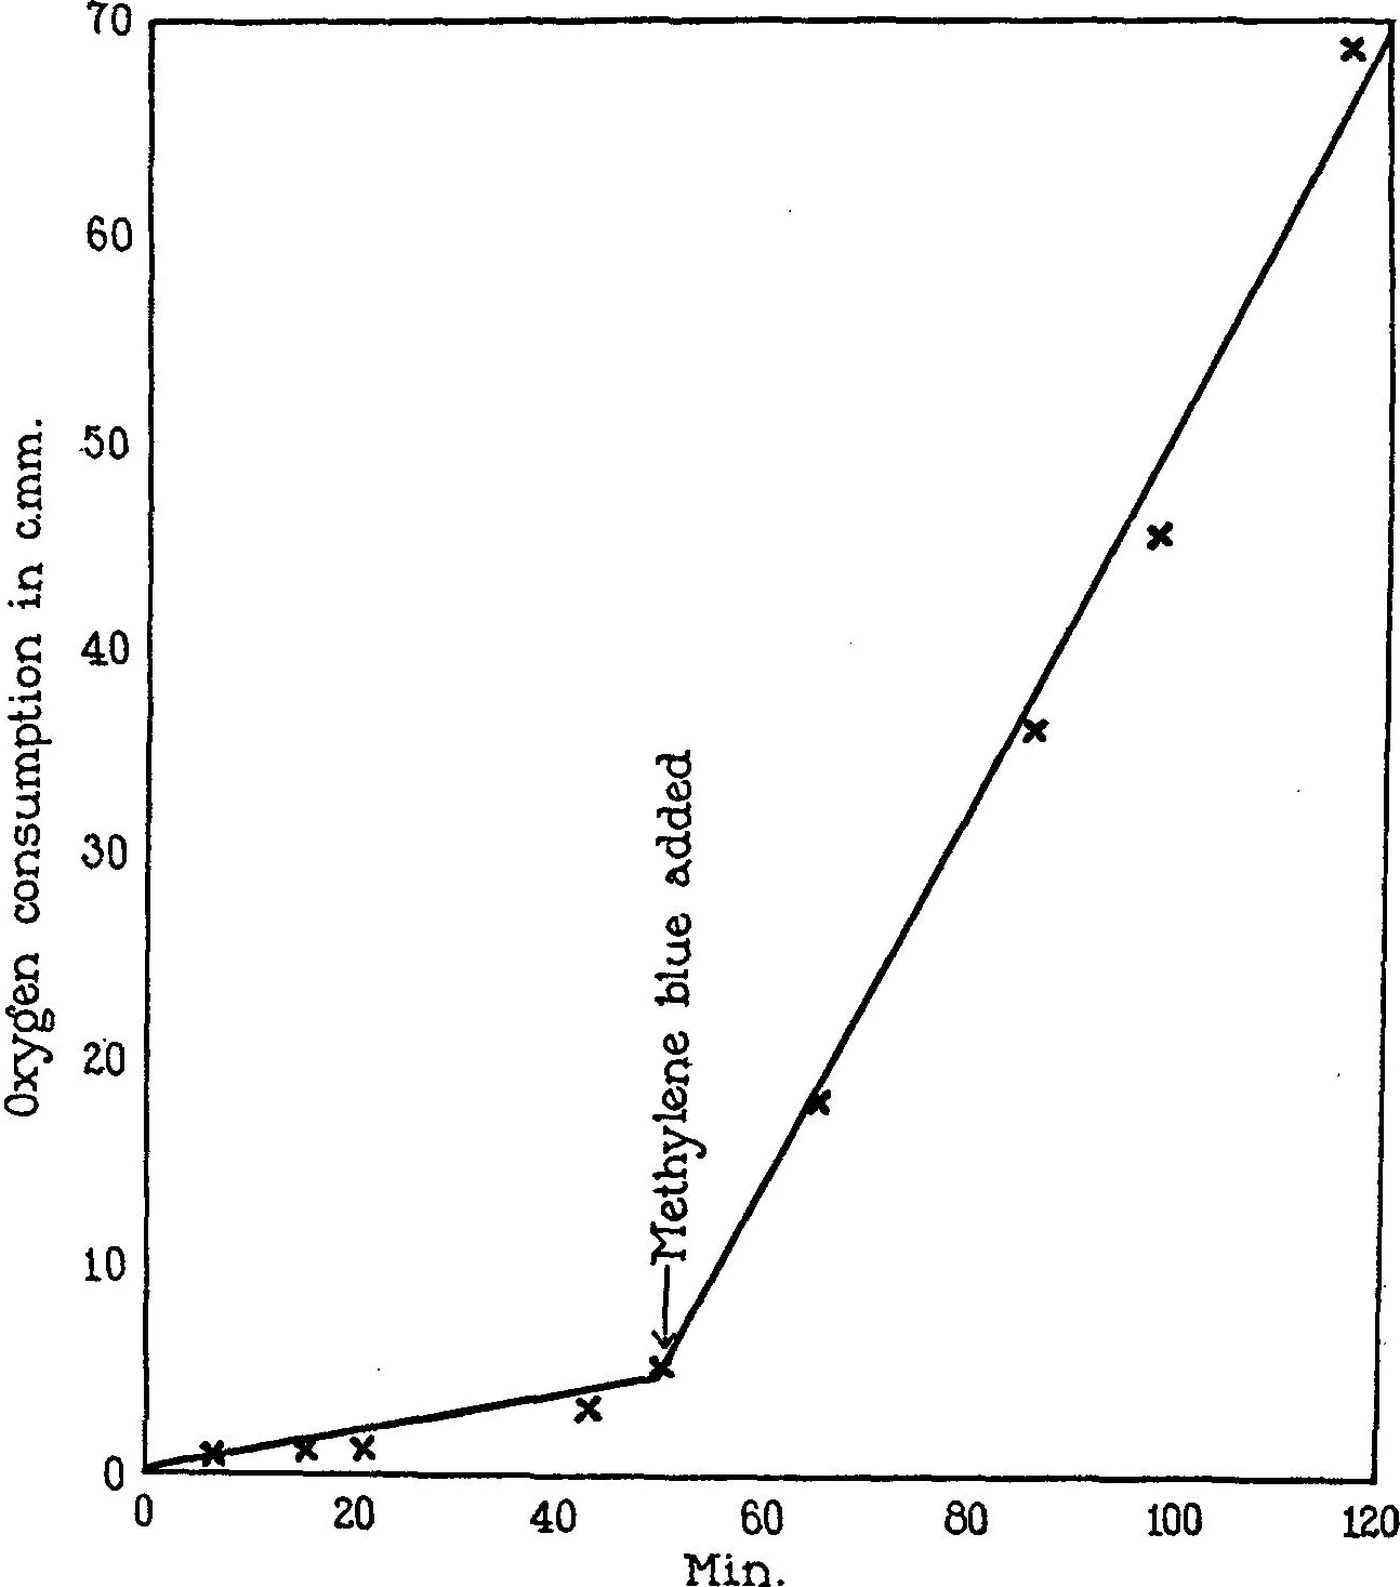
Figură: o înregistrare continuă a microrespirației eritrocitelor umane. Săgeata marchează adăugarea albastrului de metilen. Înainte de aceasta, curba este aproape orizontală; după aceea, urcă constant. Reprodusă din Harrop și Barron, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Concluzia lor a fost că acest colorant acționa ca un transportor de oxigen, „furnizând o substanță care a dispărut din eritrocitele anucleate ale mamiferelor adulte”. Doi ani mai târziu, Michaelis și Salomon de la Institutul Rockefeller au formulat dezacordul în forma care avea să persiste. Fie efectul colorantului era „o proprietate accidentală a colorantului”, fie colorantul era „un model pentru o substanță necunoscută din organisme”. Această alternativă nu a fost tranșată. Ceea ce s-a schimbat este că acum celulele pot fi descrise mult mai precis.
Un extract hepatic a avut același efect
Michaelis și Salomon au arătat că extractele de organe obținute cu apă rece produc aceeași stimulare. Ficatul de șobolan a avut efectul cel mai puternic, urmat de rinichi, splină și testicul. Creierul, mușchiul și serul sanguin au avut un efect redus sau nul.
Apoi au testat extractul în prezența monoxidului de carbon. Respirația indusă fie de extract, fie de colorant a rămas neschimbată într-un amestec de 98 la sută monoxid de carbon și 2 la sută oxigen. Același amestec de gaze inhiba respirația drojdiei și pe cea a eritrocitelor nucleate de pasăre cu aproximativ 60 până la 80 la sută, în concordanță cu descrierea lui Warburg a unui ferment respirator sensibil la monoxidul de carbon. Substanța tisulară neidentificată nu era, așadar, enzima lui Warburg.
Mai multe ipoteze privind identitatea substanței au fost eliminate pe parcurs. Glutationul redus și cisteina produceau doar consumul de oxigen necesar propriei lor oxidări. Coenzima lui Harden și Young a fost exclusă, deoarece mușchiul conține cea mai mare cantitate din aceasta, dar a prezentat aproape cel mai mic efect. Citocromul lui Keilin, denumit cu câțiva ani înainte, se lovea de aceeași contradicție. Propria lor sugestie, că substanța activă provenea din nucleul celular, au numit-o doar o sugestie.
Efectul depindea de anumite condiții
Celulele trebuiau să fie intacte. Hemoliza produsă de apa distilată sau de congelări repetate elimina răspunsul atât la colorant, cât și la extract, iar hemoliza parțială îl reducea proporțional.
Era necesar și zahărul. Glucoza, fructoza și zaharoza susțineau respirația indusă de colorant; manitolul nu. În absența zahărului nu exista deloc respirație, iar colorantul părea să deterioreze celulele în cursul procesului, astfel încât glucoza adăugată una sau două ore mai târziu nu restabilea respirația. Autorii au sugerat că acest colorant oxida o componentă structurală de care celula avea nevoie.
Expunerea la lumină amplifica considerabil efectul colorantului, deși acesta era evident și în întuneric. Alți coloranți reductibili se comportau diferit: albastrul de toluilen egala sau depășea albastrul de metilen, în timp ce disulfonatul de indigo nu avea aproape niciun efect. Nu s-a conturat o relație clară între potențialul de oxidoreducere al unui colorant și amploarea efectului său, fapt pe care autorii l-au atribuit permeabilității membranare și toxicității.
Efectul urma fermentația, nu respirația
Studiul lui Barron din 1930 a trecut de la suspensii celulare la secțiuni de țesut din organe normale de șobolan și din tumori transplantate.
În țesuturile fără glicoliză aerobă, albastrul de metilen nu avea niciun efect sau reducea ușor consumul de oxigen: în rinichi cu aproximativ 14 la sută, în pancreas cu aproximativ 14 la sută, în ficat cu aproximativ 5 la sută. În țesuturile care fermentează în prezența oxigenului, creștea consumul: în splină cu aproximativ 8 la sută, în creier cu aproximativ 13 la sută. Creșterile în tumori variau de la aproximativ 27 la sută într-un carcinom mamar uman până la peste 80 la sută într-un sarcom Rous la găină, aproximativ proporțional cu glicoliza aerobă a fiecărui țesut.
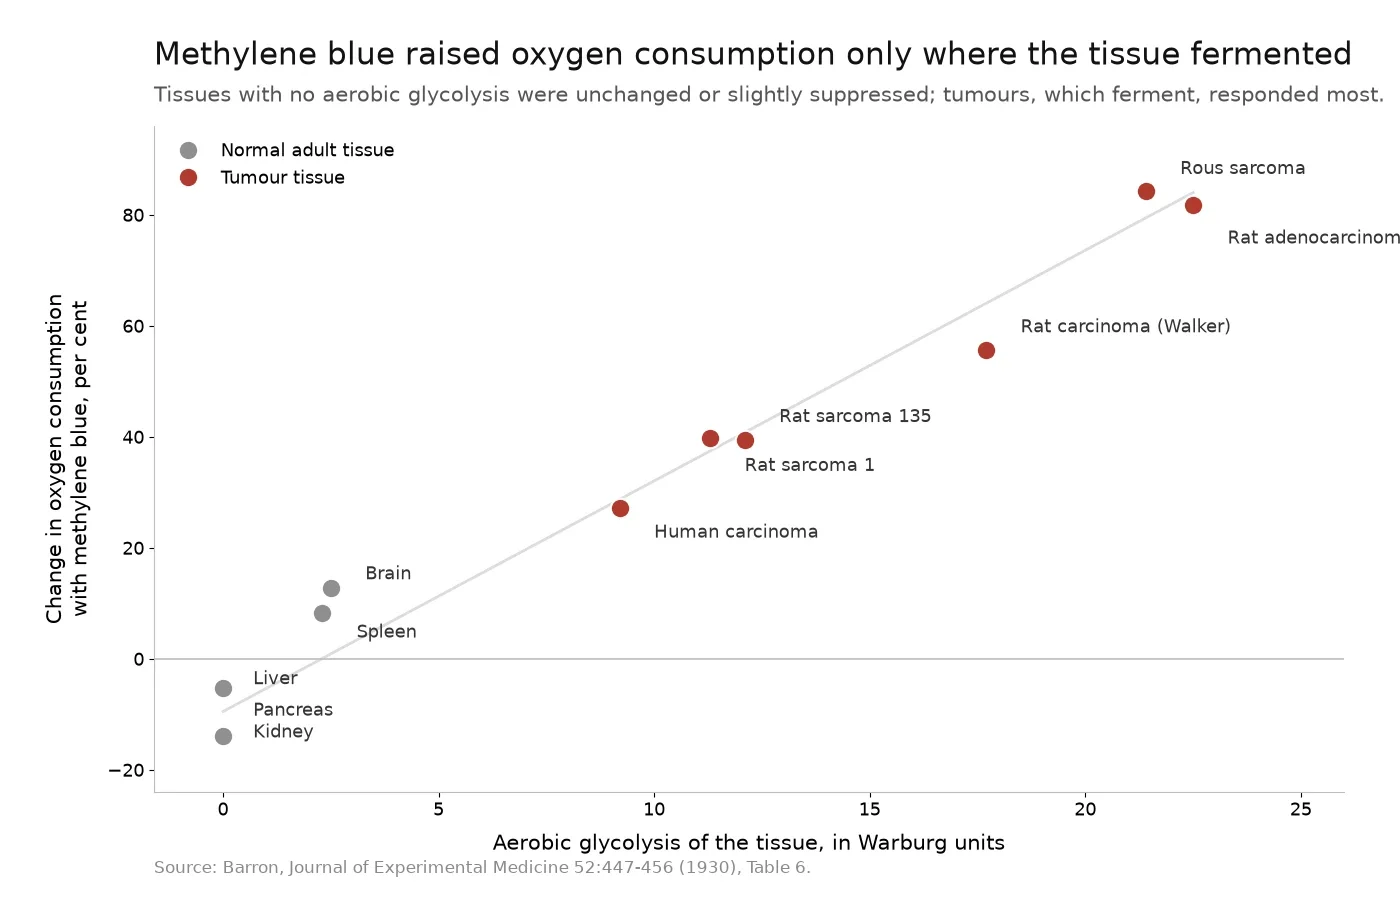
Figură: fiecare punct reprezintă un tip de țesut. Axa orizontală reprezintă glicoliza aerobă; axa verticală reprezintă modificarea consumului de oxigen după adăugarea albastrului de metilen. Date din Barron, Journal of Experimental Medicine 52:447–456 (1930), Tabelul 6, PMID 19869777.
Experimentul cu cianură a produs apoi imaginea în oglindă. Când respirația din acele țesuturi anterior nereactive a fost blocată cu cianură și fermentația a devenit evidentă, colorantul a crescut din nou consumul de oxigen: în rinichi cu aproximativ 59 la sută, în ficat cu aproximativ 19 la sută, în splină cu aproximativ 286 la sută, în testicul cu aproximativ 200 la sută.
Barron a propus ca acest colorant să fie folosit drept test pentru capacitatea fermentativă a unei celule sau a unui țesut și a încheiat cu o speculație: cultivarea tumorilor timp de mai multe generații într-un mediu care conține colorant ar putea, într-o bună zi, să facă metabolismul unei tumori permanent asemănător cu cel al țesutului normal. Aceasta era o întrebare de cercetare formulată în 1930. Nu este o afirmație despre un tratament.
Ce nu ar fi putut măsura experimentele
În 1928 și 1930, „respirație” însemna consum de oxigen. Adenozin trifosfatul a fost descris pentru prima dată în 1929, iar demonstrația că mitocondriile izolate esterifică fosfatul în timp ce transferă electroni a venit în 1949. Niciunul dintre primele articole despre albastrul de metilen nu ar fi putut măsura producția de energie și niciunul nu a pretins că o făcea.
Celulele reprezintă a doua problemă. Eritrocitele mature ale mamiferelor nu conțin mitocondrii. În stadiul de reticulocit, ele elimină mitocondriile și ribozomii prin autofagie selectivă, motiv pentru care o eritrocită matură funcționează pe baza glicolizei și depinde de calea pentozofosfaților în principal pentru NADPH, nu pentru ATP. În experimentele din 1928 nu exista niciun lanț de transport al electronilor care să poată fi reparat. Procesul care consuma oxigenul avea o altă funcție.
Natura acelui proces este acum descrisă destul de bine. Albastrul de metilen acceptă electroni de la echivalenții reducători celulari și devine leuco-albastru de metilen, care este reoxidat de oxigenul molecular, închizând ciclul. În eritrocitele umane, flavin-reductaza dependentă de NADPH și reductazele disulfidice înrudite realizează etapa de reducere. Un studiu din 1976, care a folosit glucoză marcată, a constatat că acest colorant stimulează șuntul hexozomonofosfat, că efectul la concentrații mici depindea de oxihemoglobină și că o concentrație mai mare, de 0.1 mM, genera peroxid de hidrogen. Un colorant redus care întâlnește oxigen produce peroxid, nu legături fosfat.
În mitocondrii, tabloul este mai controversat decât admit rezumatele de popularizare. O direcție de cercetare susține că acest colorant preia electroni din zona complexului I și îi transferă citocromului c. O alta a constatat că, în mitocondriile din creierul de șoarece, nu poate restabili respirația după o blocare cu antimicină și a localizat, în schimb, acceptorul de electroni la situsul de legare a ubichinolului din complexul III. O a treia a constatat că concentrațiile mici creșteau consumul de oxigen în repaus, fără să modifice respirația stimulată de ADP. Formularea cea mai directă a ideii este că consumul de oxigen indus de albastrul de metilen nu depinde deloc de fosforilarea oxidativă: persista când lanțul respirator era inhibat și în preparate fără un astfel de lanț.
Există și măsurători directe ale diferenței dintre cele două mărimi. În mitocondriile izolate din ficat de șobolan, creșterea concentrației colorantului reducea rapoartele de control respirator și provoca umflarea mitocondriilor, ceea ce autorii au descris drept decuplarea fosforilării oxidative. În ficatul de șobolan perfuzat, albastrul de metilen creștea consumul de oxigen, în timp ce raportul ATP/ADP scădea.
Datele clinice transmit același mesaj. Methemoglobinemia este tratată cu aproximativ unul până la două miligrame de albastru de metilen pe kilogram, administrate intravenos, printr-o cale de reducere dependentă de NADPH, iar dozele mai mari provoacă afecțiunea tratată. Aceeași sinteză menționează că efectul antidotic este maxim în eritrocitele intacte și diminuat în prezența hemolizei, ceea ce înseamnă că observația din 1930 privind hemoliza reapare șaptezeci și trei de ani mai târziu într-un context spitalicesc. Un compus ale cărui efecte utile și nocive se află de o parte și de alta a unui prag de doză nu este un compus a cărui doză ar trebui dedusă dintr-o măsurătoare a consumului de oxigen.
De ce lotul își are locul în discuție
Harrop și Barron au observat ceva care merită recitit. Albastrul de metilen însuși produce în spectroscop o bandă între cele două benzi caracteristice ale methemoglobinei, „ceea ce poate provoca cu ușurință confuzie la o examinare superficială”. Colorantul poate imita substanța căutată.
Aceeași problemă are și o formă chimică. O fenotiazină înrudită, prezentă ca un constituent minor, are propriul comportament redox, propria permeabilitate și propria toxicitate. Un caz documentat ilustrează concret miza: într-un studiu al iodurării albastrului de metilen, probele care conțineau aproximativ 7 până la 8 la sută Azure B au produs în principal Azure B iodurat, astfel încât impuritatea, nu albastrul de metilen, a dominat reacția.
Oricine folosește albastrul de metilen ca reactiv, într-un laborator, la o masă de lucru pentru colorare sau într-un acvariu, lucrează cu un ingredient necaracterizat dacă lotul nu a fost caracterizat. Substanțele înrudite, identitatea, impuritățile elementale, solvenții reziduali și reziduul la calcinare fac parte din experiment, nu din documentația auxiliară. Blupreme își procură albastrul de metilen de la un producător farmaceutic și publică un certificat de analiză complet, verificând întreaga specificație USP, nu doar metalele grele; ghidul de citire a unui certificat de analiză și ce confirmă și ce nu confirmă desemnarea de grad USP explică modul în care documentul poate fi verificat în raport cu afirmația.
Valoarea era corectă
Experimentele din 1928 și 1930 au fost realizate riguros, iar observația lor centrală a rezistat: un colorant reductibil poate face o celulă care abia respiră să consume oxigen la o rată de multe ori mai mare decât cea din repaus, fără să treacă prin etapa blocată de cianură.
Greșeala apare mai târziu, când „respirație” este interpretată în sensul său modern. O măsurătoare a schimbului de gaze vă spune că electronii au ajuns la oxigen. Nu vă spune că vreunul dintre ei a fost folosit pentru a produce ATP, iar într-o celulă fără mitocondrii distanța dintre aceste două afirmații este cât se poate de mare. Harta mai amplă a acțiunilor albastrului de metilen în celule plasează aceeași distincție într-un cadru mai larg, iar istoria compusului, de la colorant la medicament explică cum a ajuns un colorant textil să fie folosit în aceste experimente.