
Article
Les expériences qui ont établi un lien entre le bleu de méthylène et la respiration cellulaire
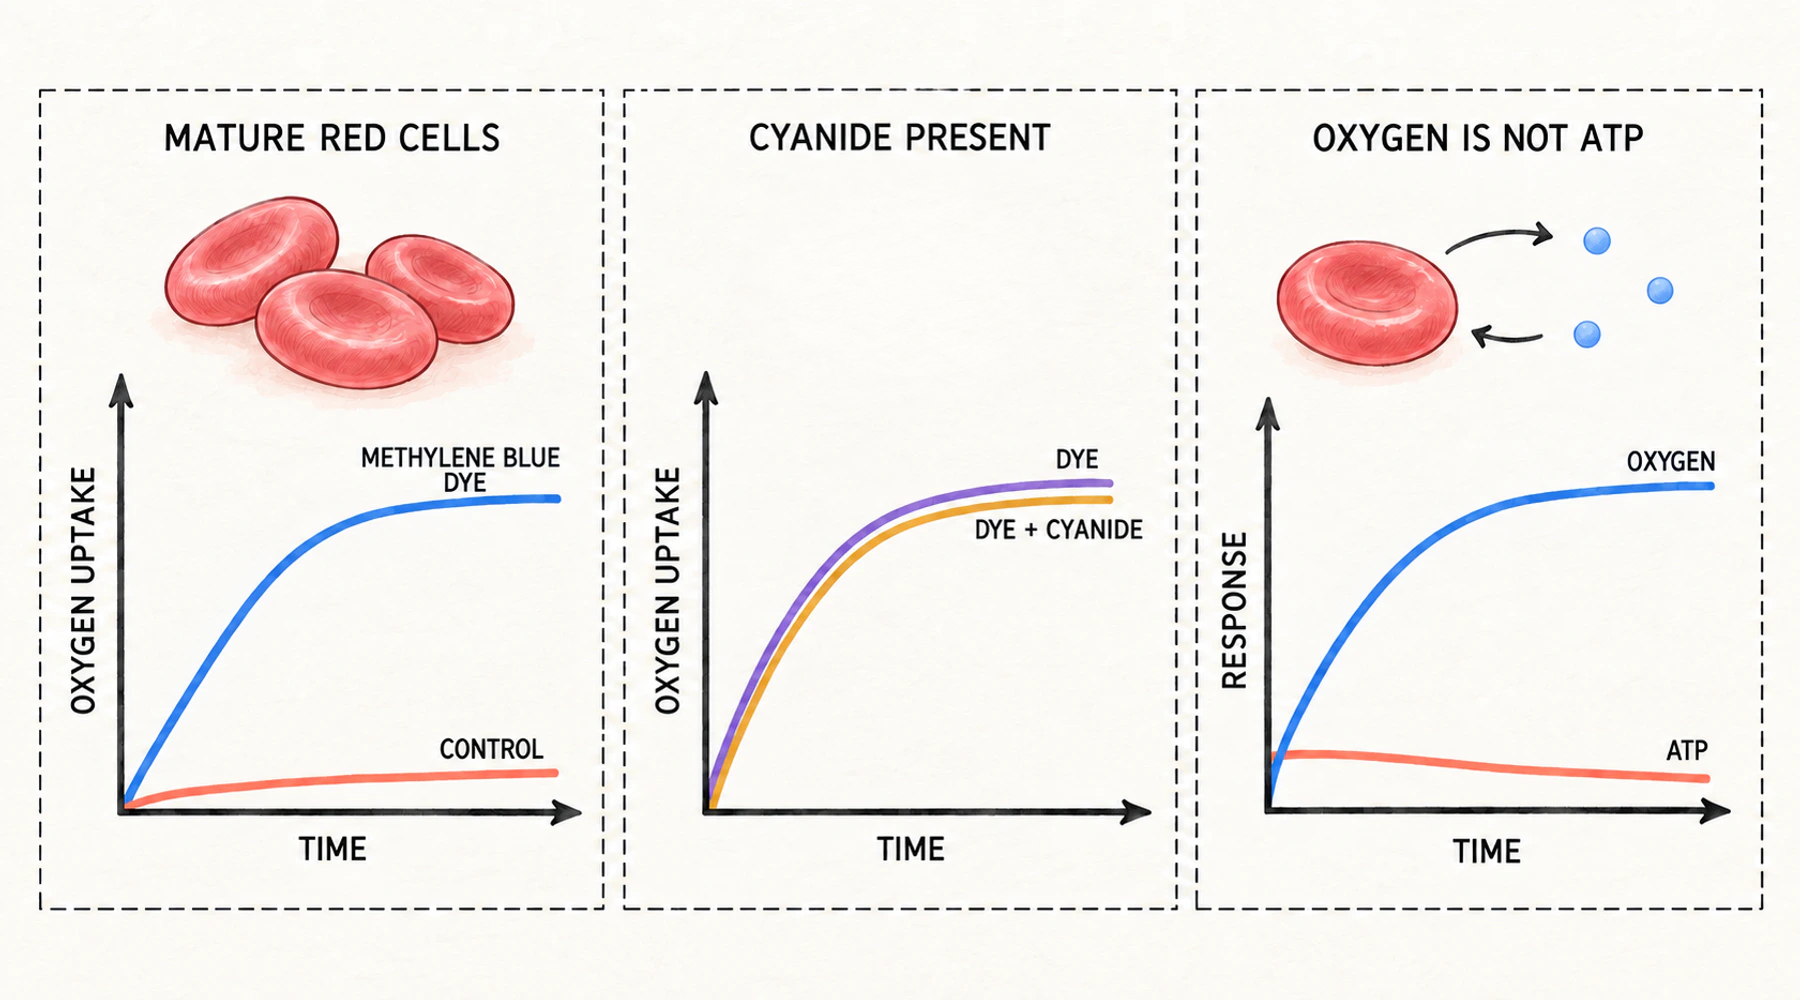
Du sang humain défibriné, maintenu à 37 °C pendant trois heures, consomme environ deux pour cent de l’oxygène qu’il contient. Ajoutez une petite quantité de bleu de méthylène avant l’incubation, et ce même sang en consomme environ soixante-cinq pour cent. Rien n’a changé dans les cellules. Seule la solution a changé.
Ce chiffre provient d’un article publié en 1928 par George Harrop et E. S. Guzman Barron à Johns Hopkins, et il est à l’origine de l’affirmation souvent répétée selon laquelle le bleu de méthylène améliore la respiration cellulaire. Cette affirmation n’est pas fausse, mais sa portée est plus étroite qu’il n’y paraît.
Ce que mesure réellement le chiffre du tableau
Le critère mesuré était la captation d’oxygène, déterminée par analyse des gaz. Harrop et Barron filtraient du sang fraîchement prélevé à travers du coton à 10 °C afin d’en retirer les globules blancs, saturaient l’échantillon en oxygène, le divisaient, ajoutaient le colorant à une portion, puis analysaient les deux après incubation. Les numérations leucocytaires dépassaient rarement environ un millier par millimètre cube. La consommation d’oxygène était exprimée comme la proportion de la teneur initiale en oxygène de l’échantillon qui avait disparu.
Ils ont également mesuré le dioxyde de carbone, et c’est là que la méthode a montré ses limites. Le sang défibriné libérait jusqu’à deux millimoles de dioxyde de carbone par 100 mL pendant la première heure d’incubation pour des raisons sans rapport avec la réaction étudiée, ce qui rendait inutilisables les quotients respiratoires obtenus sur sang total. Seules les cellules lavées dans la solution de Locke donnaient des valeurs interprétables, regroupées entre 0.73 et 0.80 avec et sans le colorant.
Ce détail n’est pas anecdotique. Dans ces articles, la « respiration » désigne les échanges gazeux dans un récipient fermé. L’écart entre consommation d’oxygène et production d’énergie utile est examiné séparément dans ce que la consommation d’oxygène indique ou n’indique pas sur l’ATP.
Le colorant avait l’effet le plus marqué là où les cellules respiraient le moins
Les érythrocytes matures des mammifères présentent une consommation d’oxygène presque impossible à mesurer. Les érythrocytes nucléés des oiseaux, eux, en présentent une. Harrop et Barron ont étudié les deux, et ce contraste constitue l’ossature de leur argumentation.
Dans les échantillons de mammifères, le colorant a produit des augmentations de vingt à cinquante fois. Dans le sang d’oie, dont les cellules respiraient déjà, il n’a jamais fait plus que doubler le taux. Plus la respiration initiale était élevée, moins le colorant pouvait l’augmenter.
Le même gradient apparaît au sein d’une même espèce. Un échantillon humain provenant d’un patient atteint de polycythémie vraie, contenant des cellules immatures, consommait 11.3 pour cent de son oxygène en l’absence de colorant, contre 2.8 pour cent pour des cellules lavées provenant d’un donneur sain. Le colorant ne l’a porté qu’à 63.4 pour cent, soit une accélération de six fois là où les cellules normales accéléraient de près de trente fois. Le colorant poussait les cellules matures vers le comportement des cellules immatures, ce qui correspond à l’interprétation donnée par les auteurs.
Le cyanure aurait dû l’arrêter
On savait que le cyanure arrêtait l’oxydation cellulaire. Harrop et Barron l’ont néanmoins ajouté en même temps que le colorant.
Les résultats obtenus avec le sang de bœuf sont représentatifs. La teneur en oxygène est passée de 22.61 à 22.03 volumes pour cent sur trois heures sans aucun ajout. Avec du bleu de méthylène, elle est tombée à 12.84. Avec du bleu de méthylène et du cyanure de potassium à une concentration molaire d’un cinq-millième, elle est tombée à 12.74. L’effet du colorant était pratiquement inchangé.
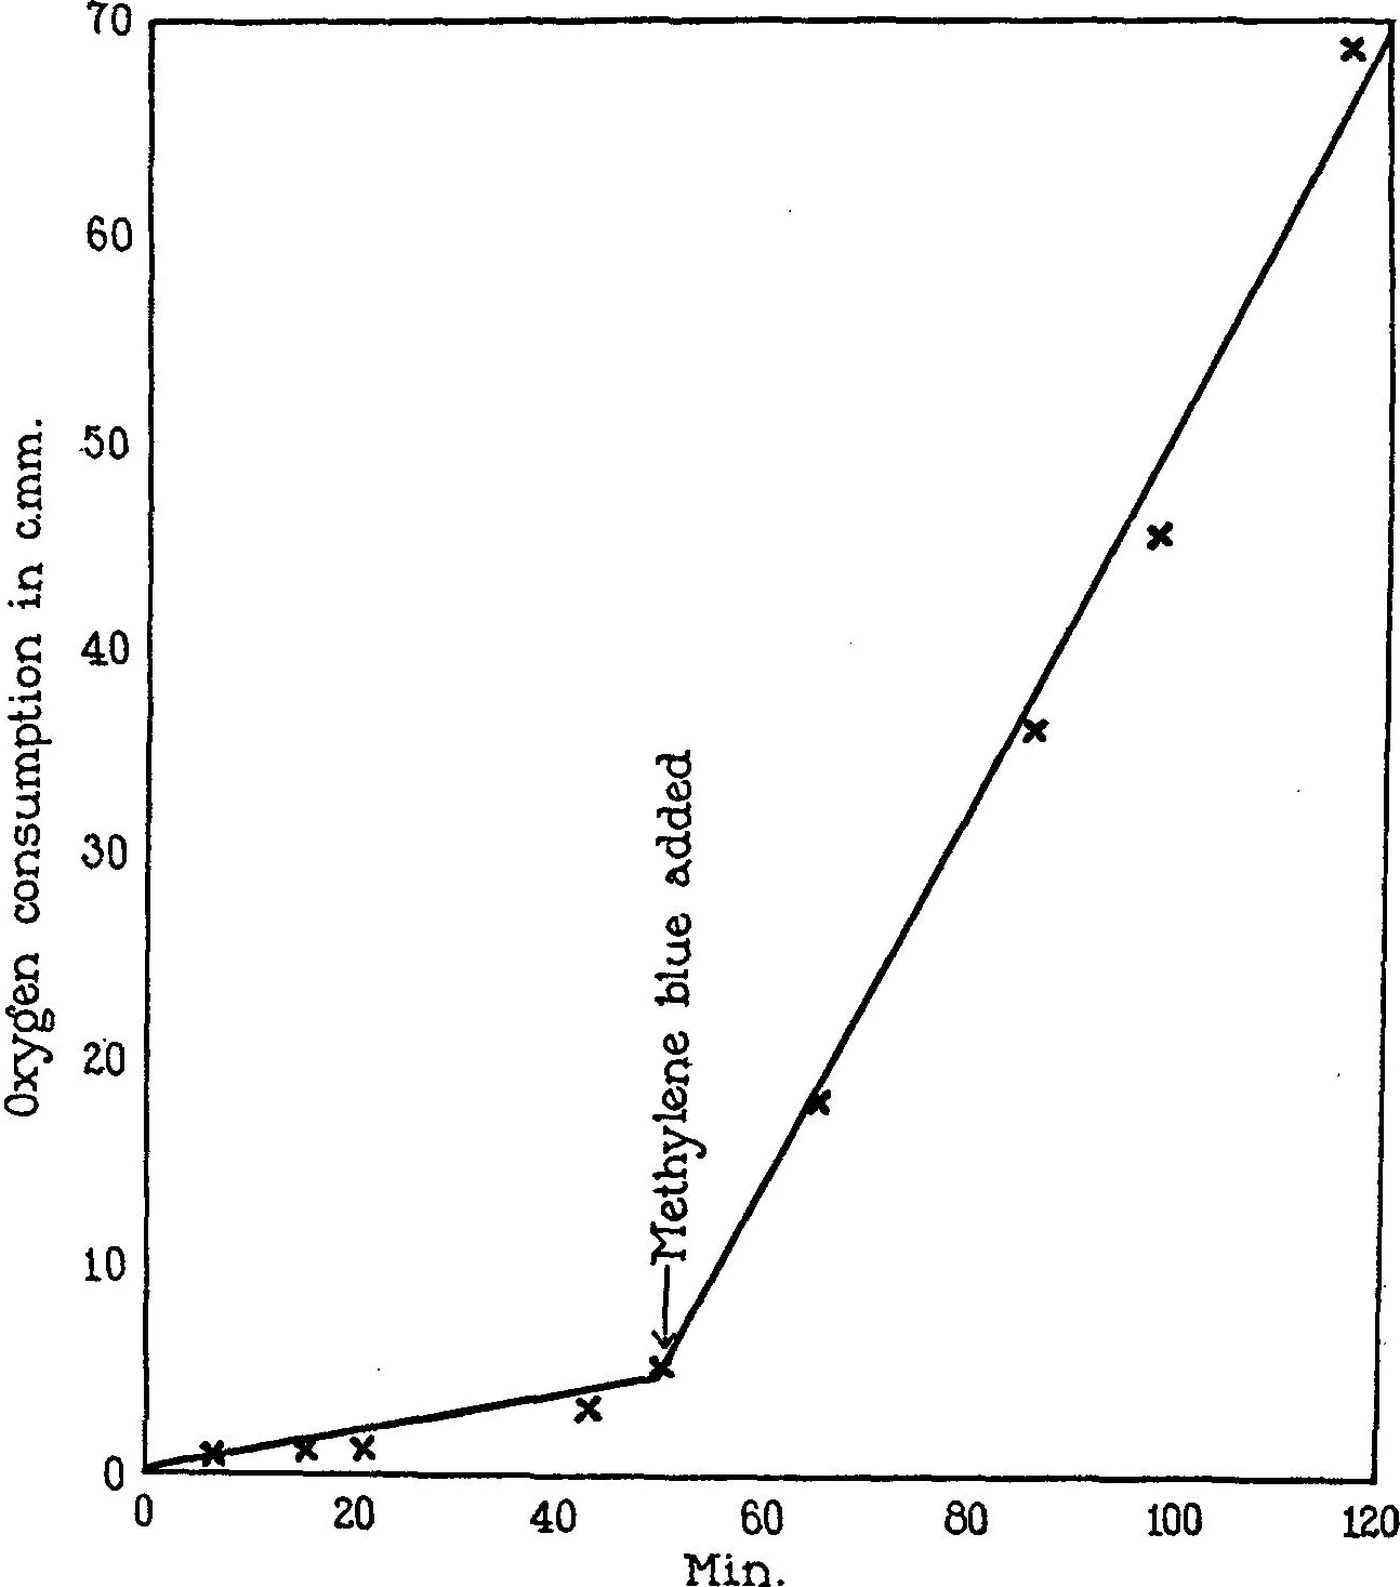
Figure : enregistrement continu de la microrespiration d’érythrocytes humains. La flèche indique l’ajout de bleu de méthylène. Avant celui-ci, la courbe est presque plate ; ensuite, elle monte régulièrement. Reproduit d’après Harrop et Barron, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Ils ont conclu que le colorant agissait comme un transporteur d’oxygène, « fournissant une substance qui a disparu des érythrocytes adultes non nucléés des mammifères ». Deux ans plus tard, Michaelis et Salomon, au Rockefeller Institute, ont formulé le désaccord sous la forme qui allait perdurer. Soit l’effet du colorant était « une propriété accidentelle du colorant », soit le colorant constituait « un modèle d’une substance inconnue dans les organismes ». Cette alternative n’a pas été tranchée. Ce qui a changé, c’est que les cellules peuvent aujourd’hui être décrites de manière beaucoup plus précise.
Un extrait de foie produisait le même effet
Michaelis et Salomon ont montré que des extraits aqueux froids d’organes produisent la même stimulation. Le foie de rat avait l’effet le plus marqué, suivi du rein, de la rate et du testicule. Le cerveau, le muscle et le sérum sanguin avaient peu ou pas d’effet.
Ils ont ensuite testé l’extrait en présence de monoxyde de carbone. La respiration induite soit par l’extrait, soit par le colorant restait inchangée dans un mélange composé de 98 pour cent de monoxyde de carbone et de 2 pour cent d’oxygène. Le même mélange gazeux inhibait la respiration de la levure et celle des érythrocytes nucléés de volaille d’environ 60 à 80 pour cent, conformément à la description par Warburg d’un ferment respiratoire sensible au monoxyde de carbone. La substance tissulaire non identifiée n’était donc pas l’enzyme de Warburg.
Plusieurs identités candidates ont été écartées au passage. Le glutathion réduit et la cystéine ne produisaient que la consommation d’oxygène nécessaire à leur propre oxydation. Le coenzyme de Harden et Young a été exclu parce que le muscle est le tissu qui en contient le plus tout en présentant presque l’effet le plus faible. Le cytochrome de Keilin, nommé quelques années plus tôt, se heurtait à la même contradiction. Quant à leur propre proposition selon laquelle la substance active provenait du noyau cellulaire, ils la qualifiaient eux-mêmes de simple suggestion.
L’effet dépendait de certaines conditions
Les cellules devaient être intactes. L’hémolyse provoquée par de l’eau distillée ou par des congélations répétées abolissait la réponse tant au colorant qu’à l’extrait, et une hémolyse partielle la réduisait proportionnellement.
Du sucre était également nécessaire. Le glucose, le fructose et le saccharose permettaient la respiration induite par le colorant ; le mannitol, non. En l’absence de sucre, aucune respiration ne se produisait, et le colorant semblait endommager les cellules au cours du processus, si bien que l’ajout de glucose une ou deux heures plus tard ne la rétablissait pas. Les auteurs ont suggéré que le colorant oxydait un composant structurel dont la cellule avait besoin.
L’éclairage augmentait considérablement l’effet du colorant, même si celui-ci restait net dans l’obscurité. D’autres colorants réductibles se comportaient différemment : le bleu de toluylène égalait ou dépassait le bleu de méthylène, tandis que le disulfonate d’indigo ne produisait presque aucun effet. Aucune relation nette n’est apparue entre le potentiel d’oxydoréduction d’un colorant et l’ampleur de son effet, ce que les auteurs attribuaient à la perméabilité membranaire et à la toxicité.
L’effet suivait la fermentation, et non la respiration
L’étude de Barron de 1930 est passée des suspensions cellulaires aux coupes de tissus provenant d’organes normaux de rats et de tumeurs transplantées.
Dans les tissus dépourvus de glycolyse aérobie, le bleu de méthylène ne faisait rien ou réduisait légèrement la consommation d’oxygène : rein d’environ 14 pour cent, pancréas d’environ 14 pour cent, foie d’environ 5 pour cent. Dans les tissus qui fermentent en présence d’oxygène, il augmentait la consommation : rate d’environ 8 pour cent, cerveau d’environ 13 pour cent. Dans les tumeurs, les augmentations allaient d’environ 27 pour cent dans un carcinome mammaire humain à plus de 80 pour cent dans un sarcome de Rous chez le poulet, approximativement en proportion de la glycolyse aérobie de chaque tissu.
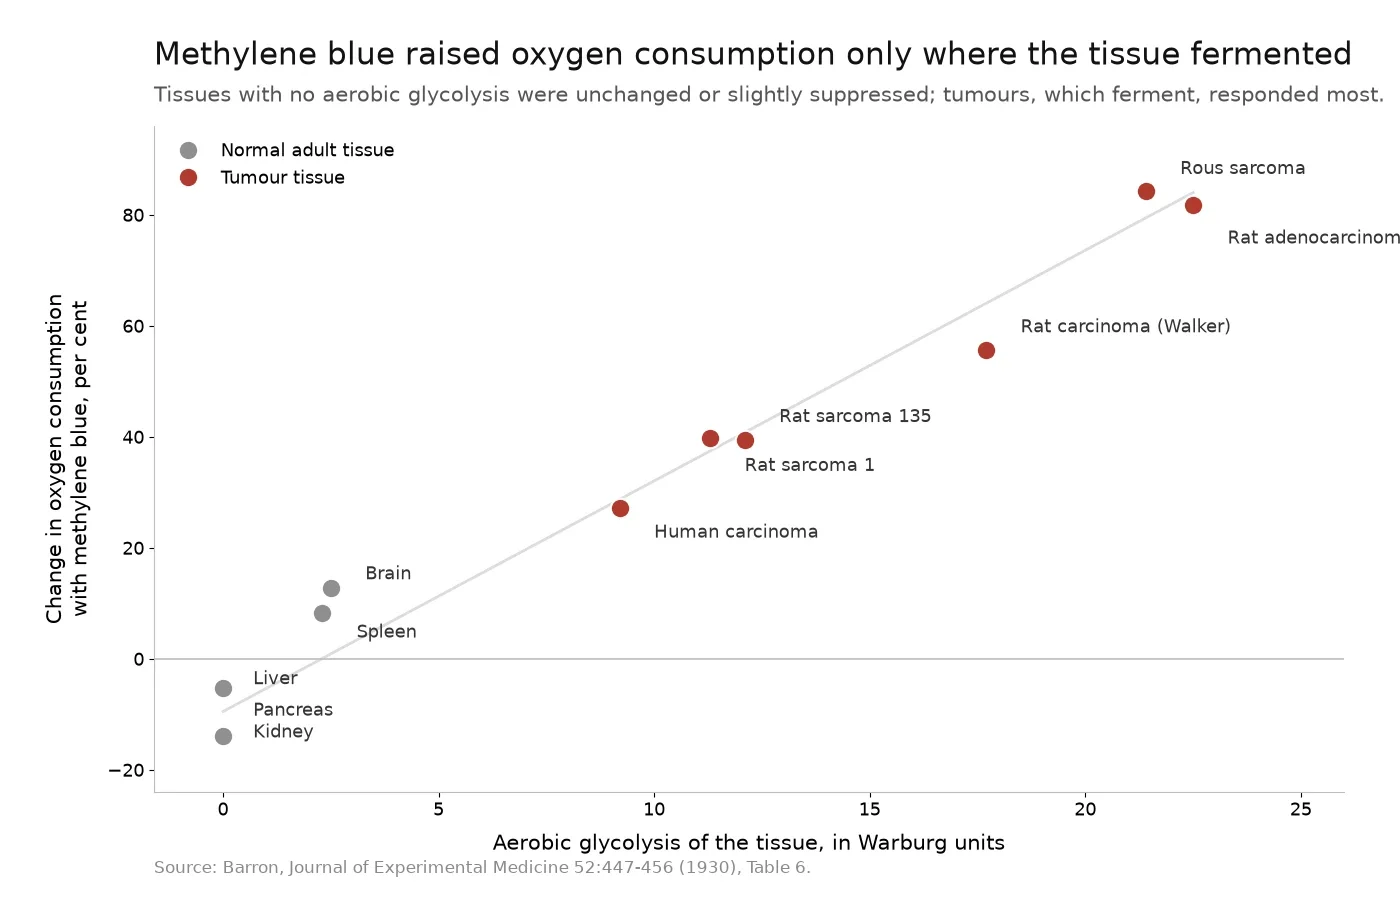
Figure : chaque point correspond à un type de tissu. L’axe horizontal représente la glycolyse aérobie ; l’axe vertical, la variation de la consommation d’oxygène après ajout de bleu de méthylène. Données de Barron, Journal of Experimental Medicine 52:447–456 (1930), Tableau 6, PMID 19869777.
L’expérience au cyanure a ensuite produit l’image inverse. Lorsque la respiration de ces tissus auparavant non réactifs était bloquée par le cyanure et que la fermentation devenait apparente, le colorant augmentait de nouveau la consommation d’oxygène : rein d’environ 59 pour cent, foie d’environ 19 pour cent, rate d’environ 286 pour cent, testicule d’environ 200 pour cent.
Barron a proposé que le colorant puisse servir de test du pouvoir fermentatif d’une cellule ou d’un tissu, et a conclu par une spéculation : des générations de cultures tumorales dans un milieu contenant le colorant pourraient un jour rendre le métabolisme d’une tumeur durablement semblable à celui d’un tissu normal. C’était une question de recherche formulée en 1930. Ce n’est pas une affirmation thérapeutique.
Ce que les expériences ne pouvaient pas avoir mesuré
En 1928 et 1930, la « respiration » désignait la consommation d’oxygène. L’adénosine triphosphate a été signalée pour la première fois en 1929, et la démonstration que des mitochondries isolées estérifient le phosphate tout en transférant des électrons date de 1949. Aucun des premiers articles sur le bleu de méthylène ne pouvait avoir mesuré la production d’énergie, et aucun ne prétendait le faire.
Les cellules constituent le deuxième problème. Les érythrocytes matures des mammifères ne contiennent pas de mitochondries. Au stade de réticulocyte, ils éliminent mitochondries et ribosomes par autophagie sélective, raison pour laquelle un globule rouge mature fonctionne grâce à la glycolyse et dépend principalement de sa voie des pentoses phosphates pour le NADPH plutôt que pour l’ATP. Dans les expériences de 1928, aucune chaîne de transport d’électrons n’était présente à réparer. Ce qui consommait l’oxygène faisait autre chose.
La nature de cette autre activité est aujourd’hui assez bien décrite. Le bleu de méthylène accepte des électrons provenant des équivalents réducteurs cellulaires et devient du leucométhylène bleu, qui est réoxydé par l’oxygène moléculaire, bouclant ainsi le cycle. Dans les globules rouges humains, la flavine réductase dépendante du NADPH et des réductases de disulfures apparentées assurent l’étape de réduction. Une étude de 1976 utilisant du glucose marqué a montré que le colorant stimule la voie des hexoses monophosphates, que l’effet à faible concentration dépendait de l’oxyhémoglobine et qu’une concentration plus élevée, 0.1 mM, générait du peroxyde d’hydrogène. Un colorant réduit qui rencontre de l’oxygène produit du peroxyde, pas des liaisons phosphate.
Dans les mitochondries, la situation est plus controversée que ne le laissent entendre les résumés courants. Une série de travaux soutient que le colorant prélève des électrons dans la région du complexe I et les transmet au cytochrome c. Une autre étude a constaté que, dans les mitochondries de cerveau de souris, il ne peut pas rétablir la respiration après un blocage par l’antimycine, et a plutôt situé l’accepteur d’électrons au niveau du site de liaison de l’ubiquinol du complexe III. Une troisième a observé que de faibles concentrations augmentaient la consommation d’oxygène au repos tout en laissant inchangée la respiration stimulée par l’ADP. La formulation la plus directe est que la consommation d’oxygène induite par le bleu de méthylène ne dépend pas du tout de la phosphorylation oxydative : elle persistait lorsque la chaîne respiratoire était inhibée, ainsi que dans des préparations qui en étaient dépourvues.
Il existe également des mesures directes de l’écart entre les deux grandeurs. Dans des mitochondries isolées de foie de rat, l’augmentation des concentrations de colorant abaissait les rapports de contrôle respiratoire et provoquait un gonflement, phénomène que les auteurs ont décrit comme un découplage de la phosphorylation oxydative. Dans le foie de rat perfusé, le bleu de méthylène augmentait la consommation d’oxygène tandis que le rapport ATP/ADP diminuait.
Les données cliniques transmettent le même message. La méthémoglobinémie est traitée avec environ un à deux milligrammes de bleu de méthylène par kilogramme par voie intraveineuse, par l’intermédiaire d’une voie de réduction dépendante du NADPH, et des doses plus élevées provoquent l’affection même qui est traitée. La même revue indique que l’effet antidotique est maximal dans les érythrocytes intacts et réduit en présence d’hémolyse, ce qui correspond au résultat de 1930 sur l’hémolyse réapparaissant soixante-treize ans plus tard dans un contexte hospitalier. Pour un composé dont les effets utiles et nocifs se trouvent de part et d’autre d’un seuil de dose, la dose ne doit pas être déduite d’une mesure de consommation d’oxygène.
Pourquoi le lot fait partie de la discussion
Harrop et Barron ont relevé un point qui mérite une seconde lecture. Le bleu de méthylène produit lui-même dans le spectroscope une bande située entre les deux bandes caractéristiques de la méthémoglobine, « ce qui peut facilement prêter à confusion lors d’un examen superficiel ». Le colorant peut imiter la substance recherchée.
Le même problème existe sous une forme chimique. Une phénothiazine apparentée présente comme constituant minoritaire possède son propre comportement d’oxydoréduction, sa propre perméabilité et sa propre toxicité. Un cas documenté illustre concrètement l’enjeu : dans une étude sur l’iodation du bleu de méthylène, des échantillons contenant environ 7 à 8 pour cent d’Azure B ont principalement produit de l’Azure B iodé, de sorte que c’est l’impureté, et non le bleu de méthylène, qui dominait la réaction.
Toute personne utilisant le bleu de méthylène comme réactif, dans un laboratoire, à un poste de coloration ou dans un aquarium, travaille avec un ingrédient non spécifié si le lot n’a pas été caractérisé. Les substances apparentées, l’identité, les impuretés élémentaires, les solvants résiduels et le résidu après calcination font partie de l’expérience, plutôt que de constituer de simples formalités administratives autour de celle-ci. Blupreme se procure son bleu de méthylène auprès d’un fabricant pharmaceutique et publie un certificat d’analyse complet, en testant l’intégralité de la spécification USP plutôt que les seuls métaux lourds ; le guide de lecture d’un certificat d’analyse et ce que la désignation de qualité USP établit ou n’établit pas expliquent comment confronter le document à l’affirmation.
Le chiffre était correct
Les expériences de 1928 et 1930 ont été menées avec soin, et leur observation centrale a résisté au temps : un colorant réductible peut amener une cellule qui respire à peine à consommer de l’oxygène à un rythme plusieurs fois supérieur à son niveau de repos, sans passer par l’étape que le cyanure bloque.
L’erreur apparaît plus tard, lorsque le mot « respiration » est interprété selon son sens moderne. Une mesure des échanges gazeux vous indique que des électrons sont arrivés jusqu’à l’oxygène. Elle ne vous indique pas que l’un quelconque de ces électrons a servi à produire de l’ATP, et dans une cellule dépourvue de mitochondries, la distance entre ces deux affirmations est aussi grande qu’elle puisse l’être. La vue d’ensemble plus large de ce que fait le bleu de méthylène dans les cellules replace la même distinction dans un cadre plus vaste, et l’histoire du composé, du colorant au médicament explique comment un colorant textile en est arrivé à ces expériences. :::