
Artículo
Azul de metileno y mitocondrias: transporte de electrones y la evidencia
Imagina dos preparaciones colocadas una junto a la otra. Ambas contienen mitocondrias cerebrales intoxicadas con rotenona, una sustancia química que bloquea el Complejo I de la cadena respiratoria. En una, el experimentador pipetea una dosis micromolar de azul de metileno. El uso de oxígeno se recupera parcialmente. El voltaje de membrana vuelve parcialmente. Una pequeña cantidad de síntesis de ATP se reinicia. En la cubeta vecina, un sensor de peróxido cuenta la otra mitad de la historia: la producción de peróxido de hidrógeno se ha multiplicado varias veces, en cada dosis probada y con cada sustrato utilizado.
Ambas lecturas son correctas. El azul de metileno es un transportador de electrones que puede mantener el flujo alrededor de una sección dañada de la cadena respiratoria, y el mismo transportador paga un coste en peróxido mientras lo hace. Mantén ambos hechos al mismo tiempo y la literatura sobre la función mitocondrial del azul de metileno se vuelve comprensible. Mantén solo uno y parecerá un milagro o una amenaza, dependiendo del artículo que hayas leído primero.
El transportador, explicado claramente
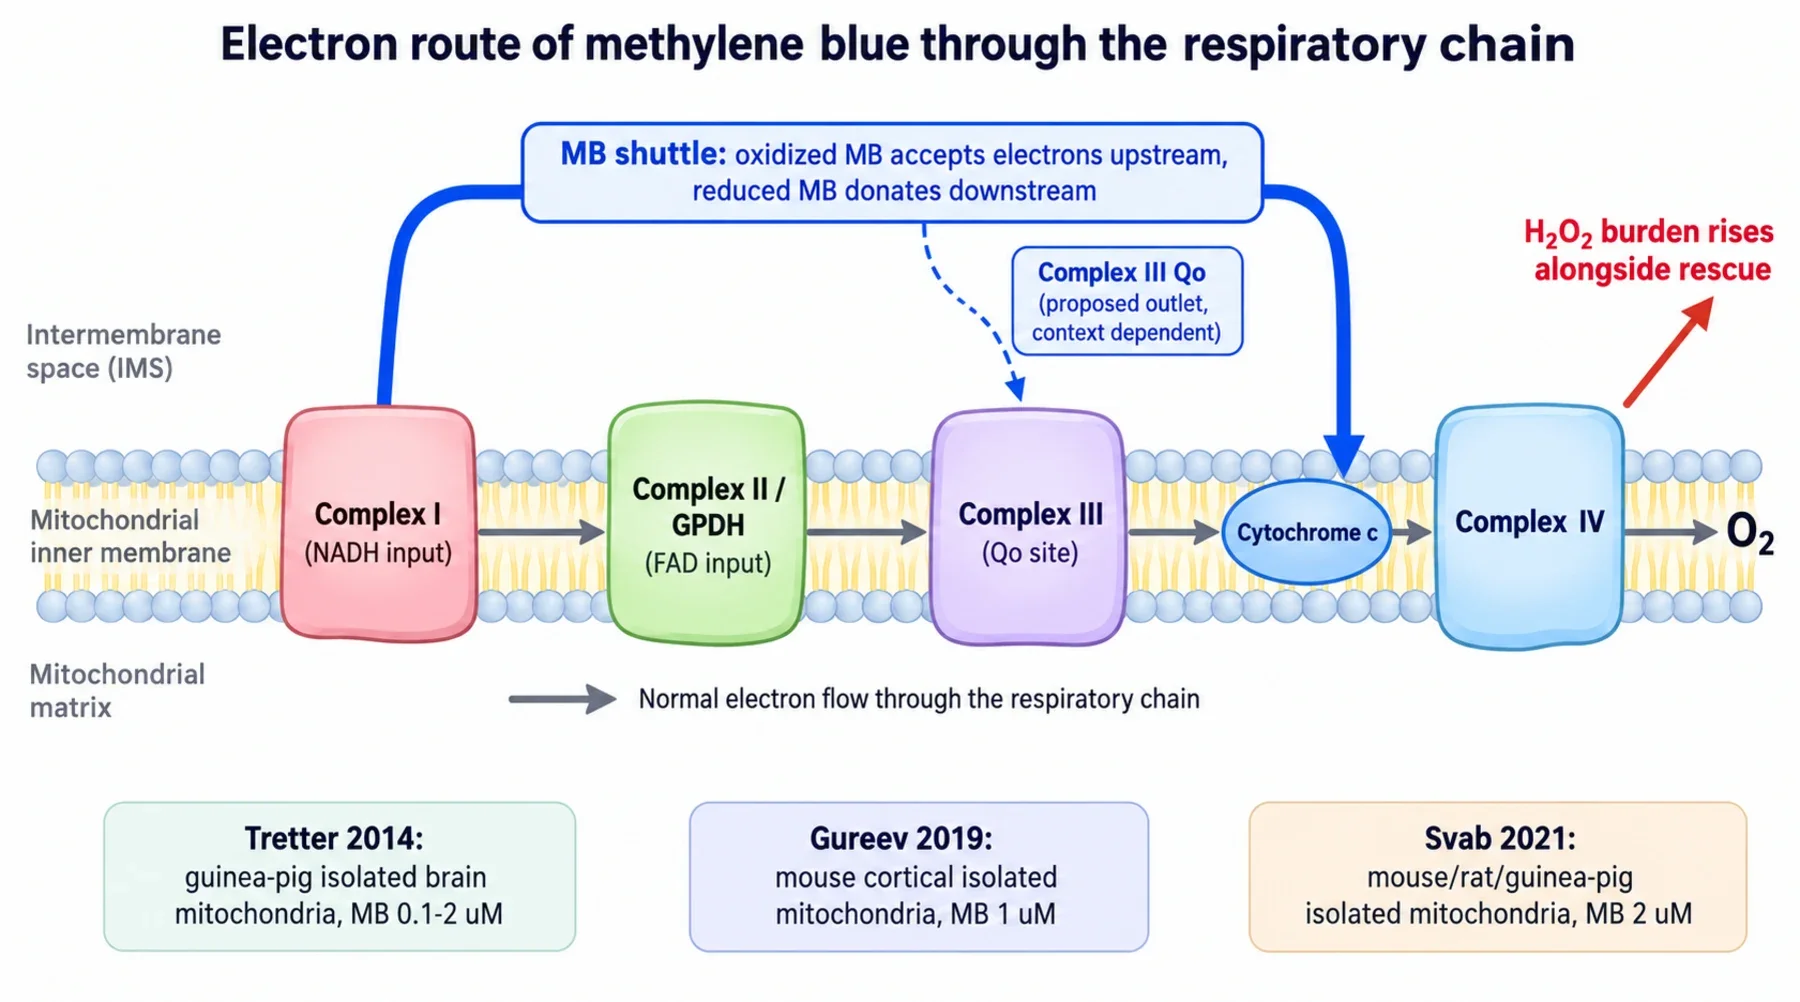
La cadena respiratoria es una línea de relevos. Los electrones entran en el Complejo I (desde NADH) o en el Complejo II y enzimas flavínicas relacionadas (desde succinato y donantes similares), pasan por el Complejo III hasta el portador móvil citocromo c y después por el Complejo IV hasta el oxígeno. Cada transferencia bombea protones a través de la membrana interna, y el gradiente resultante impulsa la síntesis de ATP. Bloquea cualquier estación y la línea situada aguas arriba queda inactiva.
El azul de metileno se inserta como un mensajero paralelo. Su forma oxidada recoge electrones de los portadores situados aguas arriba, convirtiéndose en la forma reducida incolora, azul de leucometileno, que después entrega esos electrones aguas abajo y vuelve a ser azul. Las dos formas se describen en la explicación del par redox, y el comportamiento general del relevo pertenece a la explicación general del mecanismo. La pregunta abierta es dónde vuelve a entrar el mensajero en la línea: el sitio Qo de unión de quinol del Complejo III o directamente el citocromo c. Qué salida predomina depende de las condiciones, como explica en detalle el análisis del bypass del Complejo III.
Lo que tres estudios en roedores midieron realmente
Los tres estudios utilizaron mitocondrias cerebrales aisladas, es decir, orgánulos extraídos de la célula y suspendidos en un tampón definido. No hubo células intactas, animales tratados ni sujetos humanos. Las concentraciones se refieren al medio alrededor de los orgánulos, no a una dosis oral humana. Mantén ese marco fijo y los números hablan con claridad.
El primer estudio, en mitocondrias cerebrales de cobaya aisladas a 100 nanomolar hasta 2 micromolar, cartografió beneficio y coste en una misma preparación. En mitocondrias sanas, el colorante elevó el consumo basal de oxígeno, pero dejó sin cambios la respiración estimulada por ADP, por lo que la producción acoplada de ATP no mejoró. Bajo bloqueo del Complejo I, 2 micromolar restauró la síntesis de ATP de 46 a 93 nanomoles por minuto por miligramo frente a una tasa normal cercana a 1109. Bajo bloqueo del Complejo III, la misma dosis restauró el ATP de aproximadamente 46 a 63 frente a una tasa normal cercana a 910. El voltaje y la captación de calcio se recuperaron parcialmente. El bloqueo con cianuro del Complejo IV no pudo evitarse, lo que sitúa la salida útil de electrones aguas arriba del Complejo IV funcional. Todos los rescates fueron estadísticamente reales y pequeños: porcentajes de un solo dígito de la producción normal de ATP.
El segundo estudio, en mitocondrias corticales de ratón a alrededor de 1 micromolar, confirmó el bypass del Complejo I y estableció un límite en el Complejo III. La rotenona redujo la respiración de aproximadamente 121 a menos de 2 nanomoles de oxígeno por minuto por miligramo, y el colorante la elevó hasta aproximadamente 21, cerca de una sexta parte de lo normal, mientras que el voltaje de membrana se recuperó casi por completo. Pero después del bloqueo del Complejo III, ni la respiración ni el voltaje se recuperaron entre 1 y 5 micromolar, y el bloqueo redujo la señal de peróxido impulsada por el colorante. Los autores propusieron que el colorante reducido entrega sus electrones en el sitio Qo del Complejo III: con ese sitio ocupado, el mensajero no tiene dónde entregar.
El tercer estudio, en mitocondrias cerebrales de ratón, rata y cobaya principalmente a 2 micromolar, probó directamente el desacuerdo y encontró que un bloqueo del Complejo III puede superarse. Con el inhibidor del sitio Qo, mixotiazol, reduciendo la respiración basal en un 88 por ciento, el colorante restauró el uso de oxígeno hasta aproximadamente el 62 por ciento de la tasa sin bloqueo. En una prueba directa, medio micromolar de citocromo c reducido exógeno incluso con el Complejo III bloqueado apoyó una ruta desde NADH a través del colorante hasta el citocromo c y después hasta el Complejo IV. Pero la respiración rescatada se comportó de forma anormal: el ADP añadido redujo el uso de oxígeno en lugar de aumentarlo, y el bloqueo de la síntesis de ATP estimuló la respiración. El voltaje se repolarizó solo parcialmente. Un alto uso de oxígeno con acoplamiento invertido no es una producción energética normal.
Por qué los laboratorios discrepan y qué resuelve la cuestión
La explicación basada en especies falla primero. El tercer grupo repitió el trabajo en tres roedores y obtuvo el mismo bypass cualitativo en todos ellos, incluida la cepa de ratón donde se había informado de ausencia del bypass. Lo que cambia en realidad es la concentración (1 frente a 2 micromolar), las dosis de inhibidores, los tampones, los métodos de aislamiento y, sobre todo, el estado energético comparado: el bypass es más claro antes de añadir ADP, exactamente donde aparece la respuesta paradójica al ADP. El diagrama honesto muestra por tanto dos salidas dependientes de las condiciones, una en el sitio Qo y otra en el citocromo c. El mensajero entrega donde la química local le permite entregar.
El coste del peróxido
El lado del coste es tan consistente como el lado del rescate. En el trabajo con cobayas, el colorante elevó la liberación de peróxido bajo todas las condiciones probadas: reposo, síntesis de ATP y deterioro químico, con los tres sustratos. Durante la síntesis de ATP, la producción aumentó de aproximadamente 148 a más de 1500 picomoles por minuto por miligramo a 1 micromolar, y hasta 100 nanomolar multiplicó por más de cuatro la señal. El colorante también ralentizó la eliminación de peróxido aproximadamente 2,6 veces, por lo que la señal refleja una formación más rápida junto con una eliminación más lenta. La química propuesta es una reducción directa del oxígeno por el colorante reducido sin superóxido detectable, aunque sigue siendo una interpretación y no un paso demostrado.
El trabajo con ratones complica la imagen de una manera útil. El peróxido aumentó considerablemente con la dosis, desde un nivel basal cercano a 76 hasta casi 2000 picomoles por minuto por miligramo a 2 micromolar, pero el bloqueo del Complejo III suprimió el componente impulsado por el colorante. Si el peróxido proviniera únicamente del colorante reducido reaccionando con oxígeno, bloquear la cadena no debería importar tanto. Sí importa, por lo que la cadena participa. La revisión sobre antioxidante y prooxidante sitúa esta dualidad en un contexto más amplio, y el análisis de oxígeno frente a ATP explica por qué los números de oxígeno por sí solos nunca resuelven una afirmación energética.
El rescate no es reparación
La frase que debe abandonarse es "¿el azul de metileno repara las mitocondrias?". Reparación significaría una corrección duradera: complejos reconstruidos, acoplamiento que persiste después de que el fármaco desaparece, recuperación en células intactas y después mejora funcional en un organismo vivo. Ninguno de los tres artículos muestra eso. Muestran un desvío agudo en orgánulos recién aislados durante un bloqueo químico artificial, con producción de ATP en pequeñas fracciones de lo normal y, en ocasiones, un acoplamiento claramente extraño. La rotenona y la antimicina son herramientas de laboratorio, no modelos de envejecimiento o enfermedad mitocondrial humana, y nada de esto se traduce en más energía para una persona sana, lo que constituye una cuestión de evidencia separada con su propia literatura humana.
Tres límites mantienen honesta cualquier conclusión de biohacking. Primero, la concentración del medio no es una dosis: 0,1 a 2 micromolar alrededor de orgánulos aislados no dice nada sobre qué cantidad oral produce esa concentración libre en una mitocondria cerebral humana, especialmente porque el colorante se acumula o libera dependiendo del propio voltaje de membrana. Segundo, el oxígeno no es energía: el colorante puede aumentar el uso de oxígeno mediante ciclos y fugas además de mediante fosforilación productiva, por lo que la respirometría sin mediciones de ATP y voltaje no permite una afirmación energética. Tercero, beneficio y carga comparten una misma frase: cualquier declaración de voltaje o ATP rescatado que omita el aumento simultáneo de peróxido presenta de forma incorrecta el experimento. Otros matices relacionados incluyen el equilibrio redox de NAD, la forma de la respuesta a la dosis y la guía de ensayos.
Una nota práctica: el transportador es una propiedad de la molécula exacta. Los parientes desmetilados como Azure B también son redox activos, con comportamientos diferentes, por lo que una solución parcialmente degradada es un experimento distinto del colorante intacto. Esa es una razón para insistir en la especificación farmacopeica completa y un documento de lote publicado en lugar de un análisis únicamente de metales. La química impulsada por luz añade una advertencia paralela para usos con iluminación, cubierta en combinaciones con luz roja.
La afirmación limitada sobrevive a todo esto y merece conservarse: el azul de metileno puede actuar como un transportador condicional de electrones en mitocondrias aisladas dañadas, preservando parcialmente el flujo a cambio de un coste en peróxido. Todo lo demás, energía, longevidad, reparación, espera evidencia que estos estudios nunca fueron diseñados para proporcionar.