
مقال
أزرق الميثيلين والميتوكوندريا: نقل الإلكترونات والأدلة
تخيّل تحضيرين موضوعين جنبًا إلى جنب. يحتوي كلاهما على ميتوكوندريا دماغية سُمّمت بالروتينون، وهي مادة كيميائية تحجب Complex I من السلسلة التنفسية. في أحدهما، يضيف الباحث بالماصة جرعة ميكرومولارية من أزرق الميثيلين. يتعافى استهلاك الأكسجين جزئيًا. ويعود جهد الغشاء جزئيًا. ويُستأنف قدر صغير من تصنيع ATP. وفي الكوفيت المجاور، يكشف مستشعر البيروكسيد النصف الآخر من القصة: ازداد إنتاج بيروكسيد الهيدروجين عدة أضعاف، عند كل جرعة خضعت للاختبار، ومع كل ركيزة جُرّبت.
كلتا القراءتين صحيحتان. أزرق الميثيلين ناقل للإلكترونات يمكنه إبقاء تدفق التيار مستمرًا حول جزء متضرر من السلسلة التنفسية، والناقل نفسه يفرض في أثناء ذلك كلفة على شكل بيروكسيد. إذا احتفظت بالحقيقتين معًا، تصبح الأدبيات المتعلقة بوظيفة أزرق الميثيلين في الميتوكوندريا مفهومة. وإذا تمسكت بواحدة فقط، فستبدو القصة معجزة أو تهديدًا بحسب الورقة التي قرأتها أولًا.
الناقل، بصياغة مباشرة
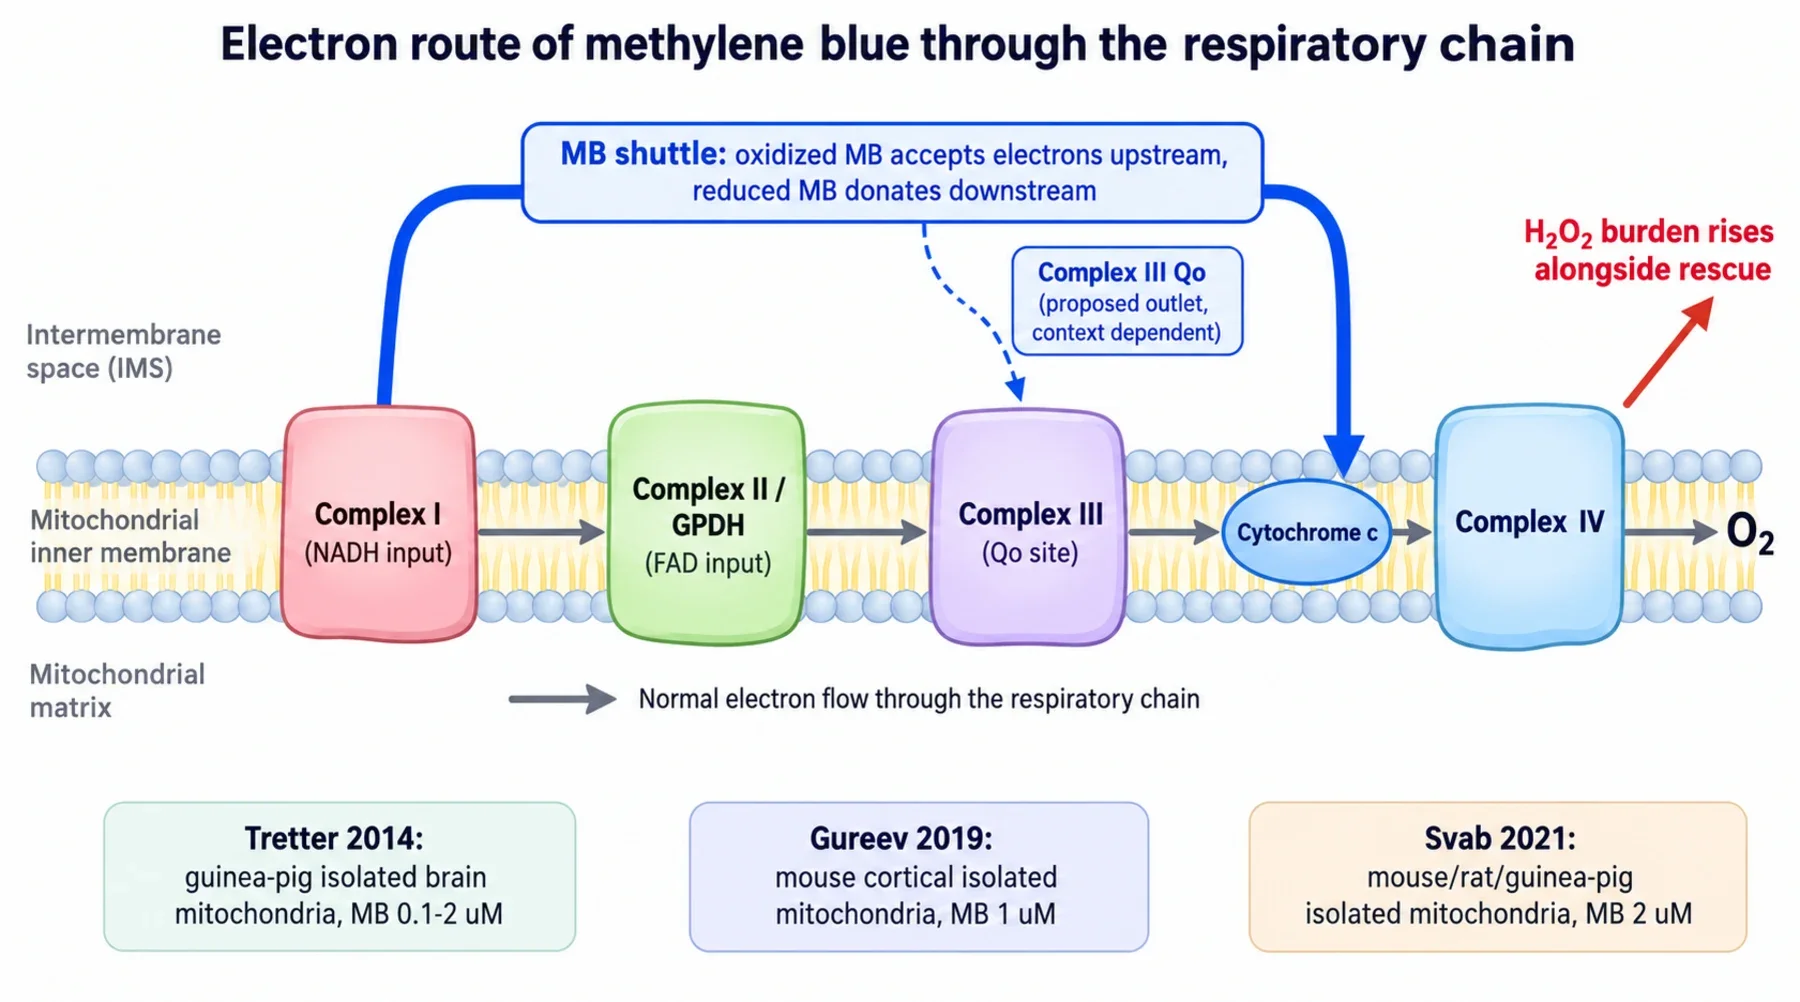
السلسلة التنفسية أشبه بخط تتابع. تدخل الإلكترونات عند Complex I (من NADH) أو عند Complex II والإنزيمات الفلافينية ذات الصلة (من السكسينات والمانحين المشابهين)، ثم تمر عبر Complex III إلى الناقل المتحرك cytochrome c، وبعد ذلك عبر Complex IV إلى الأكسجين. تضخ كل عملية تسليم البروتونات عبر الغشاء الداخلي، ويقود التدرج الناتج تصنيع ATP. إذا حُجبت أي محطة، يهدأ الخط الواقع قبلها.
يدخل أزرق الميثيلين في هذا المسار كناقل موازٍ. تلتقط صورته المؤكسدة الإلكترونات من النواقل السابقة في المسار، فتتحول إلى الصورة المختزلة عديمة اللون، leucomethylene blue، التي تسلّم تلك الإلكترونات إلى مواقع لاحقة ثم تعود إلى اللون الأزرق. وُصفت الصورتان في شرح زوج الأكسدة والاختزال، وينتمي سلوك التتابع الأوسع إلى الشرح العام للآلية. والسؤال المفتوح هو أين يعاود الناقل الدخول إلى الخط: في جيب ارتباط quinol في Complex III المعروف باسم موقع Qo، أم مباشرة عند cytochrome c. ويتوقف أي المخرجين يهيمن على الظروف، كما يوضّح بالتفصيل تحليل تجاوز Complex III.
ما الذي قاسَته ثلاث دراسات على القوارض فعليًا
استخدمت الدراسات الثلاث كلها ميتوكوندريا دماغية معزولة، أي عضيات أُزيلت من الخلية وعُلّقت في محلول منظم محدد. لم تكن هناك خلايا سليمة، ولا حيوانات تلقت جرعات، ولا مشاركون بشريون. تشير التراكيز إلى الوسط المحيط بالعضيات، لا إلى جرعة فموية بشرية. إذا ثبّتت هذا الإطار، تصبح الأرقام واضحة.
رسمت الدراسة الأولى، التي أُجريت على ميتوكوندريا دماغ خنزير غينيا المعزولة بتركيز من 100 نانومولار إلى 2 ميكرومولار، صورة للفائدة والكلفة في التحضير نفسه. في الميتوكوندريا السليمة، زادت الصبغة استهلاك الأكسجين في حالة الراحة، لكنها أبقت التنفس المحفَّز بـ ADP دون تغيير، ولذلك لم يتحسن إنتاج ATP المقترن. عند حجب Complex I، أعاد تركيز 2 ميكرومولار تصنيع ATP من 46 إلى 93 نانومولًا في الدقيقة لكل مليغرام، مقارنة بمعدل طبيعي يقارب 1109. وعند حجب Complex III، أعادت الجرعة نفسها ATP من نحو 46 إلى 63 مقارنة بمعدل طبيعي يقارب 910. تعافى الجهد وامتصاص الكالسيوم جزئيًا. ولم يكن من الممكن تجاوز حجب Complex IV بالسيانيد، ما يضع مخرج الإلكترونات المفيد قبل Complex IV العامل. كانت جميع حالات الاستعادة ذات دلالة إحصائية لكنها صغيرة: نسبًا مئوية من خانة واحدة من إنتاج ATP الطبيعي.
أكدت الدراسة الثانية، التي أُجريت على ميتوكوندريا قشرية لفئران بتركيز يقارب 1 ميكرومولار، تجاوز Complex I ورسمت حدًا عند Complex III. خفّض الروتينون التنفس من نحو 121 إلى أقل من 2 نانومول من الأكسجين في الدقيقة لكل مليغرام، ورفعته الصبغة إلى نحو 21، أي ما يقارب سدس المستوى الطبيعي، بينما تعافى جهد الغشاء بالكامل تقريبًا. لكن بعد حجب Complex III، لم يتعافَ التنفس ولا الجهد عبر نطاق 1 إلى 5 ميكرومولار، كما أدى الحجب إلى كبح إشارة البيروكسيد التي تولدها الصبغة. اقترح المؤلفون أن الصبغة المختزلة تسلّم إلكتروناتها عند موقع Qo في Complex III: فإذا كان ذلك الموقع مشغولًا، لا يجد الناقل مكانًا للتسليم.
أما الدراسة الثالثة، التي أُجريت على ميتوكوندريا أدمغة الفئران والجرذان وخنازير غينيا بتركيز 2 ميكرومولار أساسًا، فقد اختبرت موضع الخلاف مباشرة ووجدت أنه يمكن جسر حجب Complex III. عندما خفّض مثبط موقع Qo المسمى myxothiazol التنفس الأساسي بنسبة 88 بالمئة، أعادت الصبغة استهلاك الأكسجين إلى نحو 62 بالمئة من المعدل دون حجب. وفي اختبار مباشر، خفّض نصف ميكرومولار من الصبغة cytochrome c الخارجي حتى مع حجب Complex III، ما يدعم مسارًا يبدأ من NADH ويمر عبر الصبغة إلى cytochrome c ثم إلى Complex IV. لكن التنفس المستعاد تصرف بصورة غير طبيعية: أدت إضافة ADP إلى خفض استهلاك الأكسجين بدلًا من رفعه، كما أدى حجب تصنيع ATP إلى تحفيز التنفس. ولم يُستعد استقطاب الجهد إلا جزئيًا. ارتفاع استهلاك الأكسجين مع اقتران معكوس لا يمثل إنتاجًا طبيعيًا للطاقة.
لماذا تختلف المختبرات، وما الذي يحسم الأمر
يفشل تفسير الاختلاف بين الأنواع أولًا. أعادت المجموعة الثالثة التجربة على ثلاثة أنواع من القوارض وحصلت على التجاوز النوعي نفسه في جميعها، بما في ذلك سلالة الفئران التي سبق الإبلاغ عن غياب التجاوز فيها. وما يختلف بدلًا من ذلك هو التركيز (1 مقابل 2 ميكرومولار)، وجرعات المثبطات، والمحاليل المنظمة، وطرائق العزل، وفوق كل ذلك الحالة الطاقية التي جرت مقارنتها: يكون التجاوز أوضح ما يكون قبل إضافة ADP، وتحديدًا في الموضع الذي تظهر فيه الاستجابة المتناقضة لـ ADP. لذلك يعرض المخطط الصادق مخرجين يعتمدان على الظروف، أحدهما عند موقع Qo والآخر عند cytochrome c. يسلّم الناقل حيث تسمح الكيمياء المحلية بذلك.
كلفة البيروكسيد
جانب الكلفة متسق بقدر اتساق جانب الاستعادة. في دراسة خنزير غينيا، زادت الصبغة إطلاق البيروكسيد تحت كل حالة خضعت للاختبار، في الراحة، وأثناء تصنيع ATP، وتحت الإعاقة الكيميائية، وعبر الركائز الثلاث جميعها. أثناء تصنيع ATP، ارتفع الإنتاج من نحو 148 إلى أكثر من 1500 بيكومول في الدقيقة لكل مليغرام عند 1 ميكرومولار، وحتى 100 نانومولار زادت الإشارة بأكثر من أربعة أضعاف. كما أبطأت الصبغة التخلص من البيروكسيد بنحو 2.6 ضعف، لذلك تعكس الإشارة تكوّنًا أسرع إلى جانب تصفية أبطأ. والكيمياء المقترحة هي الاختزال المباشر للأكسجين بواسطة الصبغة المختزلة من دون اكتشاف superoxide، إلا أن ذلك يظل تفسيرًا لا خطوة مثبتة.
وتعقّد دراسة الفئران الصورة بطريقة مفيدة. ارتفع البيروكسيد بحدة مع الجرعة، من خط أساس يقارب 76 إلى قرابة 2000 بيكومول في الدقيقة لكل مليغرام عند 2 ميكرومولار، ومع ذلك أدى حجب Complex III إلى كبح المكوّن الذي تولده الصبغة. لو كان البيروكسيد يأتي فقط من تفاعل الصبغة المختزلة مع الأكسجين، لما كان لحجب السلسلة هذا الأثر الكبير. لكنه يؤثر بالفعل، ما يعني أن السلسلة تشارك في العملية. تضع مراجعة التأثير المضاد للأكسدة والمؤكسد هذه الازدواجية في سياق أوسع، بينما يوضح تحليل الأكسجين مقابل ATP لماذا لا تحسم أرقام الأكسجين وحدها أي ادعاء متعلق بالطاقة.
الاستعادة ليست إصلاحًا
العبارة التي ينبغي التوقف عن استخدامها هي "هل يصلح أزرق الميثيلين الميتوكوندريا". الإصلاح يعني تصحيحًا دائمًا: إعادة بناء المعقّدات، واقترانًا يستمر بعد مغادرة المادة، وتعافيًا في الخلايا السليمة، ثم تحسنًا في الوظيفة داخل كائن حي. لا تُظهر أي من الأوراق الثلاث ذلك. ما تُظهره هو إعادة توجيه حادة في عضيات معزولة حديثًا أثناء حجب كيميائي اصطناعي، مع إنتاج ATP عند أجزاء صغيرة من المستوى الطبيعي، وأحيانًا باقتران غريب بوضوح. الروتينون وantimycin أداتان مختبريتان، وليسا نموذجين للشيخوخة أو لأمراض الميتوكوندريا البشرية، ولا يترجم أي شيء هنا إلى طاقة أكبر لشخص سليم، وهي مسألة أدلة منفصلة لها أدبياتها البشرية الخاصة.
تحافظ ثلاثة حدود على أي استنتاج متعلق بالـ biohacking ضمن إطار دقيق. أولًا، تركيز الوسط ليس جرعة: وجود 0.1 إلى 2 ميكرومولار حول عضيات معزولة لا يخبرنا بشيء عن الكمية الفموية التي تنتج ذلك التركيز الحر عند ميتوكوندريا في دماغ إنسان، ولا سيما أن الصبغة تتراكم أو تتحرر بحسب جهد الغشاء نفسه. ثانيًا، الأكسجين ليس طاقة: يمكن للصبغة رفع استهلاك الأكسجين عبر الدوران والتسرب وكذلك عبر الفسفرة المنتجة، لذلك لا يمكن لقياس التنفس من دون قراءات ATP والجهد أن يبرر ادعاءً متعلقًا بالطاقة. ثالثًا، الفائدة والعبء ينتميان إلى الجملة نفسها: أي وصف لاستعادة الجهد أو ATP يحذف الارتفاع المصاحب في البيروكسيد يقدّم التجربة بصورة غير دقيقة. وتشمل المحددات ذات الصلة توازن الأكسدة والاختزال لـ NAD، وشكل الاستجابة للجرعة، ودليل اختيار الاختبارات.
ملاحظة عملية أخيرة: خاصية النقل مرتبطة بالجزيء المحدد نفسه. فالمركبات القريبة منه منزوعة الميثيل مثل Azure B نشطة أيضًا في تفاعلات الأكسدة والاختزال، لكن بسلوك مختلف، ولذلك فإن محلولًا متحللًا جزئيًا يمثل تجربة مختلفة عن الصبغة السليمة. وهذا أحد أسباب ضرورة الإصرار على المواصفة الدستورية الدوائية الكاملة ووثيقة دفعة منشورة، بدلًا من الاكتفاء بفحص المعادن فقط. وتضيف الكيمياء المحفَّزة بالضوء قيدًا موازيًا للاستخدامات المعرضة للإضاءة، وهو ما تتناوله تركيبات الضوء الأحمر.
يبقى الادعاء الضيق قائمًا بعد كل ذلك ويستحق الاحتفاظ به: يمكن لأزرق الميثيلين أن يعمل كناقل إلكترونات مشروط داخل الميتوكوندريا المعزولة المتضررة، محافظًا جزئيًا على التدفق مقابل كلفة تتمثل في البيروكسيد. أما كل ما يتجاوز ذلك، من الطاقة وطول العمر إلى الإصلاح، فينتظر أدلة لم تُصمم هذه الدراسات أصلًا لتقديمها.