
文章
细胞生物学中的亚甲蓝:靶点、模型与测量效应
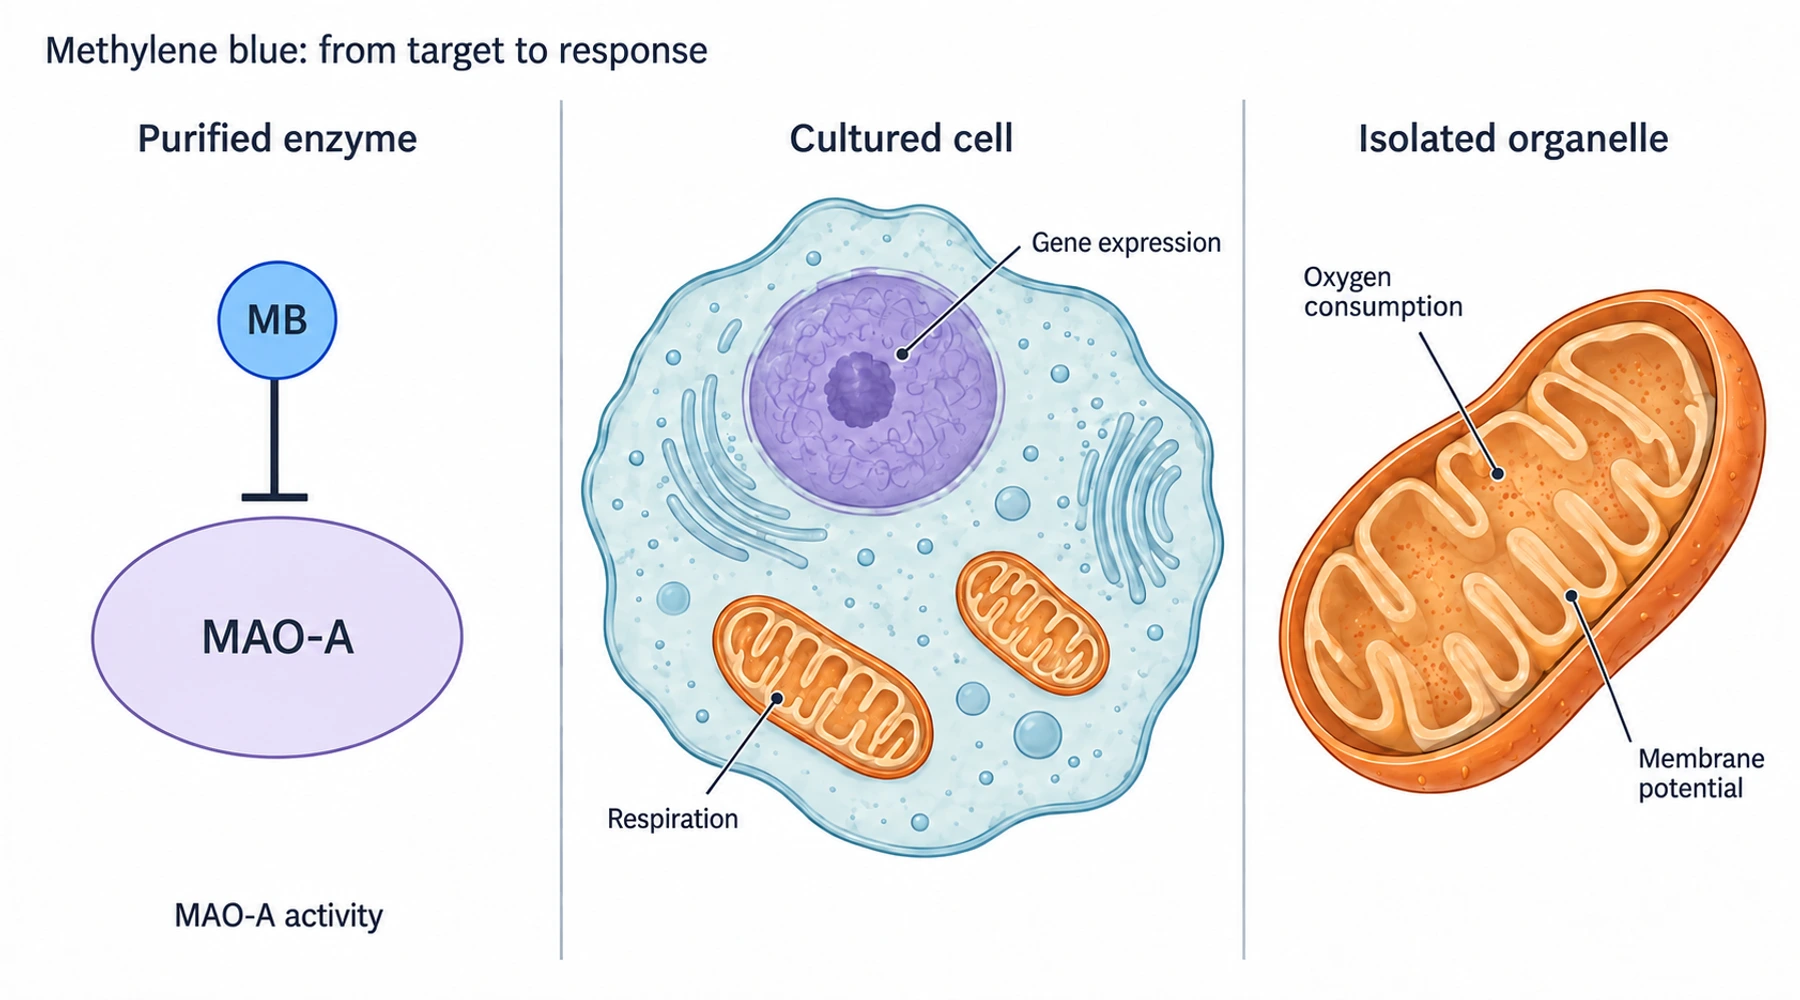
亚甲蓝具有多种得到实验支持的分子作用,但仅列出通路名称会掩盖每项实验实际上证实了什么。抑制纯化酶、改变培养细胞中的氧耗,以及降低小鼠脑内的蛋白质信号,是不同的观察结果。它们需要不同的对照,也支持不同的结论。
本研究索引按过程、模型和终点整理这些观察结果。配套封面是实验系统的概念性示意图,并非分子结构测定结果或显微镜图像。有关基础化学,请先阅读氧化还原化学与生物学机制。
先阅读证据标签
生化证据在完整细胞之外测试明确的蛋白质或反应。它可以在特定条件下证实抑制或电子转移。细胞证据进一步纳入摄取、代谢、区室化以及相互作用通路。依赖性证据用于检验移除某个拟议通路组分后,相关响应是否消失。整体动物证据测量具有循环、代谢和多种组织的动物中的效应。
这些标签描述的是所回答的问题,而不是单一的证据排名。敲除实验可以确定某个必要的信号组分,但并不能证明亚甲蓝会直接与该组分结合。动物行为结果可以证实一种表型,但不能确定其分子原因。
相互链接的分子靶点图谱
请横向阅读每一行。第一列链接至相应通路讨论;研究链接则标明实验依据。这是一份精选的机制性锚点图谱,并非对所有已报道细胞效应的穷尽目录。
| 过程或靶点 | 实验系统与证据类型 | 测量终点与解释 |
|---|---|---|
| MAO 与神经递质代谢 | 纯化重组人 MAO-A 和 MAO-B;生化动力学 | Ramsay 及其同事测量了酶抑制。MAO-A 的敏感性高得多;研究未测量情绪或脑内血清素终点。 |
| NOS 与 cGMP 信号传导 | 纯化 NO 合酶、内皮细胞、离体血管;生化与功能性测定 | Mayer 及其同事分别测量了瓜氨酸形成、cGMP 生成和舒张。不能把 NOS 抑制重新表述为选择性可溶性鸟苷酸环化酶抑制。 |
| 线粒体电子传递 | 转化小鼠海马 HT-22 细胞和生化反应;细胞与生化证据 | Wen 及其同事测量了氧耗、酸化、ATP 和氧化还原依赖性电子转移。这些终点分别进行了测定。 |
| 复合体 III 旁路 | 使用呼吸抑制剂处理的离体小鼠脑线粒体;细胞器实验 | 一项复合体 III 抗霉素研究发现,在该阻断之后,亚甲蓝未能恢复呼吸和膜电位,尽管在复合体 I 抑制后可实现部分恢复。 |
| Nrf2 与线粒体生物发生 | 野生型和 Nrf2 敲除小鼠胚胎成纤维细胞;遗传依赖性 | Stack 及其同事测量了抗氧化反应相关转录本。敲除细胞中的诱导消失支持其对 Nrf2 的依赖性,而不证明亚甲蓝会直接结合 Nrf2。 |
| 自噬与 mTOR 信号传导 | 表达人 tau 的中国仓鼠卵巢细胞;报告基因与敲低实验 | Congdon 及其同事考察了 LC3 报告系统、激酶磷酸化和 tau。BECN1 敲低消除了观察到的 tau 降低响应。 |
| Tau 处理与蛋白质清除 | 纯化 Hsp70 测定和表达人 tau 的 HeLa 细胞;生化与细胞证据 | Jinwal 及其同事将 ATPase 抑制与蛋白酶体依赖性 tau 降低联系起来。这不同于阻止纯化 tau 纤维组装。 |
| Tau 凝聚体形成 | 重构的重组 tau 液滴;独立的 SH-SY5Y 细胞毒性测定 | 一项2023 年相分离研究在体外测量了液滴形成和凝胶化,随后在暴露于经孵育的 tau 物种后通过 MTT 评估细胞活力。该细胞实验并未测量细胞内凝聚体形成。 |
可下载的分子靶点图谱在可复用的文本文档中保留了原始研究链接、证据标签和关键实验条件。
原始实验区分了什么
酶抑制取决于具体测定条件
纯化人酶研究采用紧密结合分析,报告了 MAO-A 抑制常数 Ki = 27 ± 3 nM。在所述测定条件下,其 MAO-A IC50 为 164 ± 8 nM。Ki 和 IC50 不能互换:后者取决于测量半数抑制时采用的酶和底物条件。这两个数值都不是人体剂量,也不是预测的组织浓度。
NOS 比较同样具有信息价值。纯化 NO 合酶在 30 μM 亚甲蓝下失去了全部测得的瓜氨酸形成活性。在同一篇论文中,由 S-亚硝基谷胱甘肽刺激的鸟苷酸环化酶需要约 60 μM 才达到半数抑制。因此,细胞 cGMP 下降本身并不能把作用位置确定在鸟苷酸环化酶。它也可能反映用于激活该酶的 NO 生成减少。
呼吸并不等同于 ATP 生成
在 HT-22 研究中,研究人员使用寡霉素、FCCP 和鱼藤酮探查呼吸行为。他们还独立测量了 ATP。作为对照物的 FCCP 在降低细胞 ATP 的同时增加氧耗,这直接说明为什么仅凭氧耗曲线无法回答 ATP 相关问题。专门讨论氧耗与 ATP的指南进一步阐述了这一区别。
后续对离体小鼠脑线粒体的研究使用了包括丙酮酸和苹果酸在内的底物。在 1 μM 时,亚甲蓝部分恢复了被鱼藤酮抑制的呼吸,但在抗霉素作用后效果很小。这一结果限制了“该染料始终可以同时绕过复合体 I 和 III”的普遍性说法。任何拟议的电子转移示意图旁,都应同时注明物种、线粒体制备方式、底物、抑制剂和测定条件。
基因响应不能证明直接靶点结合
在 Nrf2 实验中,0.1、1 和 10 μM 亚甲蓝提高了野生型小鼠胚胎成纤维细胞中的 HO1 转录本,而 Nrf2 敲除细胞中没有出现该响应。与仅测量处理后细胞中的表达相比,这种遗传学比较对通路依赖性的说明更充分。
但它仍未解决起始分子事件。Nrf2 依赖性转录、线粒体生物发生、改变的 NAD+/NADH 平衡以及 AMPK 信号传导,在有实验将它们连接起来之前,应继续作为彼此独立的条目。单个线粒体基因表达增加并不能证明细胞生成了更多具有功能的线粒体。
蛋白质清除存在多条途径
自噬研究将表达 tau 的 CHO 细胞暴露于 0.01 μM 亚甲蓝六小时,并与载体对照进行比较。串联红色/绿色 LC3 报告系统有助于区分较早阶段的囊泡与酸化的自噬溶酶体;巴佛洛霉素则提供了损害通量的对照条件。BECN1 敲低用于检验自噬机制是否参与 tau 降低。这些实验超出了简单计数 LC3 阳性斑点的做法,因为当形成增加或清除减慢时,这些斑点都可能累积。
相比之下,Hsp70 研究在另一种细胞系统中考察了 ATPase 活性和蛋白酶体依赖性 tau 清除。2023 年的凝聚体实验则提出了另一个问题:tau 分子如何形成液滴并改变其材料性质。总 tau、磷酸化 tau、不溶性纤维和凝胶样凝聚体是不同的终点。把它们合并为一个“抗 tau”说法,会抹去正在检验的具体机制。
根据尚未区分的问题选择下一项实验
对于一篇新论文,在解释其通路图之前,应先提取确切的化学身份、浓度、暴露时长、溶剂、光照条件、模型、对照物和终点。应使测定方法与所声称的结论相匹配:用呼吸测量评估呼吸通量,用 ATP 评估能量可用性,用酶动力学评估抑制,用遗传扰动评估通路依赖性。
剂量-反应指南讨论随浓度变化而出现方向改变的响应。抗氧化与促氧化指南将氧化还原循环与笼统的抗氧化剂标签区分开来。细胞进入与膜分配解释了为什么培养基中的标称浓度并不自动等同于细胞内暴露;Azure B 研究解释了为什么相关染料物种不能被视为可相互替代。
更广泛的文献还涉及半胱天冬酶活性、铁死亡、炎症信号传导以及细胞衰老。当终点是细胞死亡、细胞因子信号传导或持续性生长停滞时,这些都是有用的研究路径。它们并不能进一步证明所有分子作用都会在同一种细胞、同一浓度下同时发生。本图谱通过实验证据梳理研究路径;它不会把这些实验转化为临床获益。