
文章
亚甲蓝与线粒体:电子传递和证据
想象两个并排的实验体系。两者都含有被鱼藤酮(一种阻断呼吸链复合体 I 的化学物质)毒害的脑线粒体。实验人员向其中一个体系加入微摩尔剂量的亚甲蓝。氧气消耗部分恢复。膜电压部分恢复。少量 ATP 合成重新启动。而在相邻的比色皿中,过氧化物传感器揭示了另一半事实:在每个测试剂量下、每种尝试的底物条件下,过氧化氢输出都增加了数倍。
两组读数都是正确的。亚甲蓝是一种电子穿梭体,可以让电流绕过呼吸链中的受损区域继续流动;而同一个穿梭过程也会在此过程中产生过氧化物代价。将这两个事实同时保留,关于亚甲蓝线粒体功能的文献就变得容易理解。只保留其中一个,结论就会根据你先读到哪篇论文而呈现为奇迹或威胁。
用简单方式说明穿梭机制
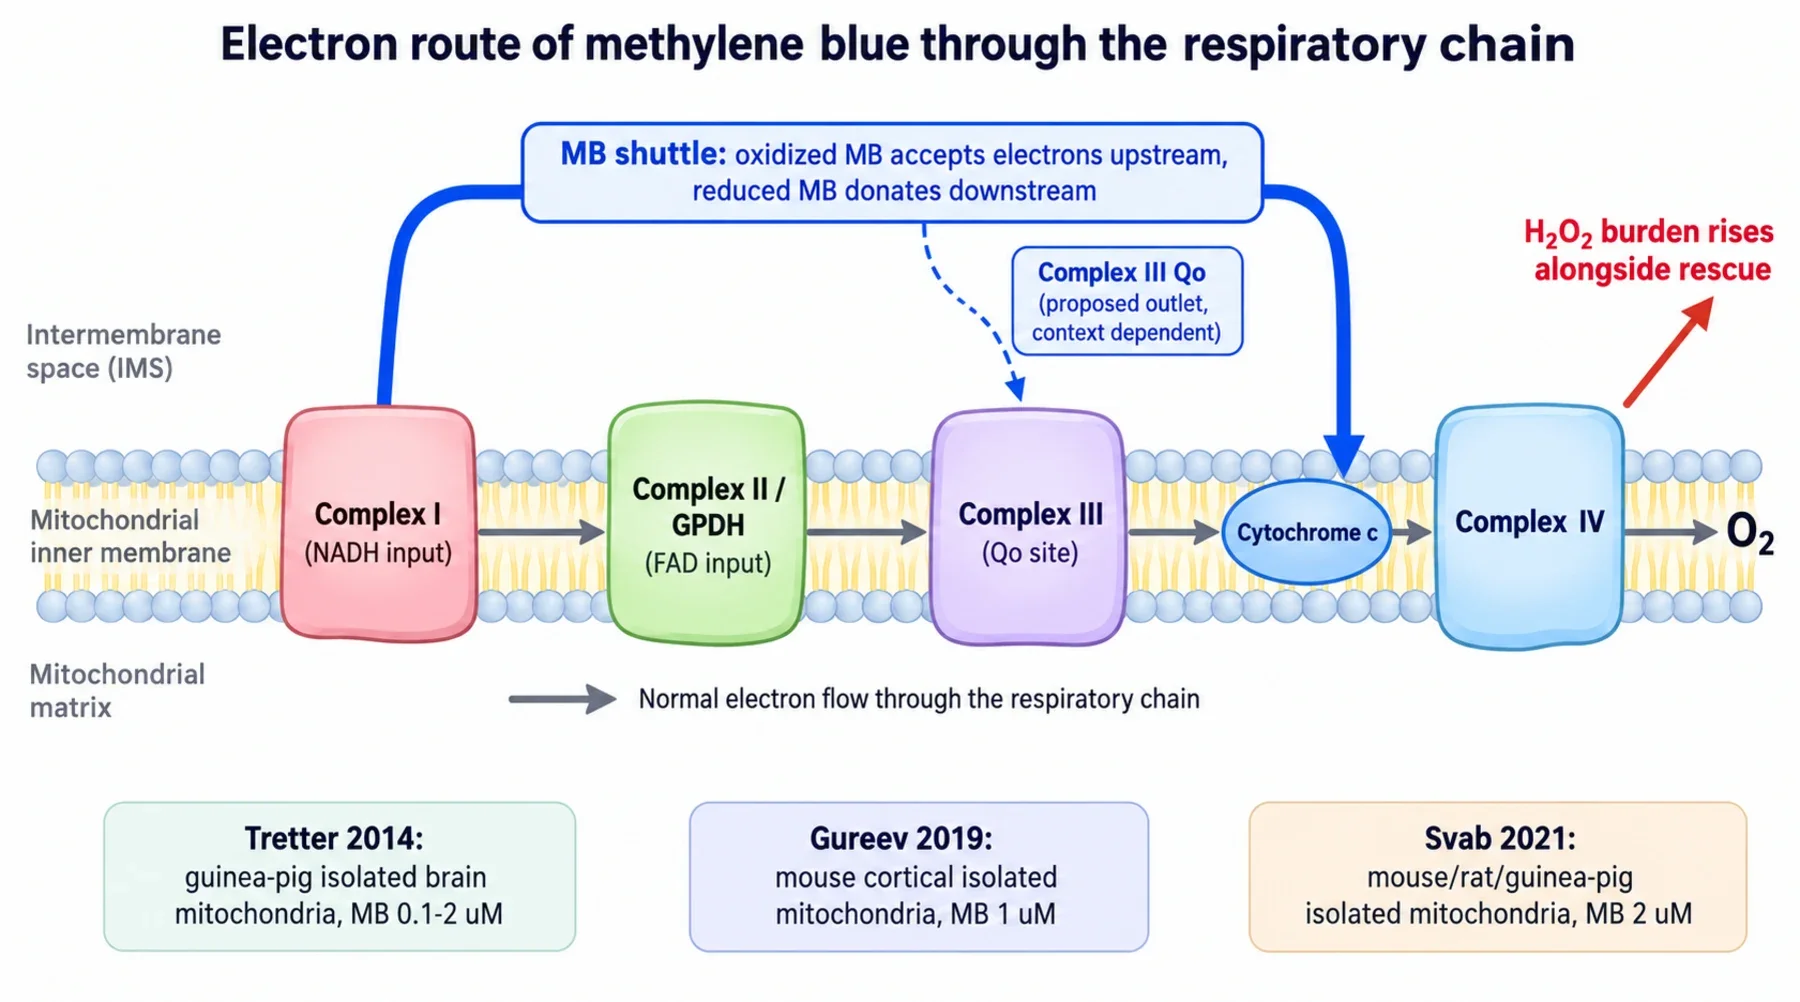
呼吸链是一条接力线路。电子从复合体 I(来自 NADH)或复合体 II 及相关黄素酶(来自琥珀酸等供体)进入,经过复合体 III 到达移动载体细胞色素 c,然后通过复合体 IV 传递给氧气。每一次交接都会将质子泵过内膜,而形成的梯度驱动 ATP 合成。任何一个站点被阻断,上游线路都会停止工作。
亚甲蓝作为一个平行的电子传递者插入其中。其氧化形式从上游载体获得电子,转变为无色的还原形式——隐色亚甲蓝,随后将这些电子传递到下游,并重新变回蓝色。这两种形式在氧化还原偶的介绍中有所描述,而更广泛的接力行为属于总体机制解释。目前未解决的问题是,这个电子传递者在哪里重新进入线路:是进入复合体 III 的醌醇结合位点(称为 Qo 位点),还是直接进入细胞色素 c。正如复合体 III 绕过分析详细说明的那样,哪条路径占主导取决于具体条件。
三项啮齿动物研究实际测量了什么
三项研究都使用了分离脑线粒体,也就是说,这些细胞器已经从细胞中取出,并悬浮于定义明确的缓冲液中。没有完整细胞,没有给药动物,没有人体受试者。浓度指的是细胞器周围浴液中的浓度,而不是人体口服剂量。保持这一背景,数字本身会清楚说明问题。
第一项研究在100 纳摩尔至 2 微摩尔的分离豚鼠脑线粒体中同时描绘了效果和代价。在健康线粒体中,染料提高了静息氧消耗,但 ADP 刺激的呼吸未改变,因此偶联 ATP 输出没有改善。在复合体 I 阻断条件下,2 微摩尔剂量将 ATP 合成从每分钟每毫克 46 纳摩尔恢复至 93 纳摩尔,而正常速率约为 1109。在复合体 III 阻断条件下,同样剂量将 ATP 从约 46 恢复至约 63,而正常水平约为 910。电压和钙摄取部分恢复。复合体 IV 的氰化物阻断无法被绕过,这说明有效电子出口位于正常工作的复合体 IV 上游。所有恢复都具有统计学意义但幅度较小:ATP 输出仅达到正常水平的个位数百分比。
第二项研究在约 1 微摩尔的鼠皮层线粒体中确认了复合体 I 绕过现象,并确定了复合体 III 的限制。鱼藤酮使呼吸从约每分钟每毫克 121 纳摩尔氧下降至不足 2 纳摩尔,而染料将其提升至约 21,约为正常水平的六分之一,同时膜电压几乎完全恢复。但在复合体 III 阻断后,1 至 5 微摩尔范围内呼吸和电压均未恢复,并且阻断抑制了染料驱动的过氧化物信号。作者提出,还原态染料会在复合体 III 的 Qo 位点传递电子:当该位点被占据时,电子传递者没有可交付的位置。
第三项研究在主要使用 2 微摩尔剂量的小鼠、大鼠和豚鼠脑线粒体中直接测试了这一争议,并发现复合体 III 阻断可以被跨越。当 Qo 位点抑制剂霉菌霉素使基础呼吸降低 88% 时,染料将氧消耗恢复至未阻断速率的约 62%。在直接测试中,即使复合体 III 被阻断,半微摩尔外源还原态细胞色素 c 仍可支持电子传递,说明存在从 NADH 经染料到细胞色素 c 再到复合体 IV 的路径。但恢复后的呼吸表现异常:加入 ADP 后氧消耗下降,而不是升高;抑制 ATP 合成反而刺激呼吸。电压仅部分重新极化。高氧消耗伴随反向偶联并不是正常的能量生成。
为什么实验室之间存在分歧,以及什么能够解释它
物种差异首先无法解释这一现象。第三组研究人员在三种啮齿动物中重复实验,并在所有动物中获得相同性质的绕过结果,包括此前报告不存在绕过现象的小鼠品系。真正不同的是浓度(1 对比 2 微摩尔)、抑制剂剂量、缓冲条件、分离方法,以及最重要的比较对象——能量状态:绕过现象在加入 ADP 前最明显,而这正是出现异常 ADP 响应的阶段。因此,更准确的图示应显示两个依赖条件的出口,一个位于 Qo 位点,一个位于细胞色素 c。电子传递者会在局部化学条件允许的位置传递电子。
过氧化物代价
代价方面与恢复方面同样一致。在豚鼠研究中,亚甲蓝在所有测试条件下都提高了过氧化物释放,包括静息状态、ATP 合成状态和化学损伤状态,以及所有三种底物条件。在 ATP 合成期间,1 微摩尔剂量使输出从约每分钟每毫克 148 皮摩尔升至超过 1500 皮摩尔,而即使 100 纳摩尔也使信号增加超过四倍。染料还使过氧化物清除速度降低约 2.6 倍,因此该信号反映了更快生成和更慢清除的共同作用。提出的化学机制是还原态染料直接还原氧而不产生可检测的超氧化物,但这仍属于解释,而不是已经证明的步骤。
小鼠研究使这一图景更加复杂,但也提供了有用信息。过氧化物随着剂量急剧增加,从接近 76 的基线升至 2 微摩尔时接近每分钟每毫克 2000 皮摩尔,但复合体 III 阻断抑制了染料驱动的部分。如果过氧化物仅来自还原态染料与氧气反应,那么阻断电子链不应产生如此大的影响。事实却并非如此,因此电子链参与其中。抗氧化剂与促氧化剂综述将这种双重性置于更广泛背景中,而氧消耗与 ATP 分析解释了为什么单独的氧数据永远不能确定能量结论。
恢复不等于修复
需要停止使用的表述是“亚甲蓝是否修复线粒体”。修复意味着持久性纠正:重建复合体、药物离开后仍持续的偶联恢复、完整细胞中的功能恢复,以及随后在活体中的功能改善。这三篇论文都没有展示这些结果。它们展示的是在新鲜分离的细胞器中,人工化学阻断期间发生的急性重新导流,其中 ATP 输出仅为正常水平的一小部分,并且偶联有时明显异常。鱼藤酮和抗霉素是实验室工具,并非衰老或人类线粒体疾病模型,而这里没有任何内容能够转化为健康人体更多能量的结论,因为这属于另一个独立的证据问题,需要其自身的人体研究文献。
三个界限可以保持任何生物黑客结论的严谨性。第一,浴液浓度不是剂量:分离细胞器周围的 0.1 至 2 微摩尔浓度无法说明哪种口服量能够在人类脑线粒体中产生该游离浓度,尤其因为染料会根据膜电压本身发生积累或释放。第二,氧气不是能量:染料可以通过循环和泄漏提高氧消耗,也可以通过有效磷酸化提高氧消耗,因此没有 ATP 和电压读数支持的呼吸测量不能用于能量声明。第三,收益和负担必须同时说明:任何省略伴随过氧化物升高的电压或 ATP 恢复描述,都会错误呈现实验结果。相关限定因素包括NAD 氧化还原平衡、剂量反应曲线形状以及检测方法指南。
一个实际注释:穿梭能力是特定分子的性质。去甲基化衍生物,例如 Azure B,也具有氧化还原活性,但行为不同,因此部分降解的溶液与完整染料进行的是不同实验。这也是为什么需要完整药典规格和公开批次文件,而不是仅进行金属筛查。光驱动化学反应也为光照应用增加了另一项注意事项,相关内容见红光组合。
这一狭义结论经过上述所有限制后仍然成立,并且值得保留:亚甲蓝可以在线粒体受损的分离体系中作为条件性电子传递者,在付出过氧化物代价的情况下部分维持电子流动。除此之外的所有结论——能量、寿命、修复——都需要这些研究从未设计用于提供的证据。