
Статья
Метиленовый синий в клеточной биологии: мишени, модели и измеряемые эффекты
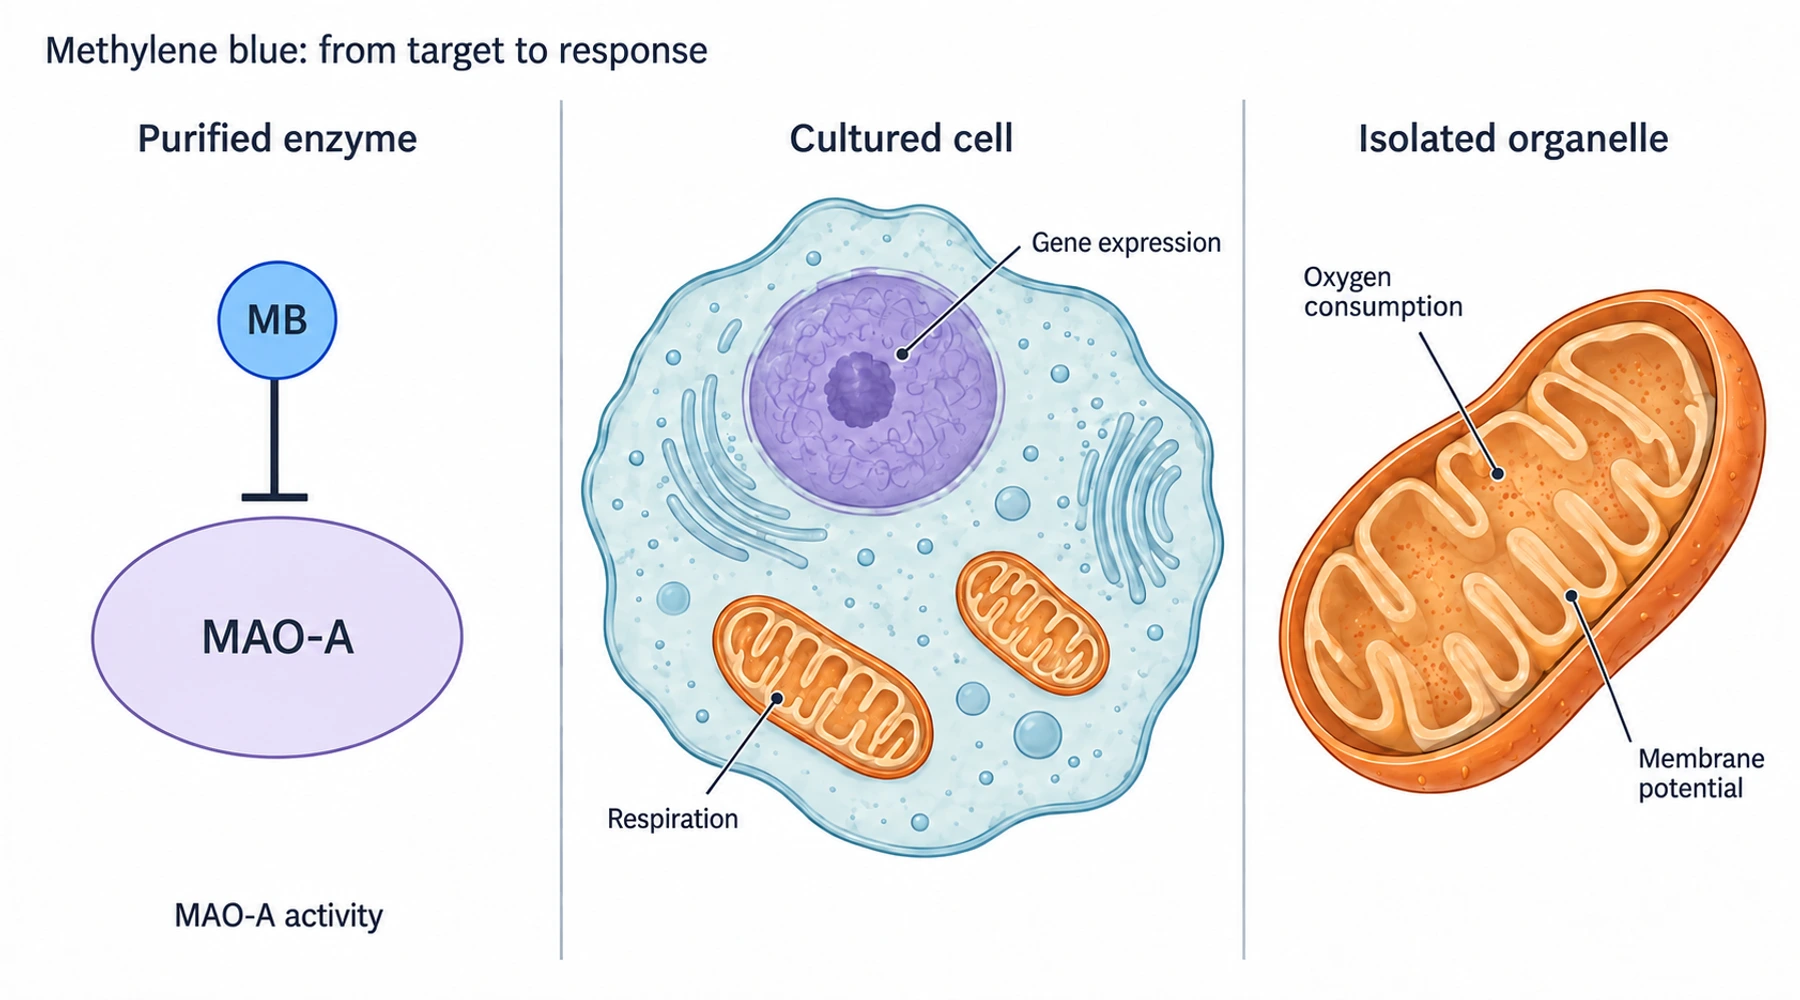
Метиленовый синий имеет несколько экспериментально подтверждённых молекулярных действий, но список названий путей скрывает, что именно установил каждый эксперимент. Ингибирование очищенного фермента, изменение потребления кислорода в культивируемых клетках и снижение белкового сигнала в мозге мыши — это разные наблюдения. Они требуют разных контролей и поддерживают разные выводы.
Этот исследовательский индекс организует эти наблюдения по процессу, модели и конечному параметру. Прилагаемая обложка представляет собой концептуальную иллюстрацию экспериментальных систем, а не определение молекулярной структуры или изображение микроскопии. Для базовой химии начните с окислительно-восстановительной химии и биологических механизмов.
Сначала ознакомьтесь с обозначениями доказательств
Биохимические доказательства проверяют определённый белок или реакцию вне целой клетки. Они могут установить ингибирование или перенос электронов в заданных условиях. Клеточные доказательства добавляют поглощение, метаболизм, компартментализацию и взаимодействующие пути. Доказательства зависимости проверяют, исчезает ли ответ при удалении предполагаемого компонента пути. Доказательства на уровне организма измеряют эффекты у животного с кровообращением, метаболизмом и множеством тканей.
Эти обозначения описывают поставленный вопрос, а не представляют собой единую систему ранжирования. Эксперимент с нокаутом может выявить необходимый компонент сигнального пути, не показывая, что метиленовый синий напрямую связывается с этим компонентом. Поведенческий результат у животного может установить фенотип, не определяя его молекулярную причину.
Связанная карта молекулярных мишеней
Читайте каждую строку горизонтально. Первый столбец содержит ссылку на обсуждение пути; ссылка на исследование указывает на экспериментальную основу. Это выбранная карта механистических опор, а не полный каталог всех описанных клеточных эффектов.
| Процесс или мишень | Экспериментальная система и тип доказательств | Измеряемый параметр и интерпретация |
|---|---|---|
| MAO и метаболизм нейромедиаторов | Очищенные рекомбинантные человеческие MAO-A и MAO-B; биохимическая кинетика | Ramsay и коллеги измеряли ингибирование ферментов. MAO-A была значительно более чувствительной; параметр настроения или уровень серотонина в мозге не измерялись. |
| NOS и сигнальный путь cGMP | Очищенная NO-синтаза, эндотелиальные клетки, изолированные сосуды; биохимические и функциональные анализы | Mayer и коллеги разделили образование цитруллина, продукцию cGMP и расслабление. Ингибирование NOS нельзя переименовывать в селективное ингибирование растворимой гуанилатциклазы. |
| Митохондриальный перенос электронов | Трансформированные клетки гиппокампа мыши HT-22 и биохимические реакции; клеточные и биохимические доказательства | Wen и коллеги измеряли потребление кислорода, закисление, ATP и окислительно-восстановительный перенос электронов. Эти параметры анализировались отдельно. |
| Обход комплекса III | Изолированные митохондрии мозга мыши с ингибиторами дыхания; эксперимент с органеллами | В исследовании комплекса III с антимицином было обнаружено отсутствие восстановления дыхания и мембранного потенциала после этой блокировки, несмотря на частичное восстановление после ингибирования комплекса I. |
| Nrf2 и биогенез митохондрий | Эмбриональные фибробласты мыши дикого типа и с нокаутом Nrf2; генетическая зависимость | Stack и коллеги измеряли транскрипты антиоксидантного ответа. Отсутствие индукции в клетках с нокаутом подтверждает зависимость от Nrf2, а не прямое связывание с Nrf2. |
| Аутофагия и сигнальный путь mTOR | Клетки яичника китайского хомячка, экспрессирующие человеческий тау; репортёрные и эксперименты с нокдауном | Congdon и коллеги исследовали репортёры LC3, фосфорилирование киназ и тау. Нокдаун BECN1 устранил наблюдаемый ответ снижения тау. |
| Обработка тау и удаление белков | Очищенный анализ Hsp70 и клетки HeLa, экспрессирующие человеческий тау; биохимические и клеточные доказательства | Jinwal и коллеги связали ингибирование ATPase с протеасом-зависимым снижением тау. Это отличается от предотвращения сборки очищенных фибрилл тау. |
| Образование конденсатов тау | Реконструированные капли рекомбинантного тау; отдельный анализ цитотоксичности SH-SY5Y | Исследование фазового разделения 2023 года измеряло образование капель и гелеобразование in vitro, затем оценивало жизнеспособность клеток с помощью MTT после воздействия инкубированных форм тау. Клеточный анализ не измерял образование внутриклеточных конденсатов. |
Скачиваемая карта молекулярных мишеней сохраняет ссылки на первичные исследования, обозначения доказательств и ключевые экспериментальные условия в многоразовом текстовом документе.
Что различают первичные эксперименты
Ингибирование ферментов имеет контекст анализа
Исследование очищенного человеческого фермента сообщило константу ингибирования MAO-A, Ki = 27 ± 3 нМ, используя анализ сильного связывания. Его IC50 для MAO-A составил 164 ± 8 нМ в указанных условиях анализа. Ki и IC50 не являются взаимозаменяемыми: последний зависит от условий фермента и субстрата, используемых для измерения половинного ингибирования. Ни одно из этих чисел не является дозой для человека или прогнозируемой концентрацией в тканях.
Сравнение NOS также является информативным. Очищенная NO-синтаза потеряла всю измеренную активность образования цитруллина при 30 μM метиленового синего. В той же статье гуанилатциклаза, стимулированная S-нитрозоглутатионом, требовала приблизительно 60 μM для половинного ингибирования. Таким образом, снижение клеточного cGMP само по себе не указывает на гуанилатциклазу как место действия. Оно может отражать снижение образования NO, который её активирует.
Дыхание не является синонимом производства ATP
В исследовании HT-22 исследователи использовали олигомицин, FCCP и ротенон для изучения поведения дыхания. Они также независимо измеряли ATP. Их сравнительный агент FCCP увеличивал потребление кислорода при снижении клеточного ATP, напрямую показывая, почему график потребления кислорода не может сам по себе ответить на вопрос об ATP. Специализированное руководство по потреблению кислорода и ATP продолжает это различие.
Более поздняя работа с изолированными митохондриями мозга мыши использовала субстраты, включая пируват и малат. При 1 μM метиленовый синий частично восстанавливал дыхание, ингибированное ротеноном, но мало влиял после антимициновой блокировки. Этот результат ограничивает универсальное утверждение, что краситель всегда обходит оба комплекса I и III. Вид, подготовка митохондрий, субстраты, ингибиторы и условия анализа должны указываться рядом с любой предлагаемой схемой переноса электронов.
Ответ гена не является доказательством прямого связывания с мишенью
В эксперименте с Nrf2 0,1, 1 и 10 μM метиленового синего увеличивали транскрипт HO1 в эмбриональных фибробластах мыши дикого типа, тогда как ответ отсутствовал в клетках с нокаутом Nrf2. Это генетическое сравнение даёт больше информации о зависимости от пути, чем простое измерение экспрессии в обработанных клетках.
Оно всё ещё не определяет начальное молекулярное событие. Транскрипция, зависимая от Nrf2, биогенез митохондрий, изменение баланса NAD+/NADH и сигнальный путь AMPK должны оставаться отдельными пунктами, пока эксперимент не свяжет их. Повышение экспрессии одного митохондриального гена не устанавливает, что клетки произвели больше функциональных митохондрий.
Удаление белков происходит несколькими путями
В исследовании аутофагии клетки CHO, экспрессирующие тау, подвергали воздействию 0,01 μM метиленового синего в течение шести часов и сравнивали с контролем. Тандемный красный/зелёный репортёр LC3 помогал отличить ранние везикулы от закисленных аутофаголизосом; бефиломицин предоставлял противоположное условие, нарушающее поток. Нокдаун BECN1 проверял, участвует ли механизм аутофагии в снижении тау. Эти эксперименты выходят за пределы простого подсчёта LC3-положительных точек, которые могут накапливаться как при увеличении образования, так и при замедлении удаления.
В отличие от этого, исследование Hsp70 изучало активность ATPase и протеасом-зависимое удаление тау в другой клеточной системе. Эксперименты с конденсатами 2023 года задавали другой вопрос: как молекулы тау образуют капли и изменяют их материальные свойства. Общий тау, фосфорилированный тау, нерастворимые фибриллы и гелеобразные конденсаты являются разными конечными параметрами. Объединение их в одно утверждение об «анти-тау» стирает исследуемый механизм.
Выбирайте следующий эксперимент по отсутствующему различию
Для новой статьи извлеките точную химическую идентичность, концентрацию, длительность воздействия, растворитель, условия освещения, модель, контроль и конечный параметр перед интерпретацией схемы пути. Соотносите анализ с утверждением: дыхание с потоком дыхания, ATP с доступностью энергии, кинетику ферментов с ингибированием, а генетические изменения с зависимостью от пути.
Руководство по дозозависимому ответу рассматривает ответы, которые меняют направление в зависимости от концентрации. Руководство по антиоксидантным и прооксидантным свойствам разделяет окислительно-восстановительное циклирование и универсальную маркировку как антиоксиданта. Проникновение в клетки и мембранное распределение объясняет, почему номинальная концентрация в среде не является автоматически внутриклеточным воздействием; исследование Azure B объясняет, почему родственные красители не следует считать взаимозаменяемыми.
Более широкая литература также охватывает активность каспаз, ферроптоз, воспалительную сигнализацию и клеточное старение. Это полезные направления, когда конечным параметром являются гибель клеток, цитокиновая сигнализация или устойчивое прекращение роста. Они не являются дополнительным доказательством того, что каждое молекулярное действие происходит в одной и той же клетке при одной и той же концентрации. Эта карта устанавливает пути через экспериментальные доказательства; она не превращает эти эксперименты в клинические преимущества.