
Artigo
Como o azul de metileno entra nas células: redução, reoxidação e partição na membrana
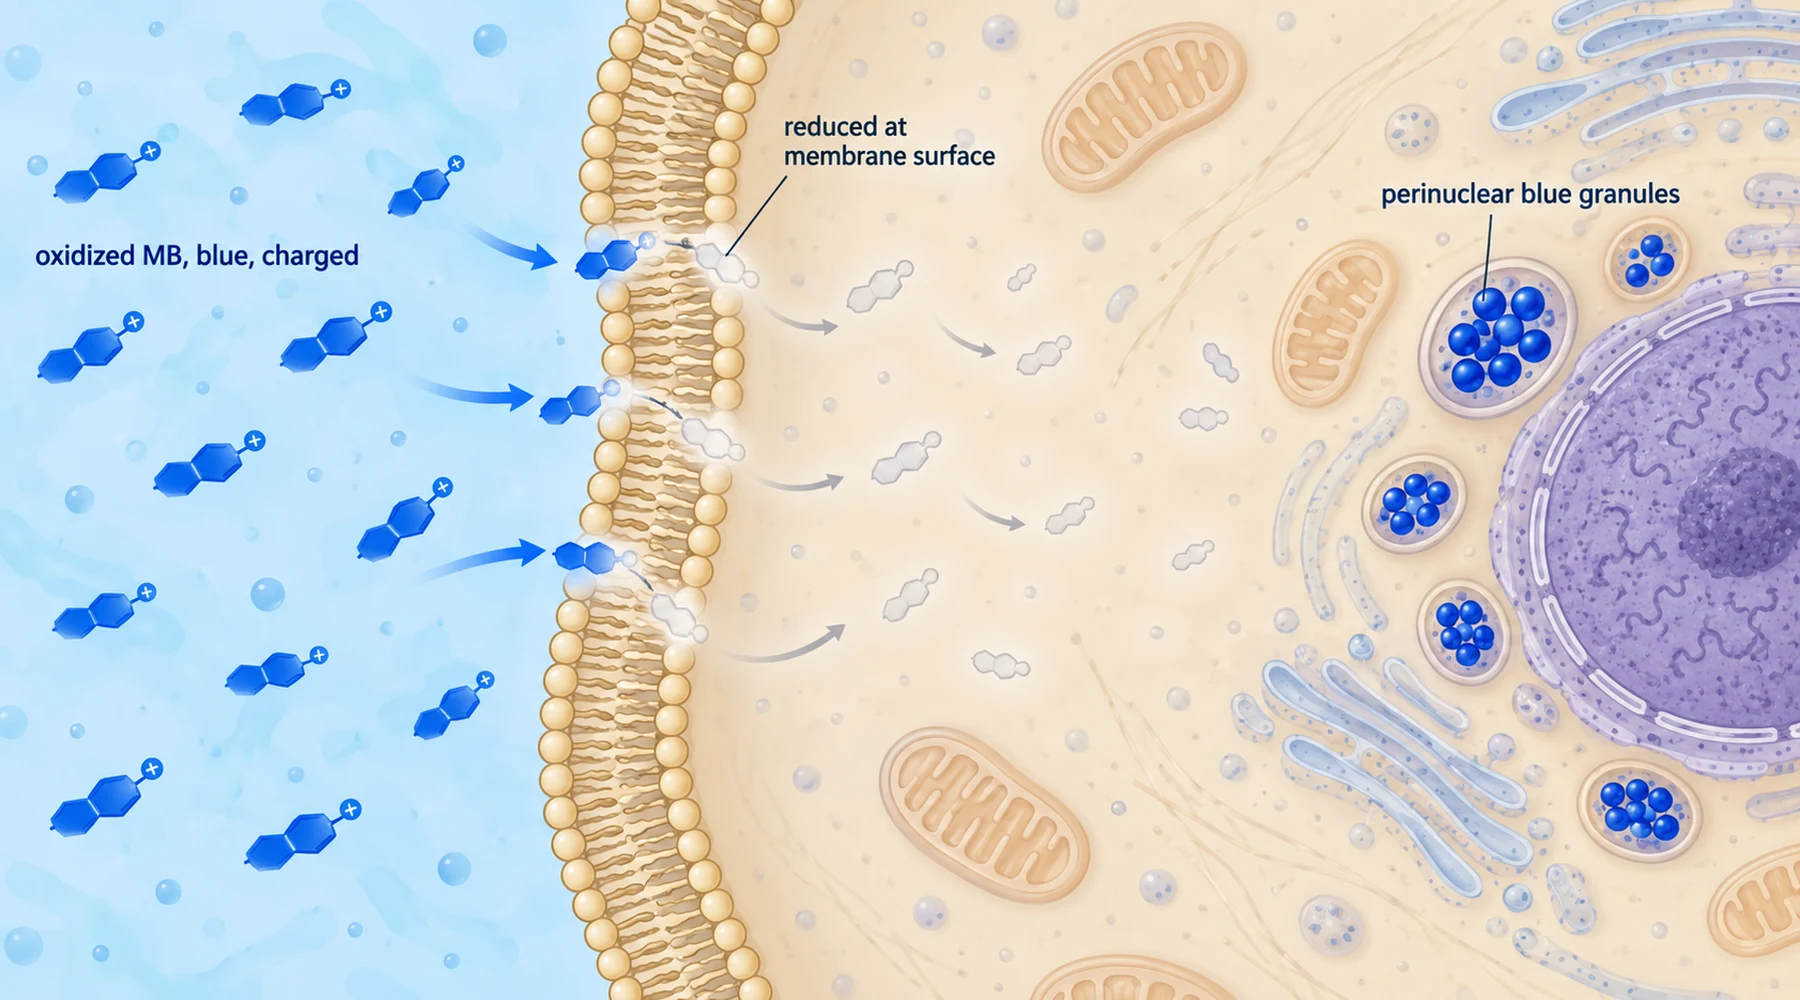
Observe uma cultura de células endoteliais a captar azul de metileno e a interpretação mais óbvia é também a errada. O meio perde a cor azul, as células ganham grânulos azuis, por isso seria natural concluir que o corante atravessou a membrana enquanto molécula azul. As experiências mostram o contrário. A forma azul praticamente não atravessa. O que atravessa é a forma incolor, e o azul que se vê no interior é produzido já dentro da célula, depois da entrada.
Esta inversão é importante porque determina o que a coloração pode e não pode revelar. Os grânulos azuis indicam corante oxidado que foi reoxidado e retido em organelos. Não indicam a quantidade total de corante na célula, não indicam a fração reduzida e não medem o efeito biológico. Para perceber porquê, siga os três passos: redução à superfície, difusão da forma reduzida, reoxidação e retenção no interior.
As duas formas comportam-se como moléculas diferentes
O azul de metileno oxidado é um sistema de anéis plano e com carga positiva. Dissolve-se em água, absorve fortemente luz na região dos 600 a 700 nanometers e apresenta uma cor azul. A carga é o ponto essencial. Uma molécula carregada e hidrofílica não atravessa facilmente uma membrana lipídica, pelo que a formulação cuidadosa usada na literatura é relativamente impermeável à membrana, e não impermeável.
O azul de metileno reduzido, chamado leucoazul de metileno, é incolor, não tem carga e é lipossolúvel. Remova-se a carga e a membrana deixa de funcionar como uma barreira. A molécula reduzida difunde-se facilmente através dela e, uma vez no interior de um compartimento mais oxidante, pode voltar a perder eletrões e regressar à forma azul, carregada e retida. A química redox do corante é, por isso, também o seu mecanismo de transporte. Alterar o número de eletrões significa alterar a permeabilidade.
Os eletrões necessários ao primeiro passo vêm da própria célula. As células de mamíferos realizam transporte de eletrões através da membrana plasmática, deslocando equivalentes redutores de dadores intracelulares para aceitadores na superfície. Esta atividade transmembranar da membrana plasmática é uma função celular normal, presente na maioria dos tipos celulares, e a redutase da superfície endotelial que atua sobre corantes de tiazina comporta-se como outras num aspeto revelador: continua a funcionar na presença de cianeto e azida em doses que bloqueiam os passos posteriores. Esta separação é o ponto central de toda a explicação.
A partição veio primeiro e quase explicou a captação
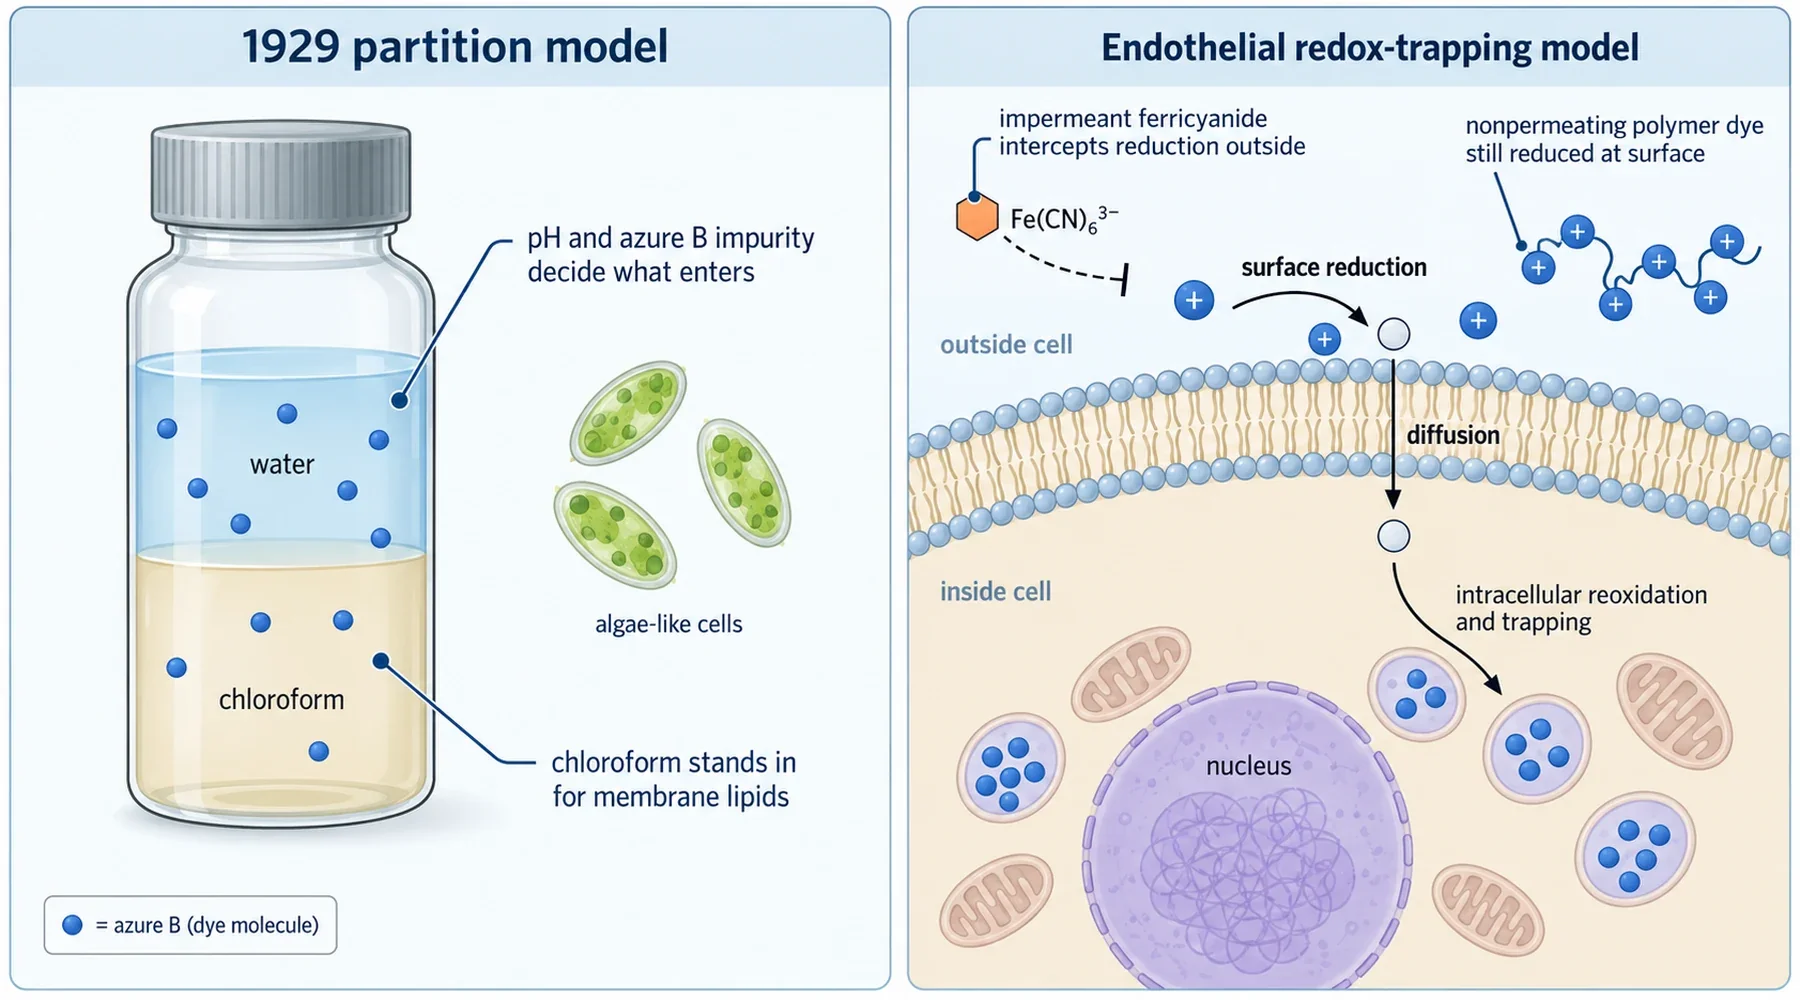
Em 1929, Marian Irwin, no Rockefeller Institute, colocou uma questão mais simples. Talvez a entrada do corante seja apenas uma questão de partição entre a água e as camadas lipídicas da célula, e uma camada de clorofórmio possa representar essas camadas lipídicas numa experiência de bancada. Nos seus estudos espectrofotométricos de penetração, agitou soluções aquosas de corante com clorofórmio e comparou o que passava para a fase orgânica com o que entrava em células vivas de algas.
Duas conclusões desse trabalho continuam a merecer atenção. Primeiro, as soluções comerciais de azul de metileno continham trimetiltionina, atualmente chamada azure B, e a impureza penetrava mais depressa do que o próprio azul de metileno, sobretudo a pH alcalino, quando predomina a forma de base livre lipossolúvel. Parte da aparente entrada de azul de metileno correspondia, na realidade, à entrada seletiva de azure B. Segundo, o pH determinava o resultado ao determinar o estado de ionização, e as células lesionadas admitiam muito mais corante do que as intactas. Os coeficientes de partição e o estado de carga determinavam o que o sistema artificial e a célula viva absorviam, e a semelhança entre ambos apoiava a ideia da existência de camadas não aquosas na fronteira celular.
O modelo foi perspicaz quanto ao papel dos lípidos e da ionização, mas não conseguia distinguir entre um corante que se distribui como a própria molécula e um corante que é quimicamente convertido à superfície, atravessa disfarçado e volta a ser convertido no interior. Essa distinção exigia uma experiência diferente, que surgiu setenta anos mais tarde no endotélio pulmonar.
Redução no exterior, retenção no interior
Merker e os seus colegas trabalharam com células endoteliais de artéria pulmonar bovina em cultura e propuseram uma sequência de três passos: o corante oxidado é reduzido na superfície celular para a sua forma incolor e lipofílica, a forma reduzida difunde-se para o interior e a reoxidação intracelular regenera a forma oxidada relativamente impermeável à membrana, que se acumula. O seu estudo da captação endotelial de tiazinas testou depois esta sequência tentando interrompê-la em pontos específicos.
A primeira ferramenta foi o ferricianeto, um aceitador de eletrões que não consegue entrar na célula. Quando as enzimas de superfície reduzem o corante azul à sua forma incolor no exterior da célula, o ferricianeto pode retirar-lhe novamente esses eletrões, regenerando o corante azul no meio antes de este conseguir atravessar. Enquanto o ferricianeto esteve presente em excesso (10 micromolar de corante para 50 a 500 micromolar de ferricianeto), a captação do corante praticamente parou, e só depois de o ferricianeto ser consumido é que a captação retomou a sua velocidade normal. A cinética contou a mesma história de outra forma. O ferricianeto desapareceu a uma velocidade aproximadamente constante, compatível com um fluxo contínuo de redução à superfície que alimentava um mediador reciclável, enquanto o corante extracelular desapareceu exponencialmente à medida que o seu reservatório se esgotava. Um fluxo constante combinado com um reservatório em diminuição significa que o sinal do ferricianeto indica redução contínua, e não moléculas de corante a abandonar a solução.
A segunda ferramenta eliminou por completo o passo de atravessamento. O grupo ligou covalentemente toluidine blue O, um parente próximo das tiazinas, a uma grande cadeia de poliacrilamida demasiado volumosa para entrar na célula em qualquer dos estados de oxidação. As células continuaram a reduzir o corante ligado. A redução, portanto, não exige acesso intracelular. O mecanismo está exposto à superfície ou eletricamente acoplado a ela.
Seguiu-se então a separação que dá título ao artigo científico. Cianeto e azida a 2 millimolar suprimiram fortemente a acumulação do corante e, ao microscópio, as inclusões azul-escuras e púrpuras que normalmente rodeavam o núcleo praticamente desapareceram. No entanto, nenhum dos inibidores abrandou a redução extracelular: o ciclo do ferricianeto continuou sem diminuição e o corante polimérico não permeável continuou a ser reduzido. O bloqueio ocorria a jusante. O cianeto e a azida estavam a impedir a reoxidação e a sequestração intracelulares, e não a redução à superfície. Os controlos de viabilidade sustentaram esta interpretação, uma vez que as células conservaram a sua enzima marcadora citosólica, a lactato desidrogenase, durante estes tratamentos, pelo que a perda de captação não resultava simplesmente de toxicidade ou rutura da membrana.
Uma ressalva do artigo continua válida. As inclusões azuis situavam-se em redor do núcleo, mas não no interior deste, o que é compatível com oxidação dentro de organelos subcelulares, mas o estudo não identificou quais eram esses organelos. Padrões semelhantes noutros tipos celulares tinham sido descritos como lisossomais com base em evidência limitada. Considere estabelecida a retenção e provisória a localização exata. Os leitores que pretendam acompanhar o destino seguinte dos eletrões podem continuar para o transporte mitocondrial de eletrões e processamento redox e para a visão mais ampla da absorção e distribuição por via de administração.
A coloração não é exposição
Um terceiro estudo mostra o que acontece quando esta lógica de captação é combinada com uma leitura biológica. Scott e os seus colegas verificaram que a metil beta ciclodextrina, um açúcar em forma de toro anelar, se liga diretamente ao azul de metileno, com uma constante de associação de cerca de 310 per molar para o complexo de inclusão, em comparação com cerca de 5846 per molar para a dimerização do corante. Em fibroblastos L929, esta ligação bloqueou tanto a coloração celular como a estimulação da captação de glucose: a pré-incubação com a ciclodextrina impediu a coloração azul, e a sua adição posterior acelerou a perda de coloração. À medida que o sinal ótico azul desaparecia das células, o transporte de glucose ativado diminuía em estreito paralelo.
Os autores interpretaram esta correlação como favorecendo uma interação direta entre o corante e uma proteína da via de ativação do transportador de glucose, em vez de um mecanismo prolongado de stress oxidativo. Esta inferência é razoável, mas tem limites. A experiência não identifica a proteína, não demonstra ligação ao próprio transportador e a correlação entre a perda de coloração e a perda do efeito não permite excluir todas as vias mediadas por mecanismos redox.
A lição duradoura diz respeito à medição. A coloração ótica indica corante visível, oxidado e associado à célula. Ignora por completo a fração reduzida e incolor, pelo que uma célula pouco corada pode ainda conter equivalentes de corante, enquanto uma célula intensamente corada indica corante oxidado retido, e não a exposição total do tecido nem a magnitude do efeito. A mesma precaução aplica-se a uma escala maior: comparar a coloração entre tipos celulares ou tratar uma secção de tecido escura como prova de maior exposição repete o erro inicial observado na cultura. A captação é um ciclo de redução, difusão e reoxidação, e qualquer observação isolada da forma azul mostra apenas uma parte desse processo. As consequências práticas para a coloração e o manuseamento em laboratório e para a interpretação de alegações sobre dose e exposição decorrem diretamente daqui. :::