
Artykuł
Doświadczenia, które powiązały błękit metylenowy z oddychaniem komórkowym
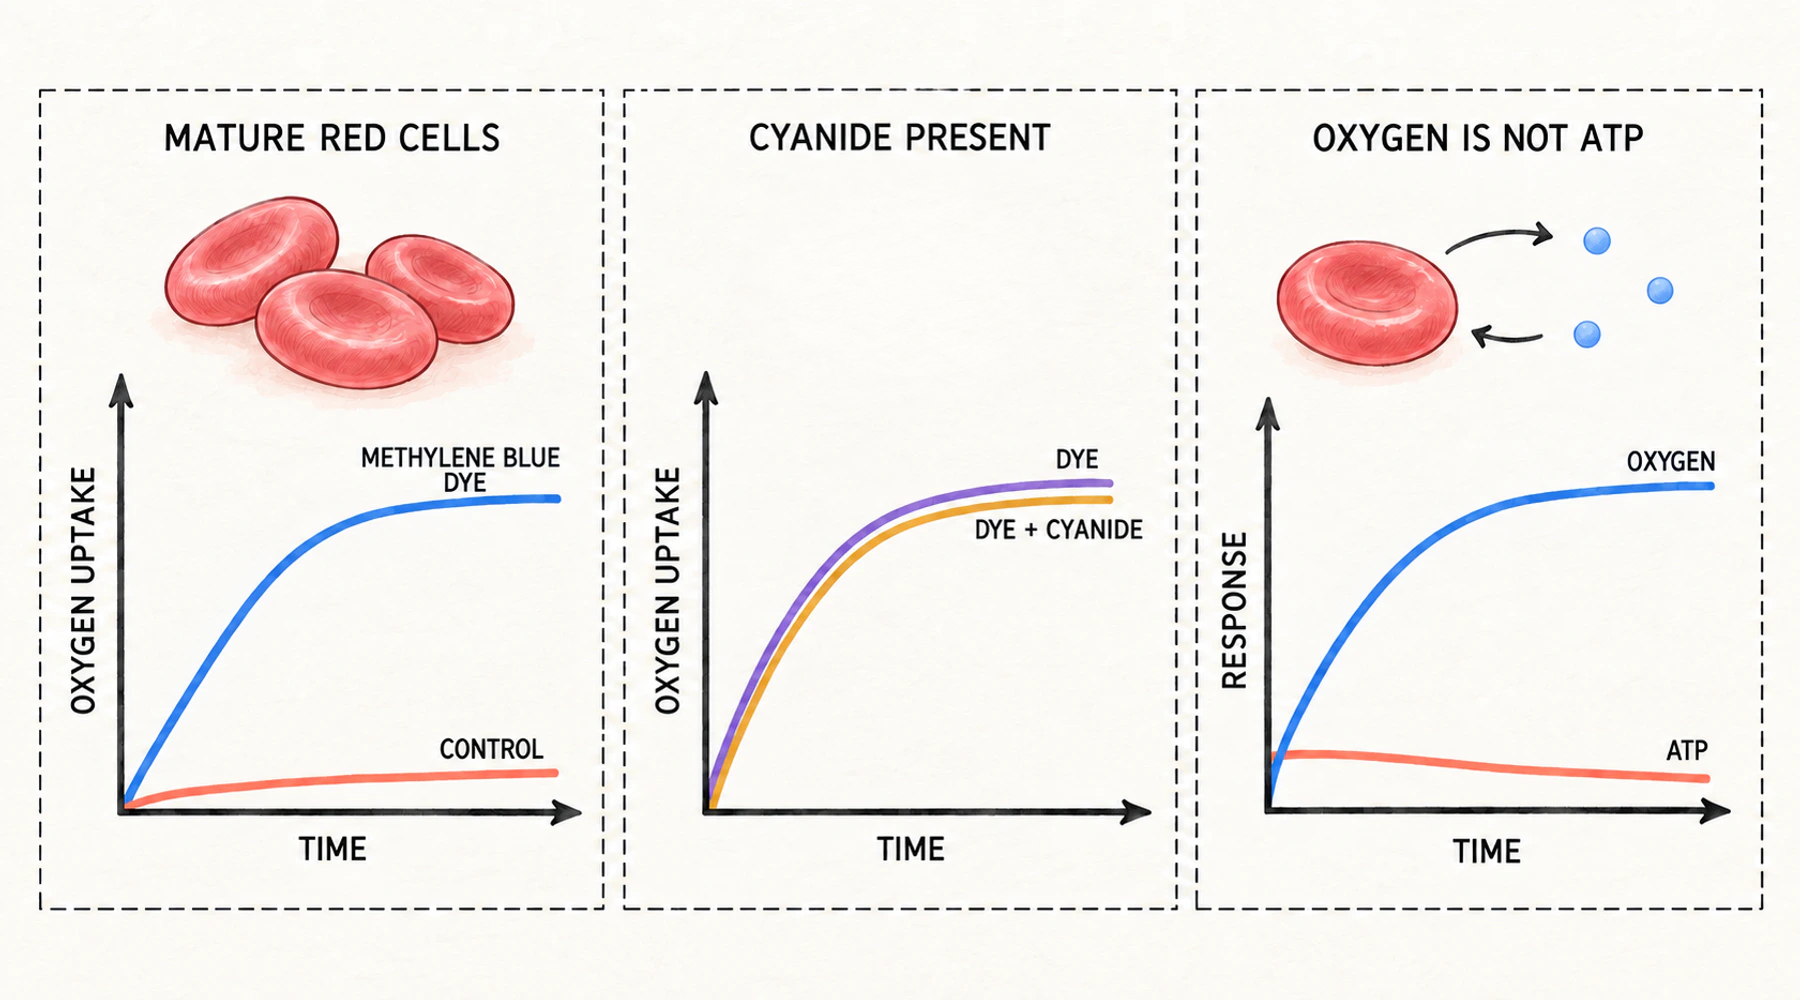
Odwłókniona krew ludzka, ogrzewana do 37 °C przez trzy godziny, zużywa około dwóch procent zawartego w niej tlenu. Jeśli przed inkubacją doda się niewielką ilość błękitu metylenowego, ta sama krew zużywa około sześćdziesięciu pięciu procent. W samych komórkach nic się nie zmieniło. Zmienił się tylko roztwór.
Ta liczba pochodzi z pracy George’a Harropa i E. S. Guzmana Barrona z Johns Hopkins z 1928 roku i stanowi źródło często powtarzanego stwierdzenia, że błękit metylenowy poprawia oddychanie komórkowe. To stwierdzenie nie jest fałszywe, ale ma węższy zakres, niż mogłoby się wydawać.
Co właściwie mierzy liczba w tabeli
Punktem końcowym było pobieranie tlenu, określane za pomocą analizy gazowej. Harrop i Barron filtrowali świeżo pobraną krew przez watę w temperaturze 10 °C, aby usunąć białe krwinki, nasycali próbkę tlenem, dzielili ją, dodawali barwnik do jednej części i analizowali obie po inkubacji. Liczba leukocytów rzadko przekraczała około tysiąca na milimetr sześcienny. Zużycie tlenu podawano jako odsetek początkowej zawartości tlenu w próbce, który zniknął.
Mierzyli również dwutlenek węgla, ale tutaj metoda stawiała opór. W pierwszej godzinie inkubacji odwłókniona krew uwalniała do dwóch milimoli dwutlenku węgla na 100 mL z przyczyn niezwiązanych z badaną reakcją, dlatego ilorazy oddechowe uzyskane dla pełnej krwi nie nadawały się do wykorzystania. Tylko przemyte komórki w płynie Locke’a dawały wyniki możliwe do interpretacji, skupione w zakresie od 0.73 do 0.80 zarówno z barwnikiem, jak i bez niego.
To nie jest błahy szczegół. „Oddychanie” w tych pracach oznacza wymianę gazową w zamkniętym naczyniu. Różnicę między zużyciem tlenu a wytwarzaniem użytecznej energii omówiono osobno w artykule o tym, co zużycie tlenu mówi, a czego nie mówi o ATP.
Barwnik działał najsilniej tam, gdzie komórki oddychały najmniej
Dojrzałe erytrocyty ssaków niemal nie wykazują mierzalnego zużycia tlenu. Erytrocyty ptaków, które mają jądra komórkowe, zużywają go. Harrop i Barron badali oba typy, a kontrast między nimi stanowi podstawę ich argumentacji.
W próbkach ssaków barwnik powodował wzrost od dwudziestu do pięćdziesięciu razy. We krwi gęsi, której komórki już oddychały, nigdy nie zwiększał tempa więcej niż dwukrotnie. Im wyższe było wyjściowe tempo oddychania, tym mniejszy dodatkowy efekt mógł wywołać barwnik.
Ta sama zależność pojawia się w obrębie jednego gatunku. Próbka ludzka od pacjenta z czerwienicą prawdziwą, zawierająca niedojrzałe komórki, zużywała 11.3 procent swojego tlenu bez barwnika, wobec 2.8 procent w przypadku przemytych komórek od zdrowego dawcy. Barwnik zwiększał tę wartość tylko do 63.4 procent: było to sześciokrotne przyspieszenie, podczas gdy w prawidłowych komórkach tempo rosło niemal trzydziestokrotnie. Barwnik sprawiał, że dojrzałe komórki zachowywały się bardziej jak niedojrzałe — tak właśnie opisywali jego działanie autorzy.
Cyjanek powinien był to zatrzymać
Wiedziano, że cyjanek zatrzymuje utlenianie komórkowe. Mimo to Harrop i Barron dodali go razem z barwnikiem.
Wyniki dla krwi wołowej są reprezentatywne. Bez żadnych dodatków zawartość tlenu spadła w ciągu trzech godzin z 22.61 do 22.03 procent objętościowych. Z błękitem metylenowym spadła do 12.84. Z błękitem metylenowym i cyjankiem potasu o stężeniu jednej pięciotysięcznej mola na litr spadła do 12.74. Działanie barwnika pozostało zasadniczo niezmienione.
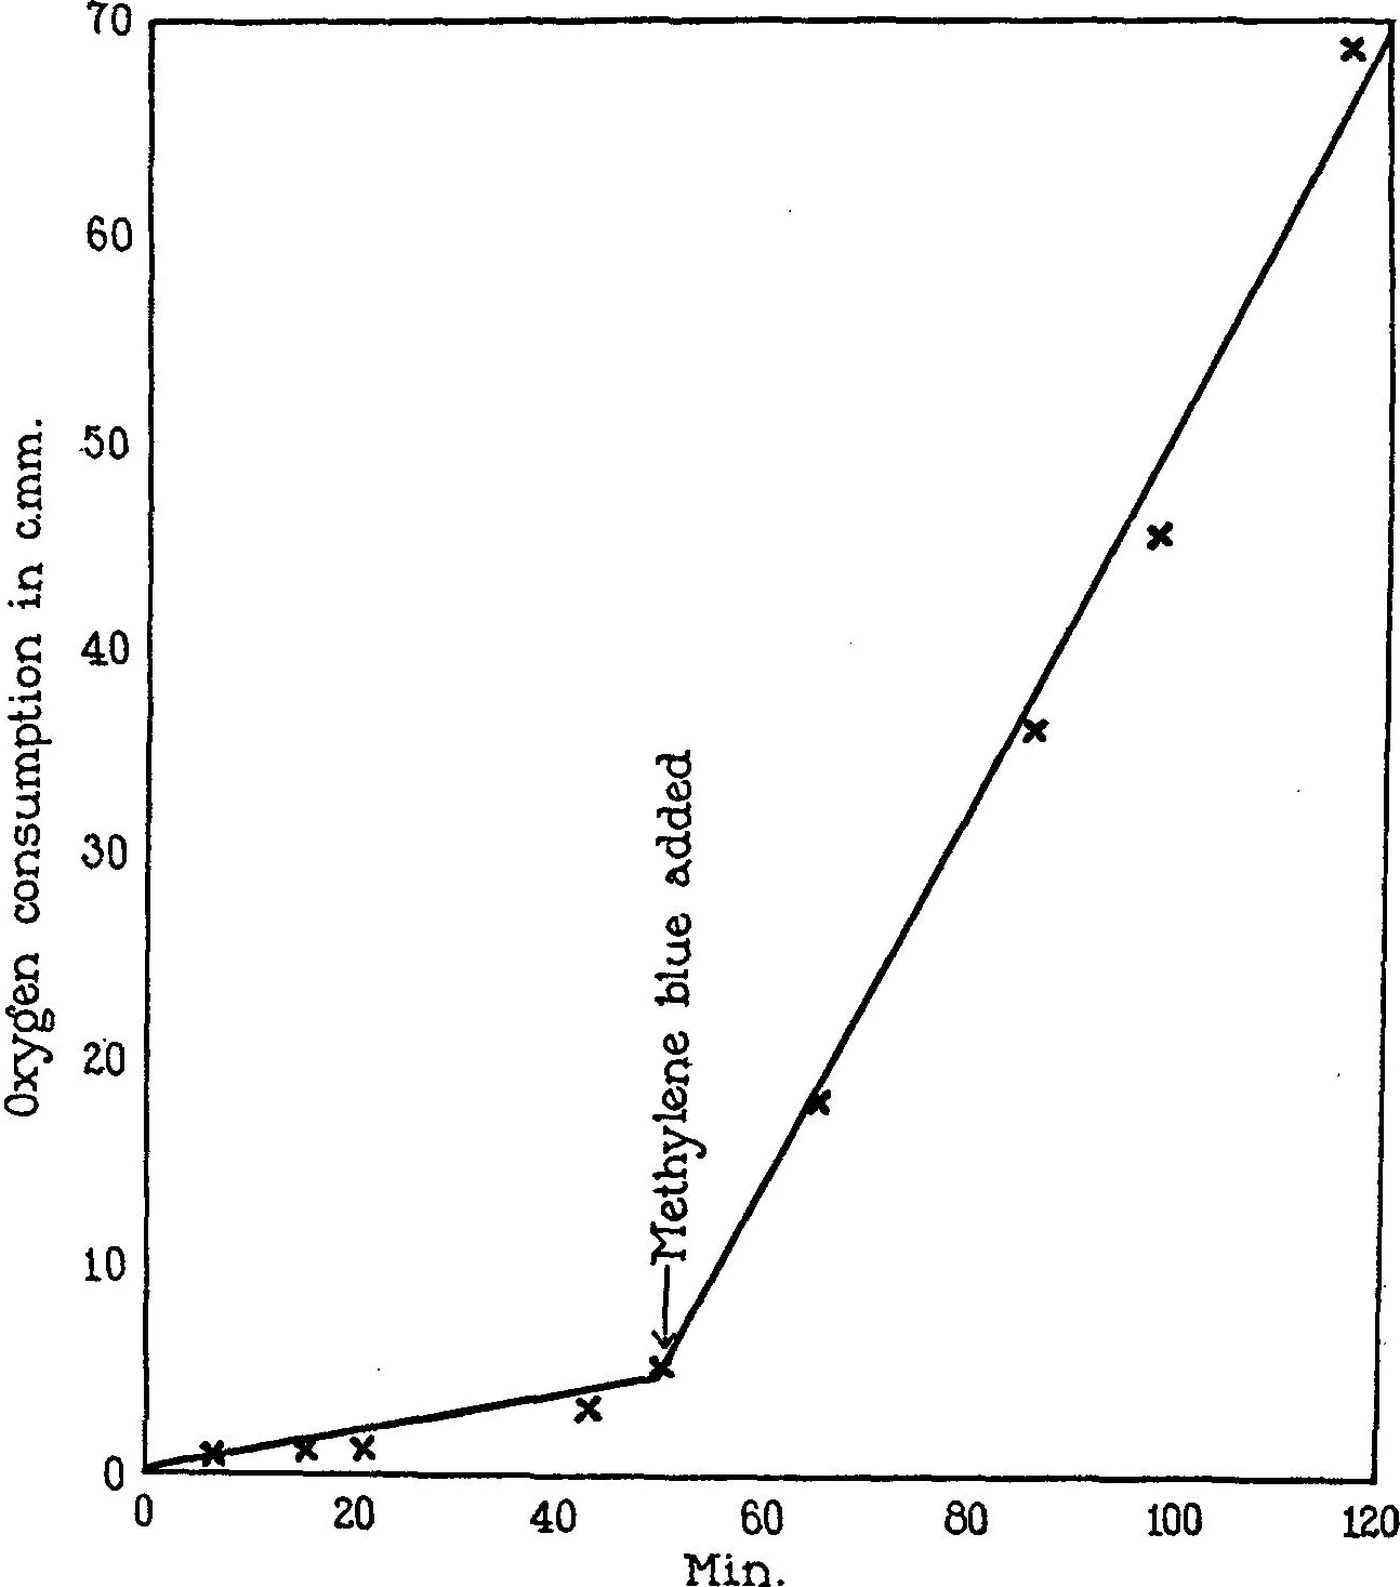
Rycina: ciągły zapis mikrorespirometryczny ludzkich erytrocytów. Strzałka oznacza dodanie błękitu metylenowego. Przed nim krzywa jest niemal płaska; potem stale się wznosi. Przedruk z pracy Harropa i Barrona, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Wyciągnęli wniosek, że barwnik działał jako nośnik tlenu, „dostarczając substancję, która zniknęła z dojrzałych, bezjądrzastych erytrocytów ssaków”. Dwa lata później Michaelis i Salomon z Instytutu Rockefellera nadali temu sporowi jego trwałą postać. Albo działanie barwnika było „przypadkową właściwością barwnika”, albo barwnik był „modelem jakiejś nieznanej substancji w organizmach”. Ten dylemat nie został rozstrzygnięty. Zmieniło się natomiast to, że komórki można dziś opisać znacznie dokładniej.
Wyciąg z wątroby działał tak samo
Michaelis i Salomon wykazali, że wyciągi z narządów przygotowane z użyciem zimnej wody wywołują taką samą stymulację. Najsilniej działał wyciąg z wątroby szczura, następnie z nerki, śledziony i jądra. Mózg, mięśnie i surowica krwi miały niewielki wpływ albo nie miały go wcale.
Następnie zbadali działanie wyciągu w obecności tlenku węgla. Oddychanie wywołane wyciągiem lub barwnikiem nie zmieniało się w mieszaninie zawierającej 98 procent tlenku węgla i 2 procent tlenu. Ta sama mieszanina gazów hamowała oddychanie drożdży oraz jądrzastych erytrocytów ptactwa domowego o około 60 do 80 procent, zgodnie z opisem Warburga dotyczącym enzymu oddechowego wrażliwego na tlenek węgla. Niezidentyfikowana substancja tkankowa nie była więc enzymem Warburga.
Po drodze odrzucono kilka przypuszczeń co do jej tożsamości. Zredukowany glutation i cysteina powodowały jedynie zużycie tlenu niezbędne do ich własnego utlenienia. Koenzym Hardena i Younga wykluczono, ponieważ mięśnie zawierają go najwięcej, a wykazywały niemal najsłabszy efekt. Cytochrom Keilina, nazwany kilka lat wcześniej, prowadził do tej samej sprzeczności. Własną sugestię, że aktywna substancja pochodzi z jądra komórkowego, autorzy określili jako zaledwie sugestię.
Efekt występował pod pewnymi warunkami
Komórki musiały pozostawać nienaruszone. Hemoliza wywołana wodą destylowaną lub wielokrotnym zamrażaniem znosiła odpowiedź zarówno na barwnik, jak i na wyciąg, a częściowa hemoliza zmniejszała ją proporcjonalnie.
Konieczny był również cukier. Glukoza, fruktoza i sacharoza podtrzymywały oddychanie wywołane barwnikiem; mannitol nie. Bez cukru oddychanie w ogóle nie zachodziło, a barwnik najwyraźniej uszkadzał przy tym komórki, więc glukoza dodana po jednej lub dwóch godzinach nie przywracała oddychania. Autorzy sugerowali, że barwnik utleniał składnik strukturalny potrzebny komórce.
Oświetlenie znacznie nasilało działanie barwnika, choć efekt był wyraźny także w ciemności. Inne barwniki ulegające redukcji zachowywały się inaczej: błękit toluylenowy dorównywał błękitowi metylenowemu lub przewyższał go działaniem, natomiast disulfonian indyga niemal nie działał. Nie stwierdzono jednoznacznej zależności między potencjałem oksydoredukcyjnym barwnika a wielkością jego efektu, co autorzy przypisywali przepuszczalności błony i toksyczności.
Efekt odpowiadał fermentacji, nie oddychaniu
W badaniu z 1930 roku Barron przeszedł od zawiesin komórkowych do skrawków tkanek prawidłowych narządów szczura i przeszczepionych guzów.
W tkankach niewykazujących glikolizy tlenowej błękit metylenowy nie działał lub nieznacznie hamował zużycie tlenu: w nerce o około 14 procent, w trzustce o około 14 procent, w wątrobie o około 5 procent. W tkankach prowadzących fermentację w obecności tlenu zwiększał zużycie: w śledzionie o około 8 procent, w mózgu o około 13 procent. Wzrosty w tkankach nowotworowych wynosiły od około 27 procent w ludzkim raku piersi do ponad 80 procent w mięsaku Rousa u kury, mniej więcej proporcjonalnie do glikolizy tlenowej w każdej tkance.
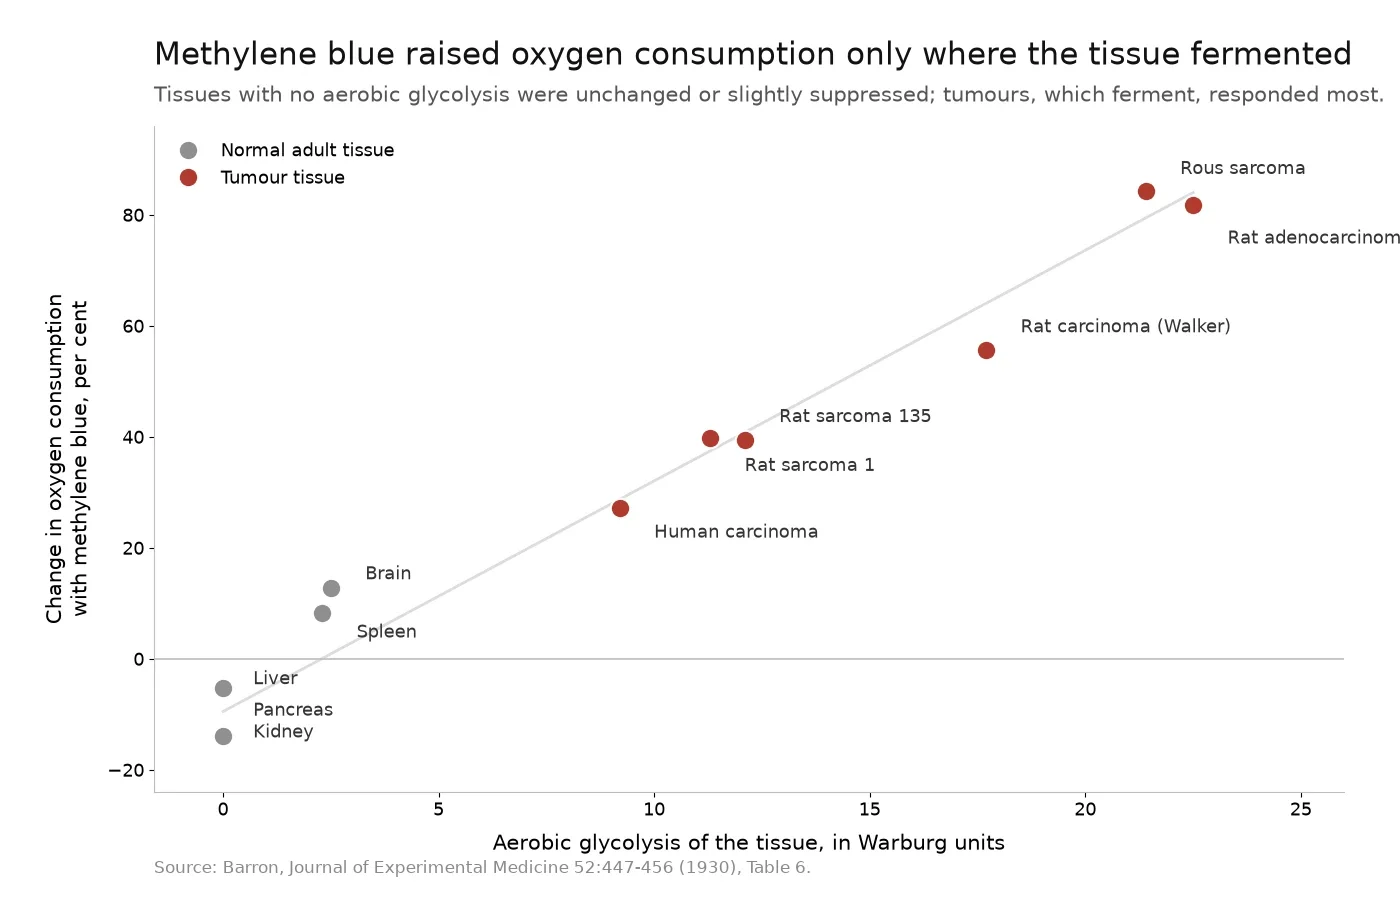
Rycina: każdy punkt oznacza jeden typ tkanki. Oś pozioma przedstawia glikolizę tlenową; oś pionowa — zmianę zużycia tlenu po dodaniu błękitu metylenowego. Dane z pracy Barrona, Journal of Experimental Medicine 52:447–456 (1930), tabela 6, PMID 19869777.
Doświadczenie z cyjankiem dało następnie lustrzany obraz. Gdy oddychanie w tych wcześniej niereagujących tkankach zablokowano cyjankiem i ujawniła się fermentacja, barwnik znów zwiększał zużycie tlenu: w nerce o około 59 procent, w wątrobie o około 19 procent, w śledzionie o około 286 procent, w jądrze o około 200 procent.
Barron zaproponował, że barwnik mógłby służyć do badania zdolności fermentacyjnej komórki lub tkanki, i zakończył spekulacją: kolejne pokolenia hodowli nowotworu w podłożu zawierającym barwnik mogłyby pewnego dnia trwale upodobnić jego metabolizm do metabolizmu prawidłowej tkanki. Było to pytanie badawcze zapisane w 1930 roku. Nie jest to twierdzenie o działaniu leczniczym.
Czego te doświadczenia nie mogły mierzyć
W latach 1928 i 1930 „oddychanie” oznaczało zużycie tlenu. Adenozynotrifosforan po raz pierwszy opisano w 1929 roku, a wykazanie, że izolowane mitochondria estryfikują fosforan podczas przenoszenia elektronów, nastąpiło w 1949 roku. Żadna z wczesnych prac dotyczących błękitu metylenowego nie mogła mierzyć wytwarzania energii i żadna tego nie deklarowała.
Drugim problemem są same komórki. Dojrzałe erytrocyty ssaków nie zawierają mitochondriów. Na etapie retikulocytów usuwają mitochondria i rybosomy przez selektywną autofagię, dlatego dojrzała czerwona krwinka czerpie energię z glikolizy, a jej szlak pentozofosforanowy służy głównie dostarczaniu NADPH, nie ATP. W doświadczeniach z 1928 roku nie było łańcucha transportu elektronów, który można by naprawić. Cokolwiek zużywało tlen, robiło coś innego.
Dziś dość dobrze opisano, czym było to inne działanie. Błękit metylenowy przyjmuje elektrony od komórkowych równoważników redukcyjnych i staje się leukobłękitem metylenowym, który jest ponownie utleniany przez tlen cząsteczkowy, zamykając cykl. W ludzkich czerwonych krwinkach etap redukcji przeprowadzają zależna od NADPH reduktaza flawinowa i pokrewne reduktazy disiarczkowe. Badanie z 1976 roku z użyciem znakowanej glukozy wykazało, że barwnik stymuluje szlak pentozofosforanowy, że efekt przy niskim stężeniu zależał od oksyhemoglobiny oraz że wyższe stężenie, 0.1 mM, powodowało powstawanie nadtlenku wodoru. Zredukowany barwnik w kontakcie z tlenem wytwarza nadtlenek, nie wiązania fosforanowe.
W mitochondriach obraz jest bardziej sporny, niż przyznają popularne omówienia. Jeden nurt badań zakłada, że barwnik pobiera elektrony z okolicy kompleksu I i przekazuje je cytochromowi c. W innym stwierdzono, że w mitochondriach mózgu myszy nie może on przywrócić oddychania po zablokowaniu go antymycyną, i zamiast tego umiejscowiono akceptor elektronów w miejscu wiązania ubichinolu w kompleksie III. Trzeci wykazał, że niskie stężenia zwiększały spoczynkowe zużycie tlenu, nie zmieniając oddychania stymulowanego ADP. Najbardziej bezpośrednio ujmuje to stwierdzenie, że zużycie tlenu wywołane błękitem metylenowym w ogóle nie zależy od fosforylacji oksydacyjnej: utrzymywało się po zahamowaniu łańcucha oddechowego oraz w preparatach pozbawionych takiego łańcucha.
Istnieją również bezpośrednie pomiary rozbieżności między tymi dwiema wielkościami. W izolowanych mitochondriach wątroby szczura rosnące stężenia barwnika obniżały współczynniki kontroli oddechowej i powodowały pęcznienie, co autorzy opisali jako rozprzęganie fosforylacji oksydacyjnej. W perfundowanej wątrobie szczura błękit metylenowy zwiększał zużycie tlenu, podczas gdy stosunek ATP do ADP spadał.
Dane kliniczne niosą ten sam przekaz. Methemoglobinemię leczy się, podając dożylnie około jednego do dwóch miligramów błękitu metylenowego na kilogram, z wykorzystaniem szlaku redukcji zależnego od NADPH, a większe dawki wywołują stan, który ma być leczony. W tym samym przeglądzie zauważono, że działanie odtruwające jest największe w nienaruszonych erytrocytach i słabnie przy hemolizie — obserwacja dotycząca hemolizy z 1930 roku powraca więc siedemdziesiąt trzy lata później w warunkach szpitalnych. W przypadku związku, którego korzystne i szkodliwe działanie leżą po przeciwnych stronach progu dawki, dawki nie należy wyznaczać na podstawie pomiaru zużycia tlenu.
Dlaczego partia produktu ma znaczenie w tej dyskusji
Harrop i Barron zauważyli coś, do czego warto wrócić. Sam błękit metylenowy daje w spektroskopie pasmo pomiędzy dwoma charakterystycznymi pasmami methemoglobiny, „co przy pobieżnym oglądzie łatwo może prowadzić do pomyłki”. Barwnik może naśladować poszukiwaną substancję.
Ten sam problem ma wymiar chemiczny. Pokrewna fenotiazyna obecna jako składnik mniejszościowy ma własne właściwości redoks, własną przepuszczalność i własną toksyczność. Jeden udokumentowany przypadek konkretnie pokazuje, co jest stawką: w badaniu jodowania błękitu metylenowego próbki zawierające około 7 do 8 procent Azure B dawały głównie jodowany Azure B, więc to zanieczyszczenie, a nie błękit metylenowy, dominowało w reakcji.
Każdy, kto używa błękitu metylenowego jako odczynnika — w laboratorium, na stanowisku do barwienia lub w akwarium — pracuje ze składnikiem o nieokreślonych właściwościach, jeśli dana partia nie została scharakteryzowana. Substancje pokrewne, tożsamość, zanieczyszczenia pierwiastkowe, pozostałości rozpuszczalników i pozostałość po prażeniu są częścią doświadczenia, a nie tylko towarzyszącą mu dokumentacją. Blupreme pozyskuje błękit metylenowy od producenta farmaceutycznego i publikuje pełny certyfikat analizy, badając zgodność z całą specyfikacją USP, a nie tylko zawartość metali ciężkich; przewodnik po czytaniu certyfikatu analizy oraz artykuł o tym, co potwierdza oznaczenie jakości USP, a czego nie, wyjaśniają, jak sprawdzić, czy dokument potwierdza deklarację.
Liczba była prawidłowa
Doświadczenia z 1928 i 1930 roku przeprowadzono starannie, a ich główna obserwacja pozostaje aktualna: barwnik ulegający redukcji może sprawić, że komórka, która niemal nie oddycha, będzie zużywać tlen wielokrotnie szybciej niż w spoczynku, z pominięciem etapu blokowanego przez cyjanek.
Błąd pojawia się później, gdy „oddychanie” interpretuje się w jego współczesnym znaczeniu. Pomiar wymiany gazowej mówi, że elektrony dotarły do tlenu. Nie mówi, że którekolwiek z nich wykorzystano do wytworzenia ATP, a w komórce pozbawionej mitochondriów różnica między tymi dwoma stwierdzeniami jest największa z możliwych. Szersza mapa działania błękitu metylenowego w komórkach ujmuje to samo rozróżnienie w szerszym kontekście, a historia związku od barwnika do leku wyjaśnia, jak barwnik włókienniczy w ogóle trafił do tych doświadczeń.