
Artikel
Metilen biru dan mitokondria: transport elektron dan buktinya
Bayangkan dua preparat berdampingan. Keduanya mengandung mitokondria otak yang diracuni dengan rotenone, bahan kimia yang memblokir Kompleks I pada rantai respirasi. Ke salah satunya, peneliti memipetkan metilen biru dengan dosis mikromolar. Penggunaan oksigen pulih sebagian. Tegangan membran kembali sebagian. Sejumlah kecil sintesis ATP dimulai kembali. Di kuvet sebelahnya, sensor peroksida menunjukkan sisi lain dari cerita tersebut: output hidrogen peroksida meningkat beberapa kali lipat, pada setiap dosis yang diuji, dengan setiap substrat yang dicoba.
Kedua hasil pengukuran itu benar. Metilen biru adalah pemindah elektron yang dapat mempertahankan aliran elektron melewati bagian rantai respirasi yang rusak, dan pemindah yang sama menimbulkan konsekuensi berupa peroksida saat melakukannya. Pertahankan kedua fakta ini sekaligus, maka literatur tentang fungsi mitokondria terkait metilen biru menjadi dapat dipahami. Pegang hanya salah satunya, dan hasilnya akan tampak sebagai keajaiban atau ancaman, tergantung makalah mana yang Anda buka terlebih dahulu.
Pemindahan elektron, dijelaskan secara sederhana
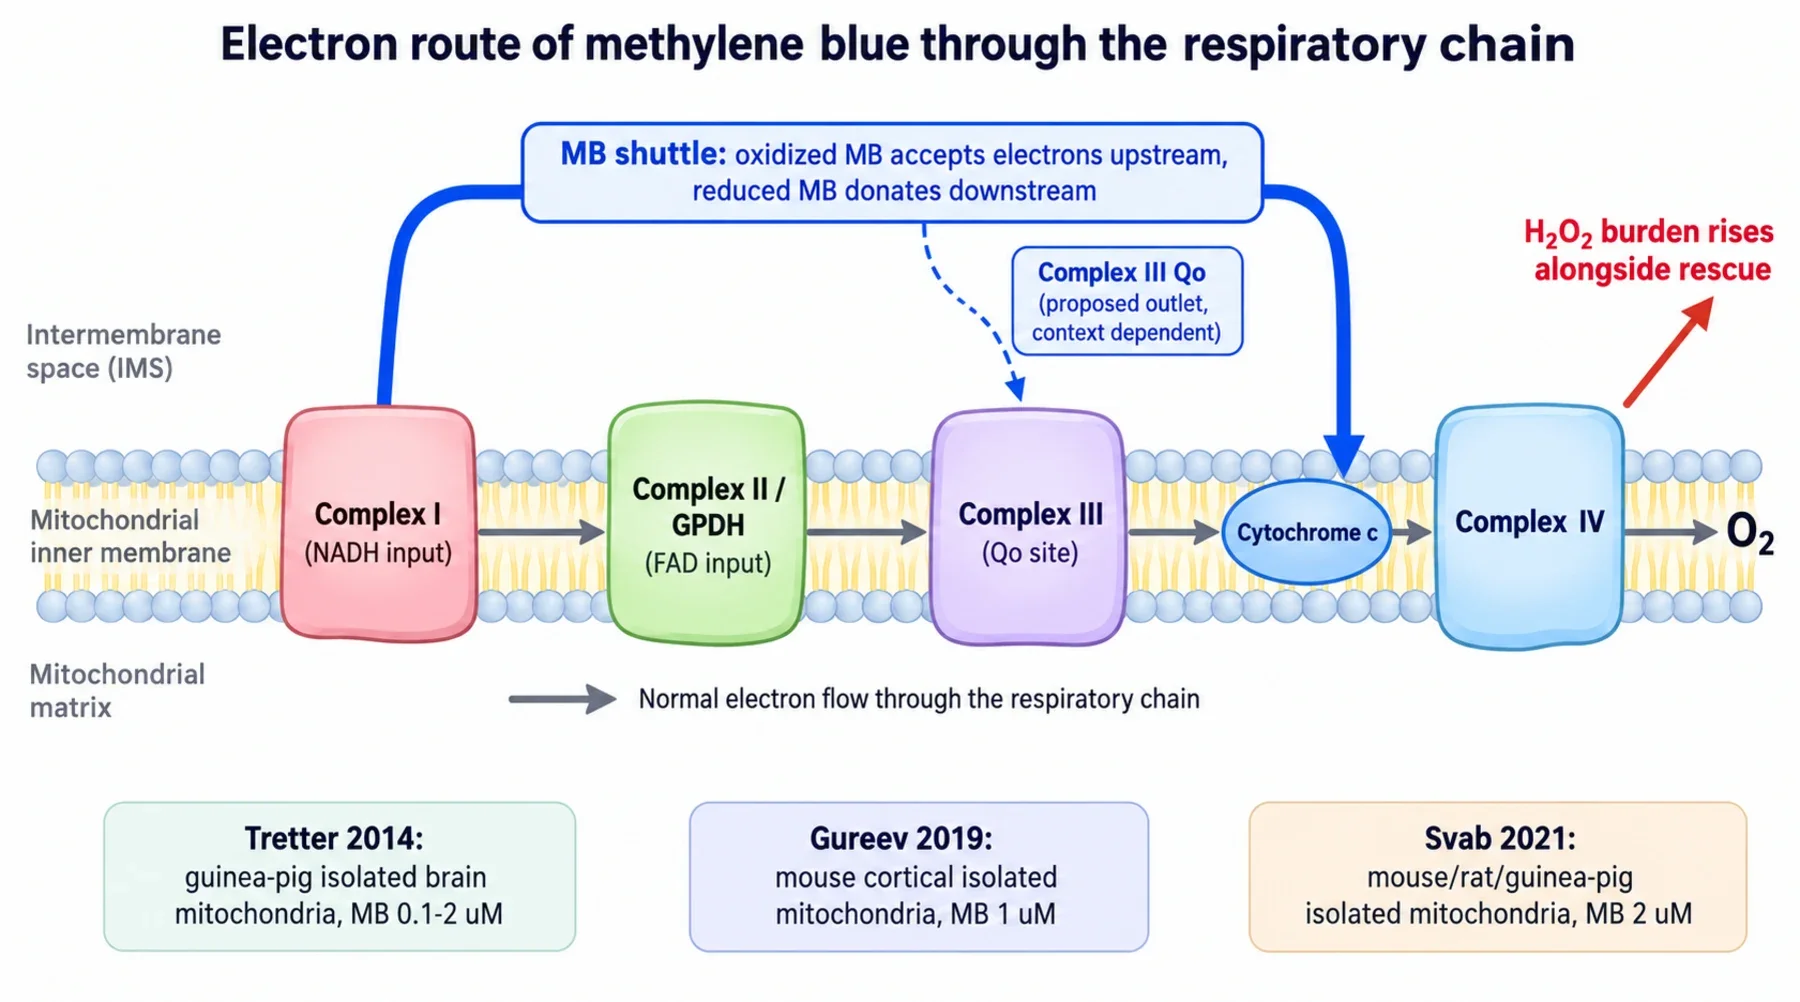
Rantai respirasi adalah jalur estafet. Elektron masuk pada Kompleks I (dari NADH) atau pada Kompleks II dan enzim flavin terkait (dari suksinat dan donor serupa), melewati Kompleks III menuju pembawa bergerak sitokrom c, lalu melalui Kompleks IV menuju oksigen. Setiap perpindahan memompa proton melintasi membran dalam, dan gradien yang dihasilkan menggerakkan sintesis ATP. Blokir salah satu stasiun, maka jalur di bagian hulu akan terhenti.
Metilen biru menyisipkan dirinya sebagai kurir paralel. Bentuk teroksidasinya menerima elektron dari pembawa di bagian hulu, berubah menjadi bentuk tereduksi yang tidak berwarna, leucomethylene blue, yang kemudian menyerahkan elektron tersebut ke bagian hilir dan kembali menjadi biru. Kedua bentuk tersebut dijelaskan dalam uraian tentang pasangan redoks, dan perilaku estafet yang lebih luas dibahas dalam penjelasan mekanisme umum. Pertanyaan yang masih terbuka adalah di mana kurir tersebut kembali memasuki jalur: kantong pengikatan quinol pada Kompleks III yang dikenal sebagai situs Qo, atau langsung pada sitokrom c. Jalur keluar mana yang dominan bergantung pada kondisi, sebagaimana dijelaskan secara terperinci dalam analisis bypass Kompleks III.
Apa yang sebenarnya diukur oleh tiga studi pada hewan pengerat
Ketiga studi menggunakan mitokondria otak terisolasi, yaitu organel yang dikeluarkan dari sel dan disuspensikan dalam buffer yang komposisinya ditentukan. Tidak ada sel utuh, tidak ada hewan yang diberi dosis, dan tidak ada subjek manusia. Konsentrasi merujuk pada medium di sekitar organel, bukan pada dosis oral manusia. Pertahankan kerangka ini, dan angka-angkanya menjadi jelas.
Studi pertama, pada mitokondria otak marmot terisolasi dengan 100 nanomolar hingga 2 mikromolar, memetakan manfaat dan konsekuensinya dalam satu preparat. Pada mitokondria sehat, zat warna tersebut meningkatkan penggunaan oksigen saat istirahat tetapi tidak mengubah respirasi yang distimulasi ADP, sehingga output ATP terkopel tidak meningkat. Dalam kondisi blokade Kompleks I, 2 mikromolar memulihkan sintesis ATP dari 46 menjadi 93 nanomol per menit per miligram dibandingkan tingkat normal sekitar 1109. Dalam kondisi blokade Kompleks III, dosis yang sama memulihkan ATP dari sekitar 46 menjadi 63 dibandingkan tingkat normal sekitar 910. Tegangan dan pengambilan kalsium pulih sebagian. Blokade Kompleks IV dengan sianida tidak dapat dilewati, yang menempatkan titik keluarnya elektron yang berguna di bagian hulu dari Kompleks IV yang masih berfungsi. Setiap pemulihan secara statistik nyata dan kecil: hanya persentase satu digit dari output ATP normal.
Studi kedua, pada mitokondria korteks tikus dengan sekitar 1 mikromolar, mengonfirmasi bypass Kompleks I dan menetapkan batas pada Kompleks III. Rotenone menurunkan respirasi dari sekitar 121 menjadi di bawah 2 nanomol oksigen per menit per miligram, dan zat warna tersebut menaikkannya menjadi sekitar 21, kira-kira seperenam dari normal, sementara tegangan membran pulih hampir sepenuhnya. Namun setelah blokade Kompleks III, baik respirasi maupun tegangan tidak pulih pada rentang 1 hingga 5 mikromolar, dan blokade tersebut menekan sinyal peroksida yang dipicu oleh zat warna. Para penulis mengusulkan bahwa zat warna tereduksi menyerahkan elektronnya pada situs Qo Kompleks III: ketika situs tersebut ditempati, kurir tidak memiliki tempat untuk menyerahkan muatannya.
Studi ketiga, pada mitokondria otak tikus, rat dan marmot dengan terutama 2 mikromolar, menguji perbedaan tersebut secara langsung dan menemukan bahwa blokade Kompleks III dapat dijembatani. Ketika inhibitor situs Qo myxothiazol menurunkan respirasi basal sebesar 88 persen, zat warna tersebut memulihkan penggunaan oksigen hingga sekitar 62 persen dari tingkat tanpa blokade. Dalam pengujian langsung, setengah mikromolar mereduksi sitokrom c eksogen bahkan ketika Kompleks III diblokir, mendukung adanya jalur dari NADH melalui zat warna menuju sitokrom c dan selanjutnya ke Kompleks IV. Namun respirasi yang dipulihkan menunjukkan perilaku abnormal: penambahan ADP menurunkan penggunaan oksigen alih-alih meningkatkannya, dan pemblokiran sintesis ATP justru merangsang respirasi. Tegangan hanya mengalami repolarisasi sebagian. Penggunaan oksigen tinggi dengan kopling terbalik bukanlah produksi energi normal.
Mengapa laboratorium-laboratorium tersebut berbeda pendapat, dan apa yang menjelaskannya
Penjelasan berdasarkan spesies adalah yang pertama gugur. Kelompok ketiga mengulangi penelitian pada tiga hewan pengerat dan memperoleh bypass kualitatif yang sama pada semuanya, termasuk strain tikus tempat bypass sebelumnya dilaporkan tidak ada. Yang berbeda justru konsentrasi (1 versus 2 mikromolar), dosis inhibitor, buffer, metode isolasi, dan terutama keadaan energi yang dibandingkan: bypass paling jelas sebelum penambahan ADP, tepat pada kondisi ketika respons ADP yang paradoks muncul. Karena itu, diagram yang jujur menunjukkan dua titik keluar yang bergantung pada kondisi, satu pada situs Qo dan satu pada sitokrom c. Kurir menyerahkan elektron di tempat yang dimungkinkan oleh kimia setempat.
Konsekuensi berupa peroksida
Sisi konsekuensi sama konsistennya dengan sisi pemulihan. Dalam penelitian pada marmot, zat warna meningkatkan pelepasan peroksida dalam setiap kondisi yang diuji, saat istirahat, saat sintesis ATP, dan saat mengalami gangguan kimia, pada ketiga substrat. Selama sintesis ATP, output naik dari sekitar 148 menjadi lebih dari 1500 pikomol per menit per miligram pada 1 mikromolar, dan bahkan 100 nanomolar meningkatkan sinyal lebih dari empat kali lipat. Zat warna tersebut juga memperlambat pembuangan peroksida sekitar 2.6 kali lipat, sehingga sinyal tersebut mencerminkan pembentukan yang lebih cepat sekaligus pembersihan yang lebih lambat. Mekanisme kimia yang diusulkan adalah reduksi langsung oksigen oleh zat warna tereduksi tanpa superoksida yang terdeteksi, meskipun hal itu masih merupakan interpretasi, bukan tahapan yang telah terbukti.
Penelitian pada tikus membuat gambaran tersebut lebih kompleks dengan cara yang berguna. Peroksida meningkat tajam seiring dosis, dari baseline sekitar 76 menjadi hampir 2000 pikomol per menit per miligram pada 2 mikromolar, tetapi blokade Kompleks III menekan komponen yang dipicu oleh zat warna. Jika peroksida hanya berasal dari zat warna tereduksi yang bereaksi dengan oksigen, pemblokiran rantai seharusnya tidak terlalu berpengaruh. Namun pengaruhnya besar, sehingga rantai tersebut ikut berperan. Tinjauan antioksidan dan pro-oksidan menempatkan dualitas ini dalam konteks yang lebih luas, dan analisis oksigen versus ATP menjelaskan mengapa angka oksigen saja tidak pernah cukup untuk membuktikan klaim energi.
Pemulihan bukanlah perbaikan
Frasa yang perlu ditinggalkan adalah "apakah metilen biru memperbaiki mitokondria." Perbaikan berarti koreksi yang bertahan lama: kompleks dibangun kembali, kopling tetap bertahan setelah obat tidak lagi ada, pemulihan terjadi dalam sel utuh, lalu fungsi meningkat pada organisme hidup. Tidak satu pun dari ketiga makalah tersebut menunjukkan hal itu. Yang ditunjukkan adalah pengalihan jalur secara akut dalam organel yang baru diisolasi selama blokade kimia buatan, dengan output ATP hanya sebesar sebagian kecil dari normal dan terkadang disertai kopling yang jelas tidak normal. Rotenone dan antimycin adalah alat laboratorium, bukan model penuaan atau penyakit mitokondria pada manusia, dan tidak ada temuan di sini yang dapat diterjemahkan menjadi lebih banyak energi bagi orang sehat, yang merupakan pertanyaan bukti terpisah dengan literatur manusia tersendiri.
Tiga batasan menjaga agar setiap kesimpulan biohacking tetap sesuai dengan bukti. Pertama, konsentrasi dalam medium bukanlah dosis: 0.1 hingga 2 mikromolar di sekitar organel terisolasi tidak memberi tahu kita berapa jumlah oral yang menghasilkan konsentrasi bebas tersebut pada mitokondria otak manusia, terutama karena zat warna dapat terakumulasi atau dilepaskan bergantung pada tegangan membran itu sendiri. Kedua, oksigen bukanlah energi: zat warna dapat meningkatkan penggunaan oksigen melalui siklus dan kebocoran maupun melalui fosforilasi produktif, sehingga respirometri tanpa pengukuran ATP dan tegangan tidak dapat membenarkan klaim energi. Ketiga, manfaat dan beban harus disebutkan dalam satu kalimat: setiap pernyataan tentang pemulihan tegangan atau ATP yang menghilangkan peningkatan peroksida yang terjadi bersamaan berarti melaporkan eksperimen secara tidak lengkap. Faktor terkait lainnya mencakup keseimbangan redoks NAD, bentuk respons dosis dan panduan assay.
Satu catatan praktis: kemampuan pemindahan elektron merupakan sifat dari molekul yang tepat. Kerabat yang mengalami demetilasi seperti Azure B juga aktif secara redoks, tetapi memiliki perilaku yang berbeda, sehingga larutan yang telah terdegradasi sebagian merupakan eksperimen yang berbeda dari zat warna yang masih utuh. Itulah salah satu alasan untuk menuntut spesifikasi farmakope lengkap dan dokumen batch yang dipublikasikan, bukan sekadar pemeriksaan logam. Kimia yang dipicu cahaya menambahkan catatan kehati-hatian tersendiri untuk penggunaan dengan pencahayaan, yang dibahas dalam kombinasi dengan cahaya merah.
Klaim sempit ini tetap bertahan setelah semua batasan tersebut dan layak dipertahankan: metilen biru dapat bertindak sebagai kurir elektron bersyarat dalam mitokondria terisolasi yang rusak, dengan mempertahankan sebagian aliran tetapi disertai konsekuensi berupa peroksida. Segala sesuatu di luar itu, energi, umur panjang, perbaikan, masih menunggu bukti yang sejak awal memang tidak dirancang untuk diberikan oleh studi-studi ini.