
Artikkeli
Kokeet, jotka yhdistivät metyleenisinisen soluhengitykseen
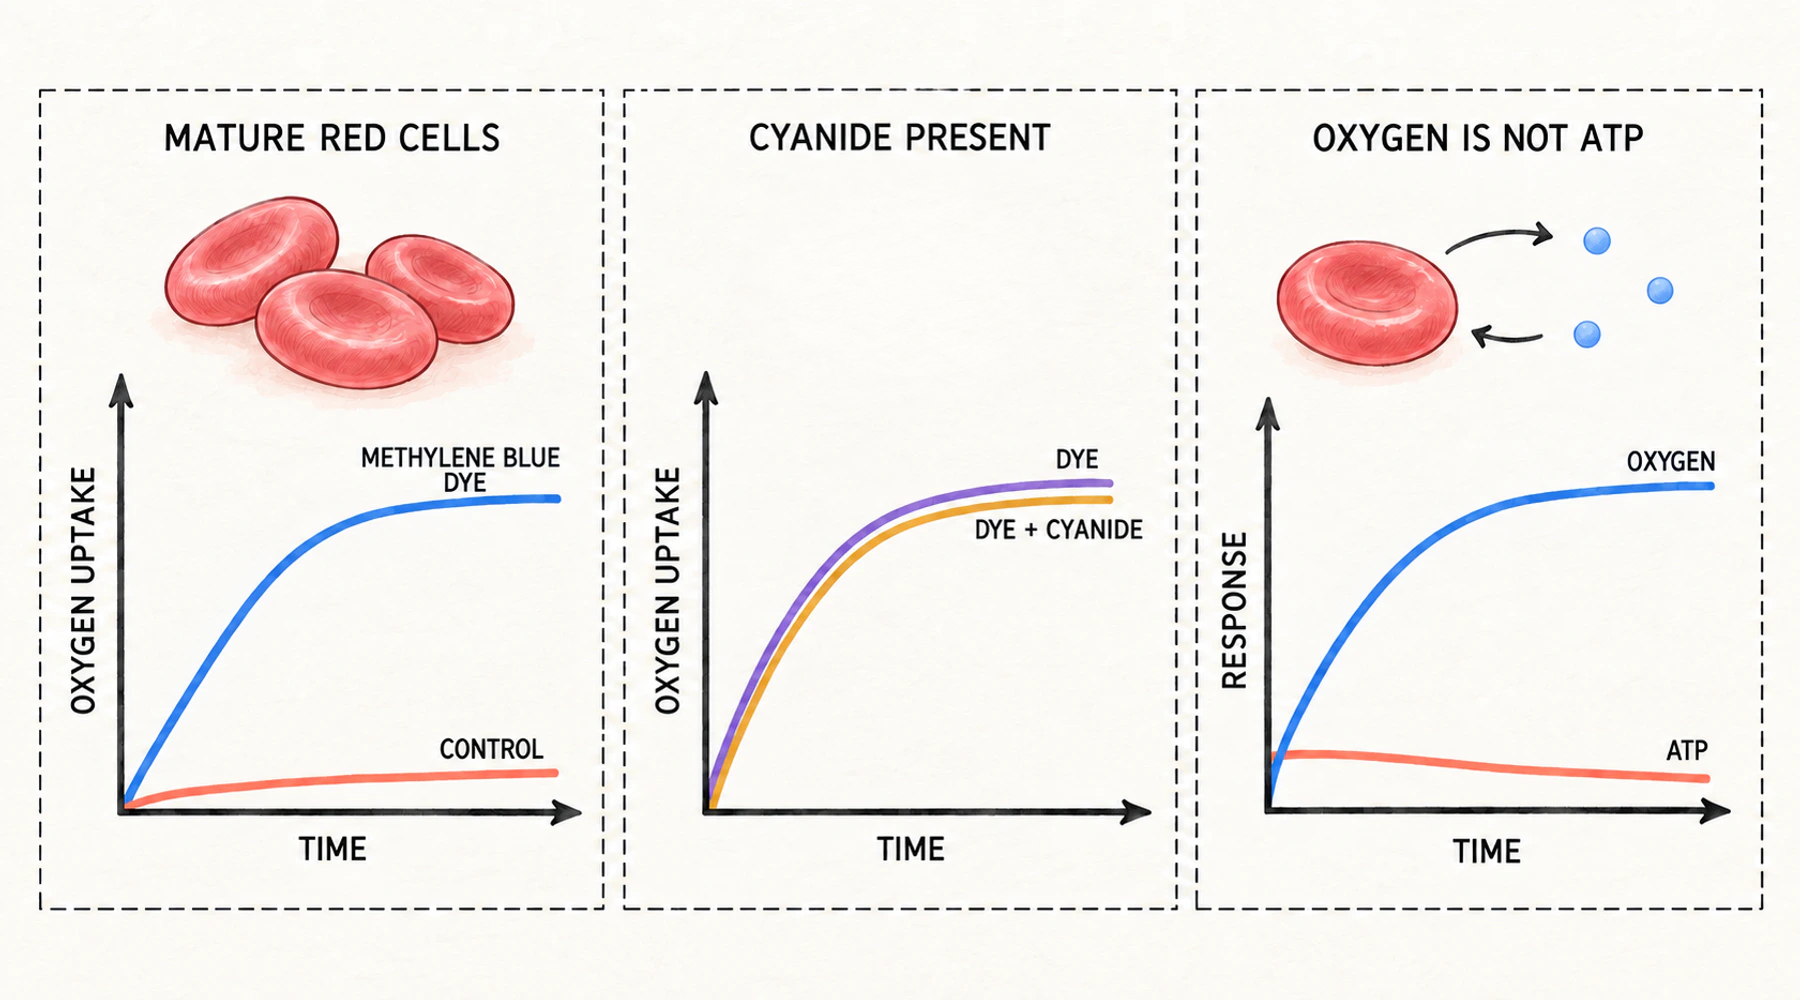
Defibrinoitu ihmisveri, jota pidetään 37 °C:ssa kolme tuntia, kuluttaa noin kaksi prosenttia sisältämästään hapesta. Kun ennen inkubointia lisätään pieni määrä metyleenisinistä, sama veri kuluttaa noin kuusikymmentäviisi prosenttia. Soluissa mikään ei muuttunut. Vain liuos muuttui.
Luku on peräisin George Harropin ja E. S. Guzman Barronin vuonna 1928 Johns Hopkinsissa tekemästä tutkimuksesta. Siitä sai alkunsa usein toistettu väite, että metyleenisininen parantaa soluhengitystä. Väite ei ole väärä, mutta se on suppeampi kuin miltä kuulostaa.
Mitä taulukon luku oikeastaan mittaa
Mitattava suure oli hapenotto, joka määritettiin kaasuanalyysillä. Harrop ja Barron suodattivat tuoreen verinäytteen puuvillavanun läpi 10 °C:ssa poistaakseen valkosolut, kyllästivät näytteen hapella, jakoivat sen osiin, lisäsivät toiseen osaan väriainetta ja analysoivat molemmat inkuboinnin jälkeen. Valkosolumäärät ylittivät harvoin noin tuhat solua kuutiomillimetrissä. Hapenkulutus ilmoitettiin osuutena näytteen alkuperäisestä happimäärästä, joka oli hävinnyt.
He mittasivat myös hiilidioksidia, mutta sen kohdalla menetelmä aiheutti vaikeuksia. Defibrinoitu veri vapautti inkuboinnin ensimmäisen tunnin aikana jopa kaksi millimoolia hiilidioksidia 100 mL:aa kohti syistä, jotka eivät liittyneet tutkittavaan reaktioon. Siksi kokoverestä saadut hengitysosamäärät olivat käyttökelvottomia. Vain Locken liuoksessa olevista pestyistä soluista saatiin tulkittavia arvoja, ja ne sijoittuivat välille 0.73–0.80 sekä väriaineen kanssa että ilman sitä.
Tämä yksityiskohta ei ole sivuseikka. Näissä tutkimuksissa ”hengitys” tarkoittaa suljetussa astiassa tapahtuvaa kaasujenvaihtoa. Hapenkulutuksen ja käyttökelpoisen energiantuoton välistä eroa tarkastellaan erikseen artikkelissa mitä hapenkulutus kertoo ja mitä se ei kerro ATP:stä.
Väriaine lisäsi hengitystä eniten soluissa, joissa sitä oli vähiten
Kypsillä nisäkkäiden punasoluilla ei ole juuri lainkaan mitattavaa hapenkulutusta. Tumallisilla lintujen punasoluilla sitä on. Harrop ja Barron tutkivat molempia, ja niiden välinen ero muodostaa heidän päättelynsä perustan.
Nisäkkäiden näytteissä väriaine lisäsi hapenkulutuksen kaksikymmen- tai jopa viisikymmenkertaiseksi. Hanhen veressä, jonka soluissa soluhengitystä oli jo valmiiksi, se ei koskaan lisännyt nopeutta yli kaksinkertaiseksi. Mitä suurempi hengitys oli lähtötilanteessa, sitä vähemmän väriaine pystyi sitä lisäämään.
Sama jatkumo näkyy yhden lajin sisällä. Polysytemia veraa sairastavalta potilaalta saatu ihmisverinäyte, joka sisälsi epäkypsiä soluja, kulutti ilman väriainetta 11.3 prosenttia hapestaan, kun terveen luovuttajan pestyjen solujen vastaava luku oli 2.8 prosenttia. Väriaine nosti osuuden vain 63.4 prosenttiin: nopeus kasvoi kuusinkertaiseksi, kun normaaleissa soluissa se kasvoi lähes kolmikymmenkertaiseksi. Väriaine sai kypsät solut käyttäytymään enemmän epäkypsien solujen tavoin, kuten tutkijat sen vaikutusta kuvasivat.
Syanidin olisi pitänyt pysäyttää se
Syanidin tiedettiin pysäyttävän solujen hapetusreaktiot. Harrop ja Barron lisäsivät sitä silti väriaineen rinnalle.
Naudanverestä saadut tulokset ovat edustava esimerkki. Happipitoisuus laski kolmen tunnin aikana 22.61 tilavuusprosentista 22.03 tilavuusprosenttiin ilman lisäyksiä. Metyleenisinisen kanssa se laski arvoon 12.84. Metyleenisinisen ja molaarisuudeltaan yhden viidestuhannesosan kaliumsyanidin kanssa se laski arvoon 12.74. Väriaineen vaikutus pysyi käytännössä ennallaan.
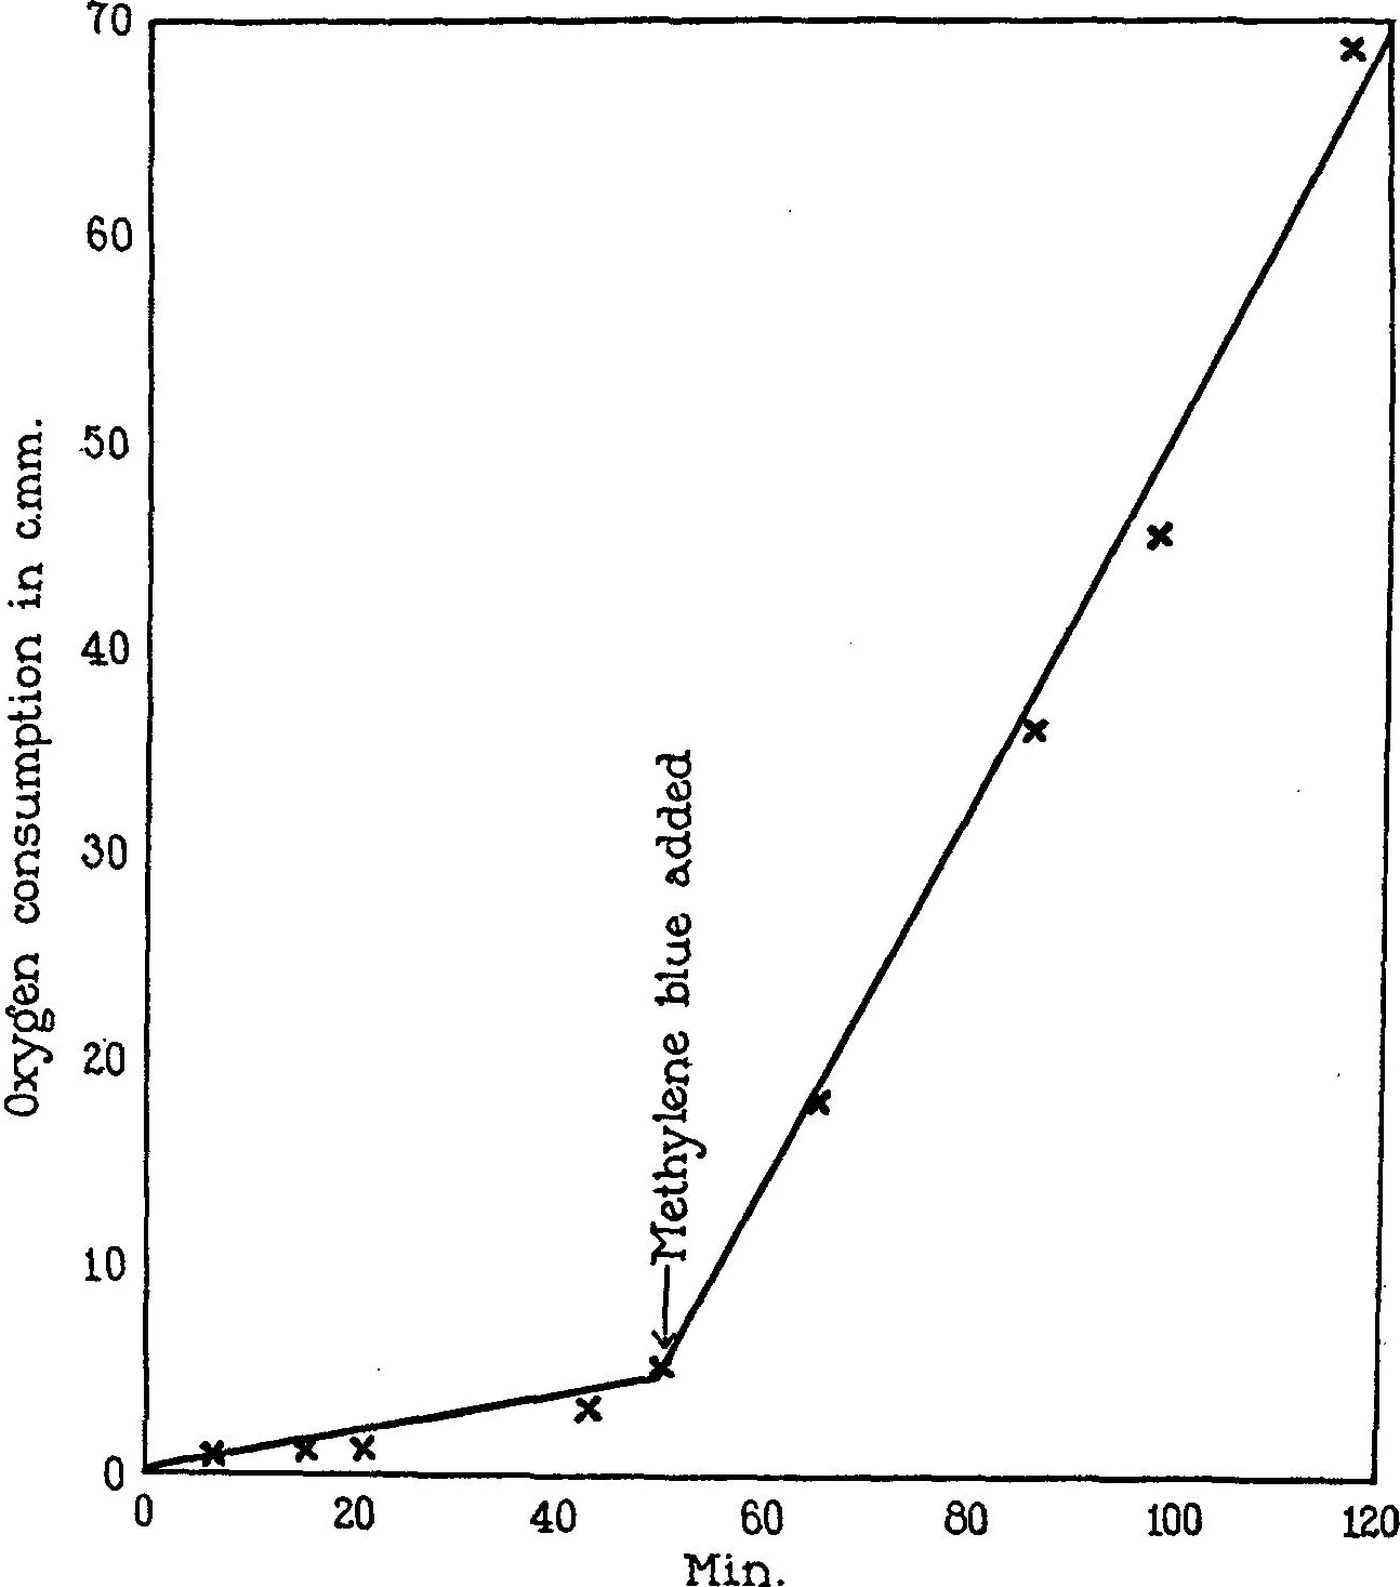
Kuva: ihmisen punasolujen jatkuva mikrorespirometrinen mittaus. Nuoli osoittaa metyleenisinisen lisäämishetken. Sitä ennen käyrä on lähes vaakasuora; sen jälkeen se nousee tasaisesti. Jäljennetty Harropin ja Barronin artikkelista, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Heidän johtopäätöksensä oli, että väriaine toimi hapenkuljettajana ”tuomalla ainetta, joka on hävinnyt aikuisten nisäkkäiden tumattomista punasoluista”. Kaksi vuotta myöhemmin Rockefeller-instituutin Michaelis ja Salomon muotoilivat erimielisyyden tavalla, joka on jäänyt pysyväksi. Joko väriaineen vaikutus oli ”väriaineen satunnainen ominaisuus” tai väriaine oli ”malli jollekin eliöissä esiintyvälle tuntemattomalle aineelle”. Näiden vaihtoehtojen välistä kysymystä ei ole ratkaistu. Muuttunut on se, että soluja voidaan nyt kuvata paljon tarkemmin.
Maksauute teki saman
Michaelis ja Salomon osoittivat, että elinten kylmävesiuutteet saavat aikaan saman stimulaation. Rotan maksan vaikutus oli voimakkain, ja sitä seurasivat munuainen, perna ja kives. Aivoilla, lihaksella ja veriseerumilla oli vain vähän tai ei lainkaan vaikutusta.
Seuraavaksi he testasivat uutetta hiilimonoksidin läsnä ollessa. Uutteen tai väriaineen käynnistämä hengitys pysyi muuttumattomana seoksessa, jossa oli 98 prosenttia hiilimonoksidia ja 2 prosenttia happea. Sama kaasuseos esti hiivan ja kanan tumallisten punasolujen hengitystä noin 60–80 prosenttia, mikä vastasi Warburgin kuvausta hiilimonoksidille herkästä hengitysentsyymistä. Tunnistamaton kudosaine ei siis ollut Warburgin entsyymi.
Useita mahdollisia aineita suljettiin tutkimusten aikana pois. Pelkistynyt glutationi ja kysteiini aiheuttivat vain oman hapettumisensa vaatiman hapenkulutuksen. Hardenin ja Youngin koentsyymi suljettiin pois, koska sitä on eniten lihaksessa, jonka vaikutus oli lähes pienin. Muutamaa vuotta aiemmin nimetty Keilinin sytokromi törmäsi samaan ristiriitaan. Omaa ehdotustaan siitä, että vaikuttava aine oli peräisin solun tumasta, he kutsuivat pelkäksi ehdotukseksi.
Vaikutuksella oli ehtonsa
Solujen oli oltava ehjiä. Tislatun veden tai toistuvan jäädyttämisen aiheuttama hemolyysi poisti vasteen sekä väriaineelle että uutteelle, ja osittainen hemolyysi vähensi sitä samassa suhteessa.
Myös sokeria tarvittiin. Glukoosi, fruktoosi ja sakkaroosi ylläpitivät väriaineen käynnistämää hengitystä; mannitoli ei. Ilman sokeria hengitystä ei ollut lainkaan, ja väriaine näytti samalla vaurioittavan soluja, joten tunnin tai kahden kuluttua lisätty glukoosi ei palauttanut sitä. Tutkijat ehdottivat, että väriaine hapetti solun tarvitsemaa rakenneosaa.
Valo lisäsi väriaineen vaikutusta huomattavasti, vaikka vaikutus oli selvä myös pimeässä. Muut pelkistyvät väriaineet käyttäytyivät eri tavoin: tolueenisinisen vaikutus vastasi metyleenisinistä tai ylitti sen, kun taas indigodisulfonaatti ei saanut aikaan juuri mitään. Väriaineen hapetus-pelkistyspotentiaalin ja vaikutuksen suuruuden välille ei löytynyt selvää yhteyttä. Tutkijat selittivät tätä solukalvon läpäisevyydellä ja myrkyllisyydellä.
Vaikutus seurasi käymistä, ei hengitystä
Barronin vuoden 1930 tutkimuksessa siirryttiin solususpensioista normaalien rotan elinten ja siirrettyjen kasvainten kudosleikkeisiin.
Kudoksissa, joissa ei ollut aerobista glykolyysiä, metyleenisininen ei vaikuttanut lainkaan tai vähensi hapenkulutusta hieman: munuaisessa noin 14 prosenttia, haimassa noin 14 prosenttia ja maksassa noin 5 prosenttia. Kudoksissa, joissa tapahtuu käymistä hapen läsnä ollessa, se lisäsi kulutusta: pernassa noin 8 prosenttia ja aivoissa noin 13 prosenttia. Kasvaimissa lisäys vaihteli ihmisen rintakarsinooman noin 27 prosentista Rousin kanan sarkooman yli 80 prosenttiin, suunnilleen suhteessa kunkin kudoksen aerobiseen glykolyysiin.
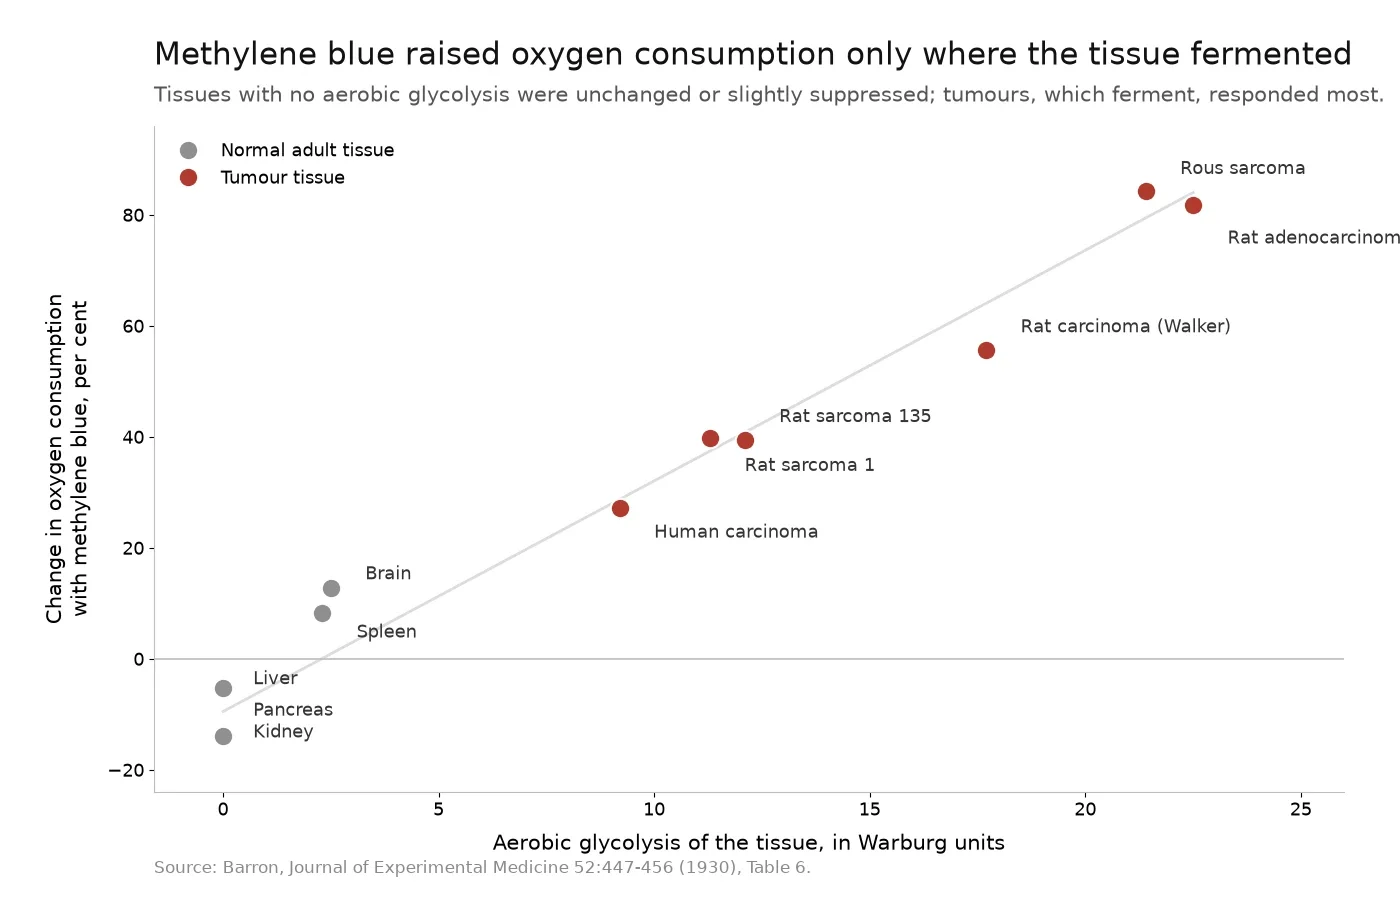
Kuva: jokainen piste edustaa yhtä kudostyyppiä. Vaaka-akselilla on aerobinen glykolyysi ja pystyakselilla hapenkulutuksen muutos metyleenisinisen lisäämisen jälkeen. Aineisto Barronin artikkelista, Journal of Experimental Medicine 52:447–456 (1930), taulukko 6, PMID 19869777.
Syanidikoe tuotti sitten peilikuvan. Kun näiden aiemmin reagoimattomien kudosten hengitys estettiin syanidilla ja käyminen tuli esiin, väriaine lisäsi jälleen hapenkulutusta: munuaisessa noin 59 prosenttia, maksassa noin 19 prosenttia, pernassa noin 286 prosenttia ja kiveksessä noin 200 prosenttia.
Barron ehdotti, että väriainetta voitaisiin käyttää solun tai kudoksen käymiskyvyn testaamiseen, ja päätti artikkelinsa pohdintaan: kasvaimen viljely sukupolvesta toiseen väriainetta sisältävässä kasvatusliuoksessa saattaisi jonakin päivänä muuttaa sen aineenvaihdunnan pysyvästi normaalin kudoksen kaltaiseksi. Se oli vuonna 1930 esitetty tutkimuskysymys. Se ei ole hoitoväite.
Mitä kokeissa ei voitu mitata
Vuosina 1928 ja 1930 ”hengitys” tarkoitti hapenkulutusta. Adenosiinitrifosfaatti kuvattiin ensimmäisen kerran vuonna 1929, ja vasta vuonna 1949 osoitettiin, että eristetyt mitokondriot esteröivät fosfaattia siirtäessään elektroneja. Yksikään varhaisista metyleenisinistä käsitelleistä tutkimuksista ei voinut mitata energiantuotantoa, eikä yksikään niistä väittänyt mitanneensa sitä.
Toinen ongelma ovat solut. Kypsät nisäkkäiden punasolut eivät sisällä mitokondrioita. Retikulosyyttivaiheessa ne poistavat mitokondriot ja ribosomit valikoivalla autofagialla. Siksi kypsä punasolu saa energiansa glykolyysistä ja tarvitsee pentoosifosfaattireittiään pääasiassa NADPH:n eikä ATP:n tuottamiseen. Vuoden 1928 kokeissa ei ollut läsnä elektroninsiirtoketjua, jota olisi voitu korjata. Happea kuluttava prosessi teki jotakin muuta.
Tuo muu prosessi tunnetaan nykyisin melko hyvin. Metyleenisininen vastaanottaa elektroneja solun pelkistysvoimaa sisältäviltä yhdisteiltä ja muuttuu leukometyleenisiniseksi, jonka molekulaarinen happi hapettaa uudelleen, jolloin kierto sulkeutuu. Ihmisen punasoluissa pelkistysvaiheesta huolehtivat NADPH-riippuvainen flaviinireduktaasi ja siihen liittyvät disulfidireduktaasit. Vuonna 1976 tehdyssä, merkittyä glukoosia käyttäneessä tutkimuksessa havaittiin, että väriaine stimuloi heksoosimonofosfaattireittiä, että pienen pitoisuuden vaikutus riippui oksihemoglobiinista ja että suurempi pitoisuus, 0.1 mM, tuotti vetyperoksidia. Kun pelkistynyt väriaine kohtaa hapen, syntyy peroksidia, ei fosfaattisidoksia.
Mitokondrioissa tilanne on kiistanalaisempi kuin yleistajuiset yhteenvedot antavat ymmärtää. Yhden tutkimuslinjan mukaan väriaine ottaa elektroneja kompleksin I alueelta ja luovuttaa ne sytokromi c:lle. Toisessa havaittiin, ettei se pysty palauttamaan hiiren aivojen mitokondrioiden hengitystä antimysiinin aiheuttaman eston jälkeen, ja elektronien vastaanottokohta sijoitettiin sen sijaan kompleksin III ubikinolia sitovaan kohtaan. Kolmannessa havaittiin, että pienet pitoisuudet lisäsivät hapenkulutusta lepotilassa mutta eivät muuttaneet ADP:n stimuloimaa hengitystä. Suorin havainto asiasta on, ettei metyleenisinisen käynnistämä hapenkulutus riipu lainkaan oksidatiivisesta fosforylaatiosta: se jatkui hengitysketjun ollessa estettynä ja myös valmisteissa, joissa hengitysketjua ei ollut.
Näiden kahden suureen välisestä erosta on myös suoria mittauksia. Rotan maksasta eristetyissä mitokondrioissa kasvavat väriainepitoisuudet pienensivät hengityksen kontrollisuhteita ja aiheuttivat turpoamista. Tutkijat kuvasivat tätä oksidatiivisen fosforylaation irtikytkennäksi. Perfuusiossa olevassa rotan maksassa metyleenisininen lisäsi hapenkulutusta samalla, kun ATP:n ja ADP:n suhde pieneni.
Kliiniset havainnot kertovat samaa. Methemoglobinemiaa hoidetaan antamalla noin yhdestä kahteen milligrammaa metyleenisinistä painokiloa kohti laskimoon. Vaikutus välittyy NADPH-riippuvaisen pelkistysreitin kautta, ja suuremmat annokset aiheuttavat juuri sen tilan, jota hoidetaan. Sama katsaus toteaa, että vastamyrkkyvaikutus on suurin ehjissä punasoluissa ja heikkenee hemolyysin yhteydessä. Näin vuoden 1930 hemolyysihavainto tulee uudelleen esiin seitsemänkymmentäkolme vuotta myöhemmin sairaalaympäristössä. Jos yhdisteen hyödylliset ja haitalliset vaikutukset sijoittuvat annoskynnyksen vastakkaisille puolille, sen annosta ei pidä päätellä hapenkulutusmittauksesta.
Miksi valmistuserä kuuluu keskusteluun
Harrop ja Barron huomasivat jotakin, joka ansaitsee uuden lukukerran. Metyleenisininen itsessään tuottaa spektroskoopissa juovan methemoglobiinin kahden tyypillisen juovan väliin, ”mikä voi helposti aiheuttaa sekaannusta pintapuolisessa tarkastelussa”. Väriaine voi jäljitellä ainetta, jota etsitään.
Sama ongelma ilmenee myös kemiallisesti. Vähäisenä aineosana esiintyvällä sukulaisfenotiatsiinilla on oma hapetus-pelkistyskäyttäytymisensä, läpäisevyytensä ja myrkyllisyytensä. Yksi dokumentoitu tapaus konkretisoi asian merkityksen: metyleenisinisen jodittamista koskevassa tutkimuksessa näytteet, jotka sisälsivät noin 7–8 prosenttia Azure B:tä, tuottivat pääasiassa joditettua Azure B:tä. Reaktiota hallitsi siis epäpuhtaus eikä metyleenisininen.
Jokainen, joka käyttää metyleenisinistä reagenssina laboratoriossa, värjäystyössä tai akvaariossa, työskentelee määrittelemättömän aineosan kanssa, ellei valmistuserää ole karakterisoitu. Sukulaisaineet, tunnistaminen, alkuaine-epäpuhtaudet, liuotinjäämät ja hehkutusjäännös ovat osa koetta, eivät sitä ympäröivää paperityötä. Blupreme hankkii metyleenisinisensä lääkevalmistajalta ja julkaisee täydellisen analyysitodistuksen. Testaus kattaa koko USP-spesifikaation eikä pelkkiä raskasmetalleja. Opas analyysitodistuksen lukemiseen ja artikkeli mitä USP-laatumerkintä osoittaa ja mitä se ei osoita käsittelevät sitä, miten asiakirjaa verrataan esitettyyn väitteeseen.
Luku oli oikea
Vuosien 1928 ja 1930 kokeet olivat huolellisia, ja niiden keskeinen havainto on kestänyt aikaa: pelkistyvä väriaine voi saada solun, jonka hengitys on lähes olematonta, kuluttamaan happea moninkertaisesti lepotilan nopeuteen verrattuna ilman, että prosessi kulkee syanidin estämän vaiheen kautta.
Virhe syntyy myöhemmin, kun ”hengitys” tulkitaan sen nykyisessä merkityksessä. Kaasujenvaihdon mittaus kertoo, että elektronit päätyivät hapelle. Se ei kerro, käytettiinkö niistä yhtäkään ATP:n tuottamiseen. Solussa, jossa ei ole mitokondrioita, näiden kahden väitteen välinen ero on niin suuri kuin voi olla. Laajempi katsaus metyleenisinisen vaikutuskohteisiin soluissa asettaa saman eron laajempaan yhteyteen, ja yhdisteen historia väriaineesta lääkkeeksi selittää, miten tekstiiliväriaine ylipäätään päätyi näihin kokeisiin.