
Artículo
Cómo entra el azul de metileno en las células: reducción, reoxidación y partición de membrana
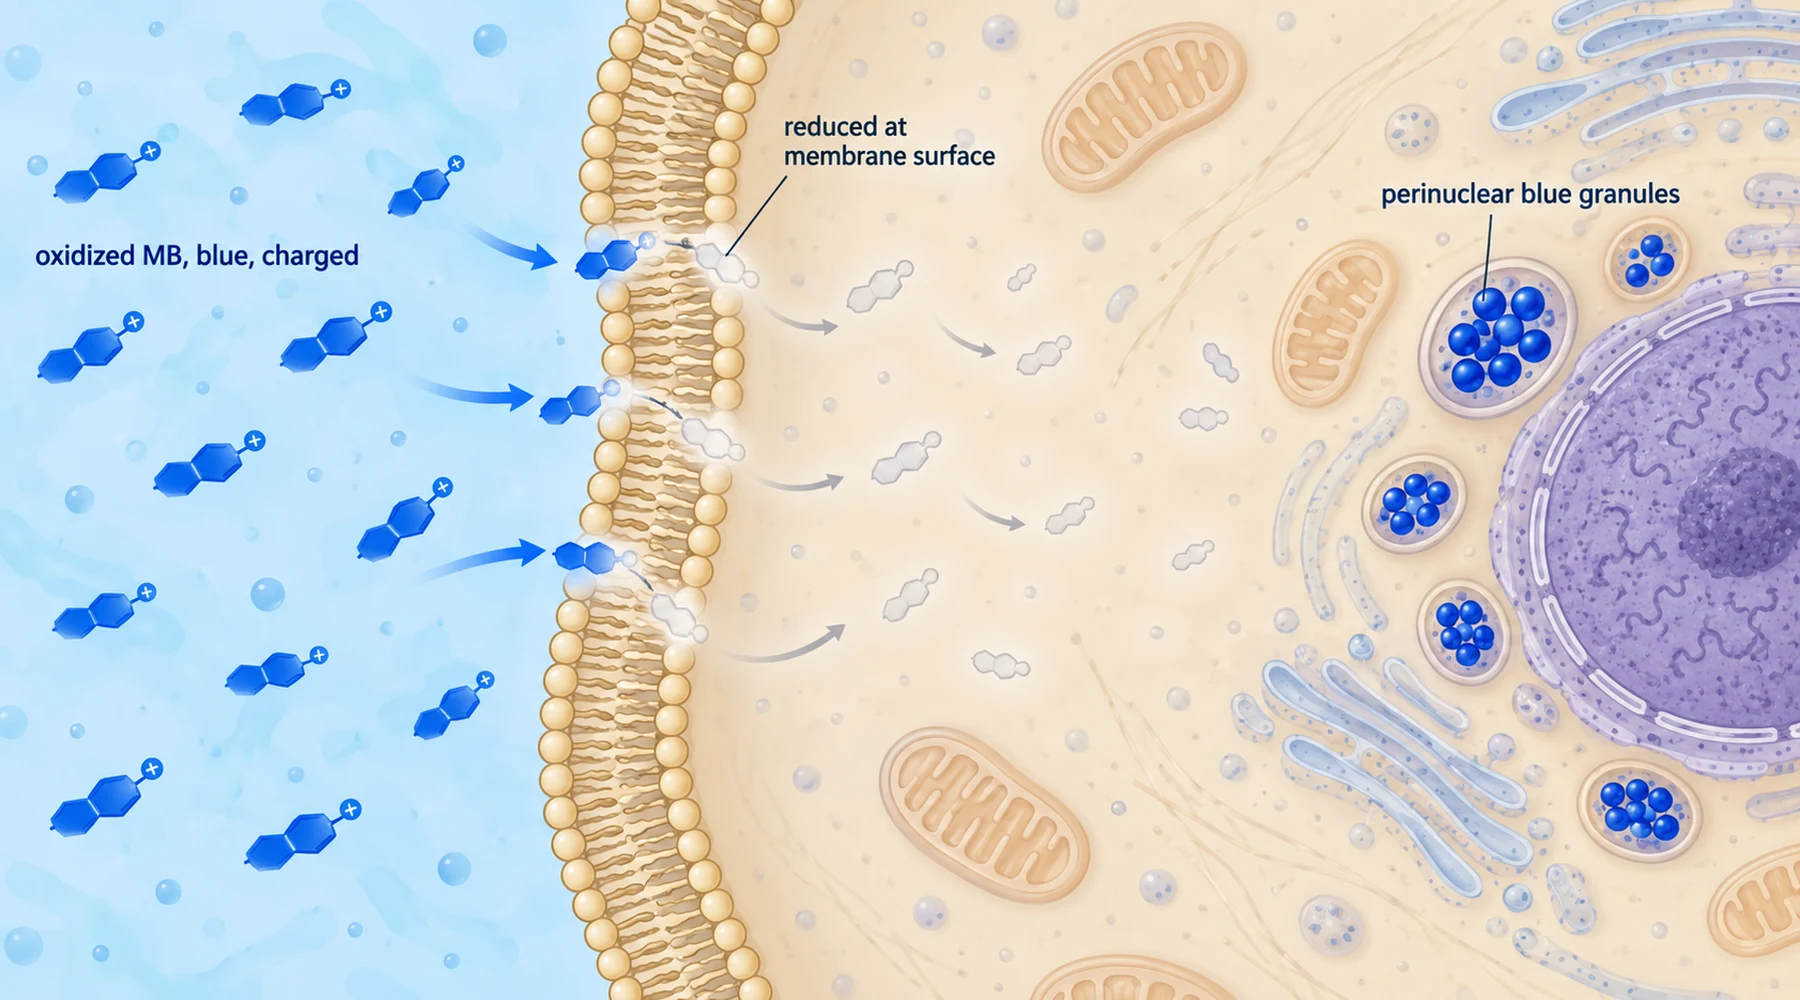
Observar un cultivo de células endoteliales que incorpora azul de metileno conduce a una interpretación evidente, pero incorrecta. El medio pierde su color azul, las células adquieren gránulos azules, por lo que el colorante debe haber atravesado la membrana como molécula azul. Los experimentos indican lo contrario. La forma azul apenas atraviesa. Lo que cruza es la forma incolora, y el azul que se observa en el interior se produce dentro, después de la llegada.
Esa inversión es importante porque determina qué puede y qué no puede indicar una tinción. Los gránulos azules informan sobre colorante oxidado que fue reoxidado y atrapado en orgánulos. No informan sobre el colorante total en la célula, no informan sobre la reserva reducida y no miden el efecto biológico. Para entender por qué, hay que seguir los tres pasos: reducción en la superficie, difusión de la forma reducida, reoxidación y atrapamiento en el interior.
Las dos formas se comportan como moléculas diferentes
El azul de metileno oxidado es un sistema de anillos plano con carga positiva. Se disuelve en agua, absorbe luz intensamente alrededor de 600 a 700 nanómetros y presenta color azul. La carga es el punto clave. Una molécula con carga y afinidad por el agua no atraviesa fácilmente una membrana lipídica, por lo que la expresión cuidadosa en la literatura es relativamente impermeable a la membrana, no impermeable.
El azul de metileno reducido, llamado azul de leucometileno, es incoloro, no tiene carga y es soluble en grasas. Al eliminar la carga, la membrana deja de ser una barrera. La molécula reducida difunde fácilmente a través de ella y, una vez dentro de un compartimento más oxidante, puede volver a perder electrones y regresar a la forma azul, cargada y atrapada. La química redox del colorante es, por tanto, también su mecanismo de transporte. Cambiar la cantidad de electrones cambia la permeabilidad.
Los electrones para el primer paso proceden de la propia célula. Las células de mamífero transportan electrones a través de la membrana plasmática, desplazando equivalentes reductores desde donadores intracelulares hacia aceptores en la superficie. Esta actividad transmembrana de transferencia de electrones es una función celular normal, presente en la mayoría de tipos celulares, y la reductasa de superficie endotelial que procesa colorantes de tipo tiazina se comporta como otras en un aspecto revelador: continúa funcionando en presencia de cianuro y azida a concentraciones que bloquean los pasos posteriores. Esa separación es el punto central de toda la historia.
La partición fue primero y casi explicó la captación
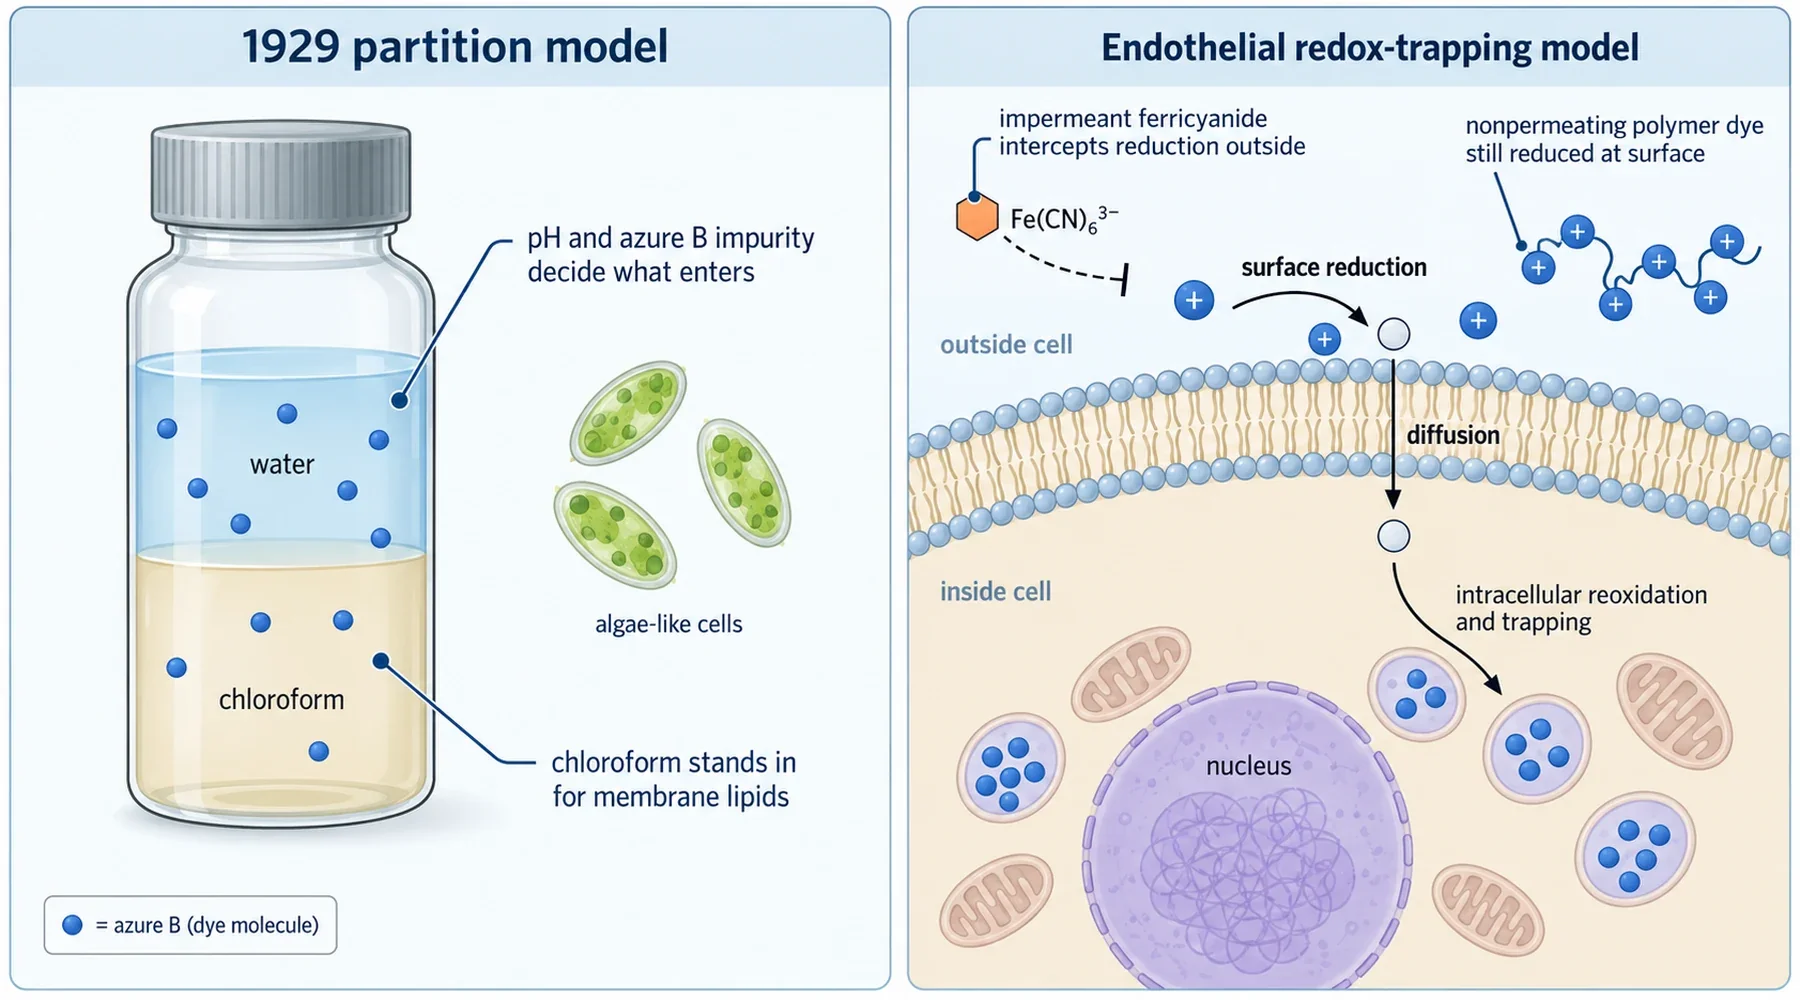
En 1929, Marian Irwin del Instituto Rockefeller planteó una pregunta más sencilla. Quizá la entrada del colorante es simplemente una partición entre agua y las capas grasas de la célula, y una capa de cloroformo puede representar esas capas grasas en el laboratorio. Sus estudios espectrofotométricos de penetración agitaron soluciones acuosas de colorante con cloroformo y compararon lo que pasaba a la fase orgánica con lo que entraba en algas vivas.
Dos hallazgos de ese trabajo todavía merecen atención. Primero, las soluciones comerciales de azul de metileno contenían trimetiltionina, ahora llamada azure B, y la impureza penetraba más rápido que el propio azul de metileno, especialmente a pH alcalino donde domina la forma de base libre soluble en lípidos. Parte de la aparente entrada de azul de metileno era en realidad entrada selectiva de azure B. Segundo, el pH determinaba el resultado al establecer el estado de ionización, y las células dañadas admitían mucho más colorante que las intactas. Los coeficientes de partición y el estado de carga determinaban lo que absorbían tanto el sistema artificial como la célula viva, y la semejanza entre ambos respaldaba la idea de capas no acuosas en la frontera celular.
El modelo anticipó correctamente el papel de los lípidos y la ionización, pero no podía distinguir entre un colorante que se particiona como tal y un colorante que se convierte químicamente en la superficie, atraviesa de forma oculta y vuelve a convertirse en el interior. Esa distinción necesitaba otro experimento, y llegó setenta años después en el endotelio pulmonar.
Reducción fuera, atrapamiento dentro
Merker y sus colaboradores trabajaron con células endoteliales de arteria pulmonar bovina cultivadas y propusieron una secuencia de tres pasos: el colorante oxidado se reduce en la superficie celular a su forma incolora lipofílica, la forma reducida difunde hacia dentro y la reoxidación intracelular regenera la forma oxidada impermeable a la membrana, que se acumula. Su estudio de captación de tiazinas en endotelio puso a prueba la secuencia intentando interrumpirla en puntos específicos.
La primera herramienta fue el ferricianuro, un aceptor de electrones que no puede entrar en la célula. Cuando las enzimas superficiales reducen el colorante azul a su forma incolora fuera de la célula, el ferricianuro puede recuperar esos electrones, regenerando el colorante azul en el medio antes de que atraviese. Mientras el ferricianuro estuvo presente en exceso (10 micromolar de colorante frente a 50 a 500 micromolar de ferricianuro), la captación del colorante casi se detuvo, y solo después de que el ferricianuro se consumiera la captación volvió a su velocidad normal. La cinética contó la misma historia de una segunda manera. El ferricianuro desapareció a una velocidad aproximadamente constante, consistente con un flujo estable de reducción superficial que alimentaba un mediador reciclable, mientras que el colorante extracelular desaparecía exponencialmente al agotarse su reserva. Un flujo constante más una reserva que se agota significa que la señal del ferricianuro informa sobre una reducción continua, no sobre moléculas de colorante abandonando la solución.
La segunda herramienta eliminó completamente el paso de cruce. El grupo unió toluidina azul O, una tiazina relacionada estrechamente, a una gran cadena de poliacrilamida demasiado grande para entrar en la célula en cualquiera de sus estados de oxidación. Las células todavía reducían el colorante unido. Por tanto, la reducción no necesita acceso intracelular. La maquinaria está expuesta en la superficie o acoplada eléctricamente a ella.
Después llegó la separación que da título al artículo. El cianuro y la azida a 2 milimolar redujeron fuertemente la acumulación del colorante, y bajo el microscopio las inclusiones azul oscuro y púrpuras que normalmente rodean el núcleo casi desaparecieron. Sin embargo, ninguno de los inhibidores ralentizó la reducción extracelular: el ciclo del ferricianuro continuó sin cambios y el colorante polimérico no permeable siguió siendo reducido. El bloqueo estaba en una etapa posterior. El cianuro y la azida detenían la reoxidación y el secuestro intracelulares, no la reducción superficial. Los controles de viabilidad respaldaron esta interpretación, ya que las células conservaron su enzima marcadora citosólica lactato deshidrogenasa durante estos tratamientos, por lo que la pérdida de captación no era simplemente intoxicación o ruptura de la membrana.
Una precaución del artículo sigue siendo válida. Las inclusiones azules se encontraban alrededor del núcleo pero no dentro de él, consistente con oxidación dentro de orgánulos subcelulares, pero el estudio no identificó cuáles eran esos orgánulos. Patrones similares en otros tipos celulares se habían denominado lisosomales con evidencia limitada. Considere el atrapamiento como establecido y la ubicación como provisional. Los lectores interesados en dónde van los electrones después pueden continuar con el transporte electrónico mitocondrial y el manejo redox y la visión general de absorción y distribución según la vía.
La tinción no es exposición
Un tercer estudio muestra qué ocurre cuando esta lógica de captación se combina con una lectura biológica. Scott y sus colaboradores encontraron que la metil beta ciclodextrina, un toroide de azúcar con forma de anillo, se une directamente al azul de metileno, con una constante de asociación de alrededor de 310 por molar para el complejo de inclusión frente a aproximadamente 5846 por molar para la dimerización del colorante. En fibroblastos L929 esta unión bloqueó tanto la tinción celular como la estimulación de la captación de glucosa: la preincubación con la ciclodextrina evitó la tinción azul y su adición posterior aceleró la pérdida de color. A medida que la señal óptica azul abandonaba las células, el transporte de glucosa activado disminuía en paralelo estrecho.
Los autores interpretaron esta correlación como favorable a una interacción directa entre el colorante y una proteína de la vía de activación del transportador de glucosa frente a un mecanismo prolongado de estrés oxidativo. Esa inferencia es razonable, pero limitada. El experimento no identifica la proteína, no demuestra unión al propio transportador y la correlación entre pérdida de tinción y pérdida de efecto no puede excluir todas las rutas mediadas por redox.
La lección duradera se refiere a la medición. La tinción óptica informa sobre colorante visible, oxidado y asociado a la célula. Omite por completo la reserva reducida incolora, por lo que una célula pálida todavía puede contener equivalentes de colorante, y una célula intensamente teñida informa sobre colorante oxidado atrapado, no sobre exposición tisular total ni magnitud del efecto. La misma precaución se amplía a otros contextos: comparar tinciones entre tipos celulares o tratar una sección tisular oscura como prueba de una mayor exposición repite el error original del cultivo. La captación es un ciclo de reducción, difusión y reoxidación, y cualquier instantánea única de la forma azul solo observa una parte del proceso. Las consecuencias prácticas para la tinción y manipulación en laboratorio y para interpretar afirmaciones sobre dosis y exposición se derivan directamente.