
Článek
Experimenty, které propojily methylenovou modř s buněčným dýcháním
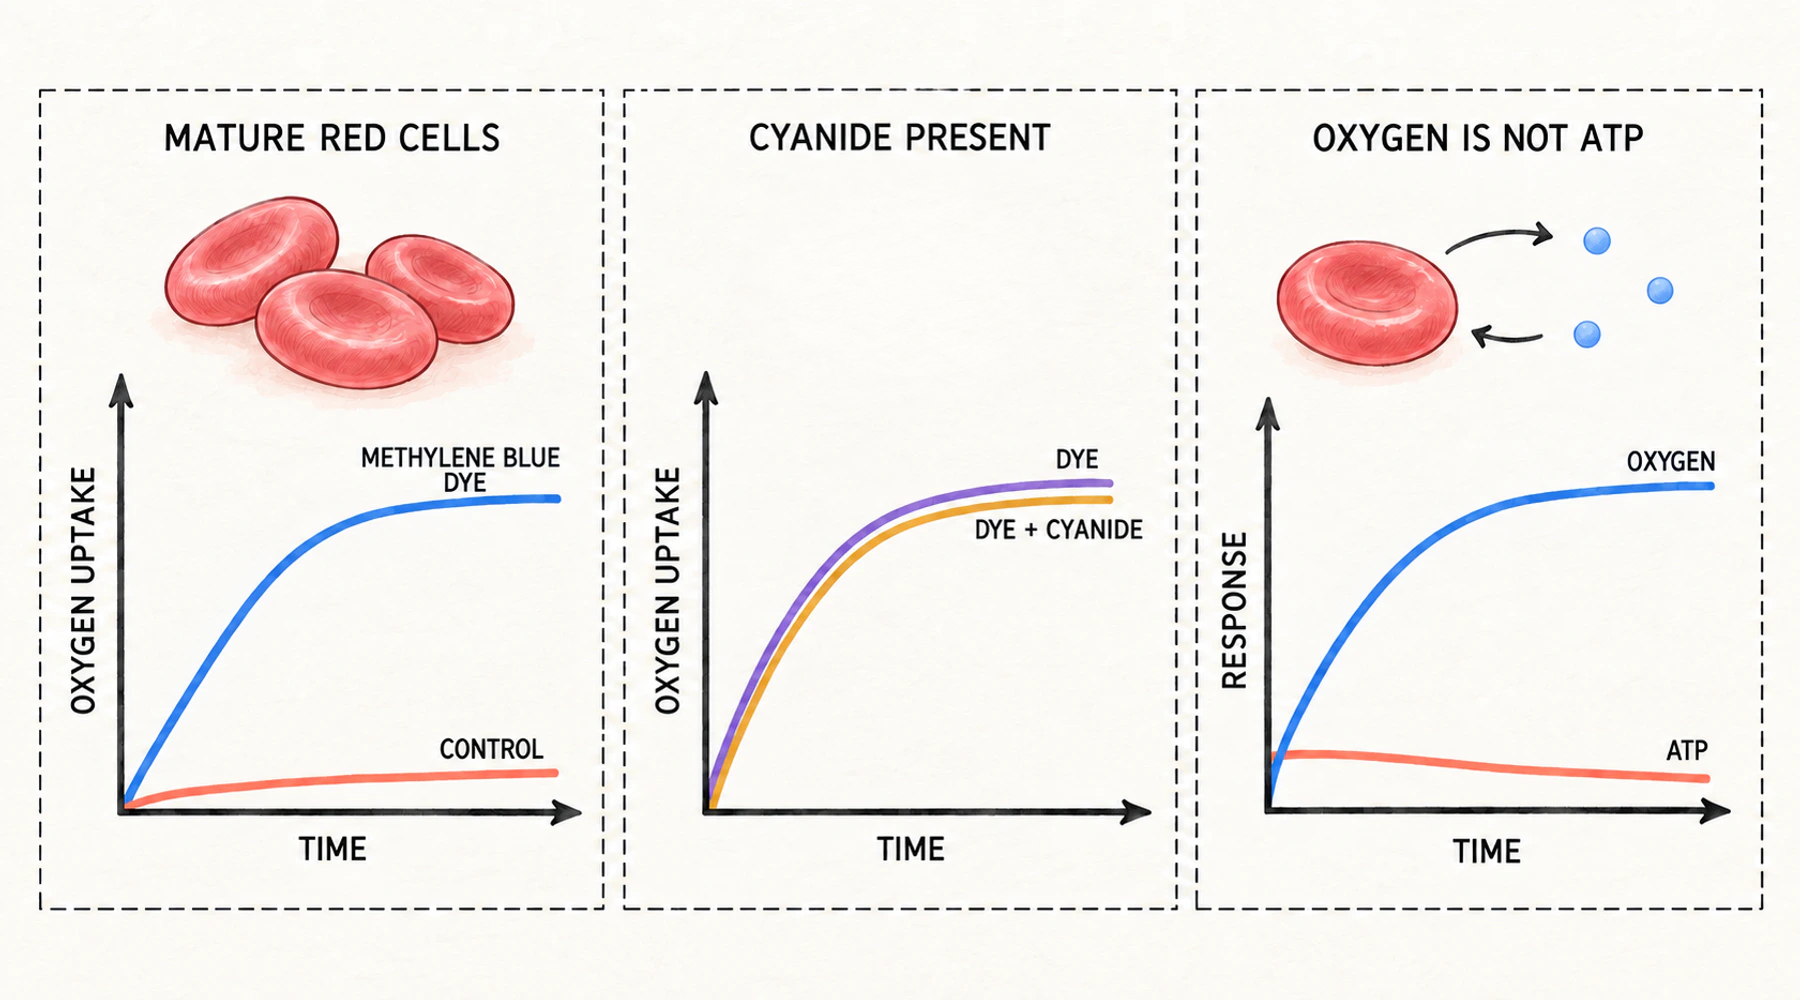
Defibrinovaná lidská krev zahřívaná po dobu tří hodin na 37 °C spotřebuje přibližně dvě procenta kyslíku, který obsahuje. Přidáte-li před inkubací malé množství methylenové modři, stejná krev spotřebuje přibližně šedesát pět procent. Na buňkách se nic nezměnilo. Změnil se pouze roztok.
Tento údaj pochází z článku George Harropa a E. S. Guzmana Barrona z Johns Hopkins z roku 1928 a stojí u zrodu často opakovaného tvrzení, že methylenová modř zlepšuje buněčné dýchání. Toto tvrzení není nepravdivé, ale jeho platnost je užší, než se zdá.
Co číslo v tabulce skutečně měří
Sledovanou veličinou byla spotřeba kyslíku stanovená analýzou plynů. Harrop a Barron filtrovali čerstvě odebranou krev přes vatu při 10 °C, aby odstranili bílé krvinky, nasytili vzorek kyslíkem, rozdělili jej, do jedné části přidali barvivo a po inkubaci obě části analyzovali. Počty leukocytů jen zřídka přesahovaly přibližně tisíc na krychlový milimetr. Spotřeba kyslíku byla uváděna jako podíl původního obsahu kyslíku ve vzorku, který vymizel.
Měřili také oxid uhličitý, ale zde jim metoda kladla překážky. Defibrinovaná krev během první hodiny inkubace uvolňovala až dva milimoly oxidu uhličitého na 100 mL z důvodů nesouvisejících se zkoumanou reakcí, takže respirační kvocienty z plné krve byly nepoužitelné. Interpretovatelné hodnoty poskytly pouze promyté buňky v Lockeově roztoku a ty se s barvivem i bez něj pohybovaly mezi 0.73 a 0.80.
Tento detail není nepodstatný. „Dýchání“ v těchto článcích znamená výměnu plynů v uzavřené nádobě. Rozdíl mezi spotřebou kyslíku a využitelnou energetickou produkcí samostatně rozebírá článek co vám spotřeba kyslíku říká a neříká o ATP.
Barvivo přidalo nejvíce tam, kde buňky dýchaly nejméně
Zralé savčí erytrocyty nemají téměř žádnou měřitelnou spotřebu kyslíku. Ptačí erytrocyty s jádrem ji mají. Harrop a Barron zkoumali oba typy a tento kontrast tvoří základ jejich argumentace.
U savčích vzorků barvivo vyvolalo dvacetinásobné až padesátinásobné zvýšení. V husí krvi, jejíž buňky již dýchaly, rychlost nikdy nevzrostla více než na dvojnásobek. Čím vyšší bylo výchozí dýchání, tím méně mohlo barvivo přidat.
Stejný vztah se projevuje i v rámci jednoho druhu. Lidský vzorek od pacienta s pravou polycytémií, obsahující nezralé buňky, spotřeboval bez barviva 11.3 procenta svého kyslíku oproti 2.8 procenta u promytých buněk zdravého dárce. Barvivo tuto hodnotu zvýšilo pouze na 63.4 procenta: šlo o šestinásobné zrychlení, zatímco u normálních buněk bylo zrychlení téměř třicetinásobné. Barvivo posunulo chování zralých buněk směrem k chování nezralých, což odpovídalo tomu, jak jeho působení popsali autoři.
Kyanid to měl zastavit
Bylo známo, že kyanid zastavuje buněčnou oxidaci. Harrop a Barron jej přesto přidali společně s barvivem.
Výsledky s hovězí krví jsou reprezentativní. Bez jakýchkoli přísad klesl obsah kyslíku během tří hodin z 22.61 na 22.03 objemových procent. S methylenovou modří klesl na 12.84. S methylenovou modří a kyanidem draselným v koncentraci jedné pětitisíciny molu na litr klesl na 12.74. Účinek barviva zůstal v podstatě nedotčen.
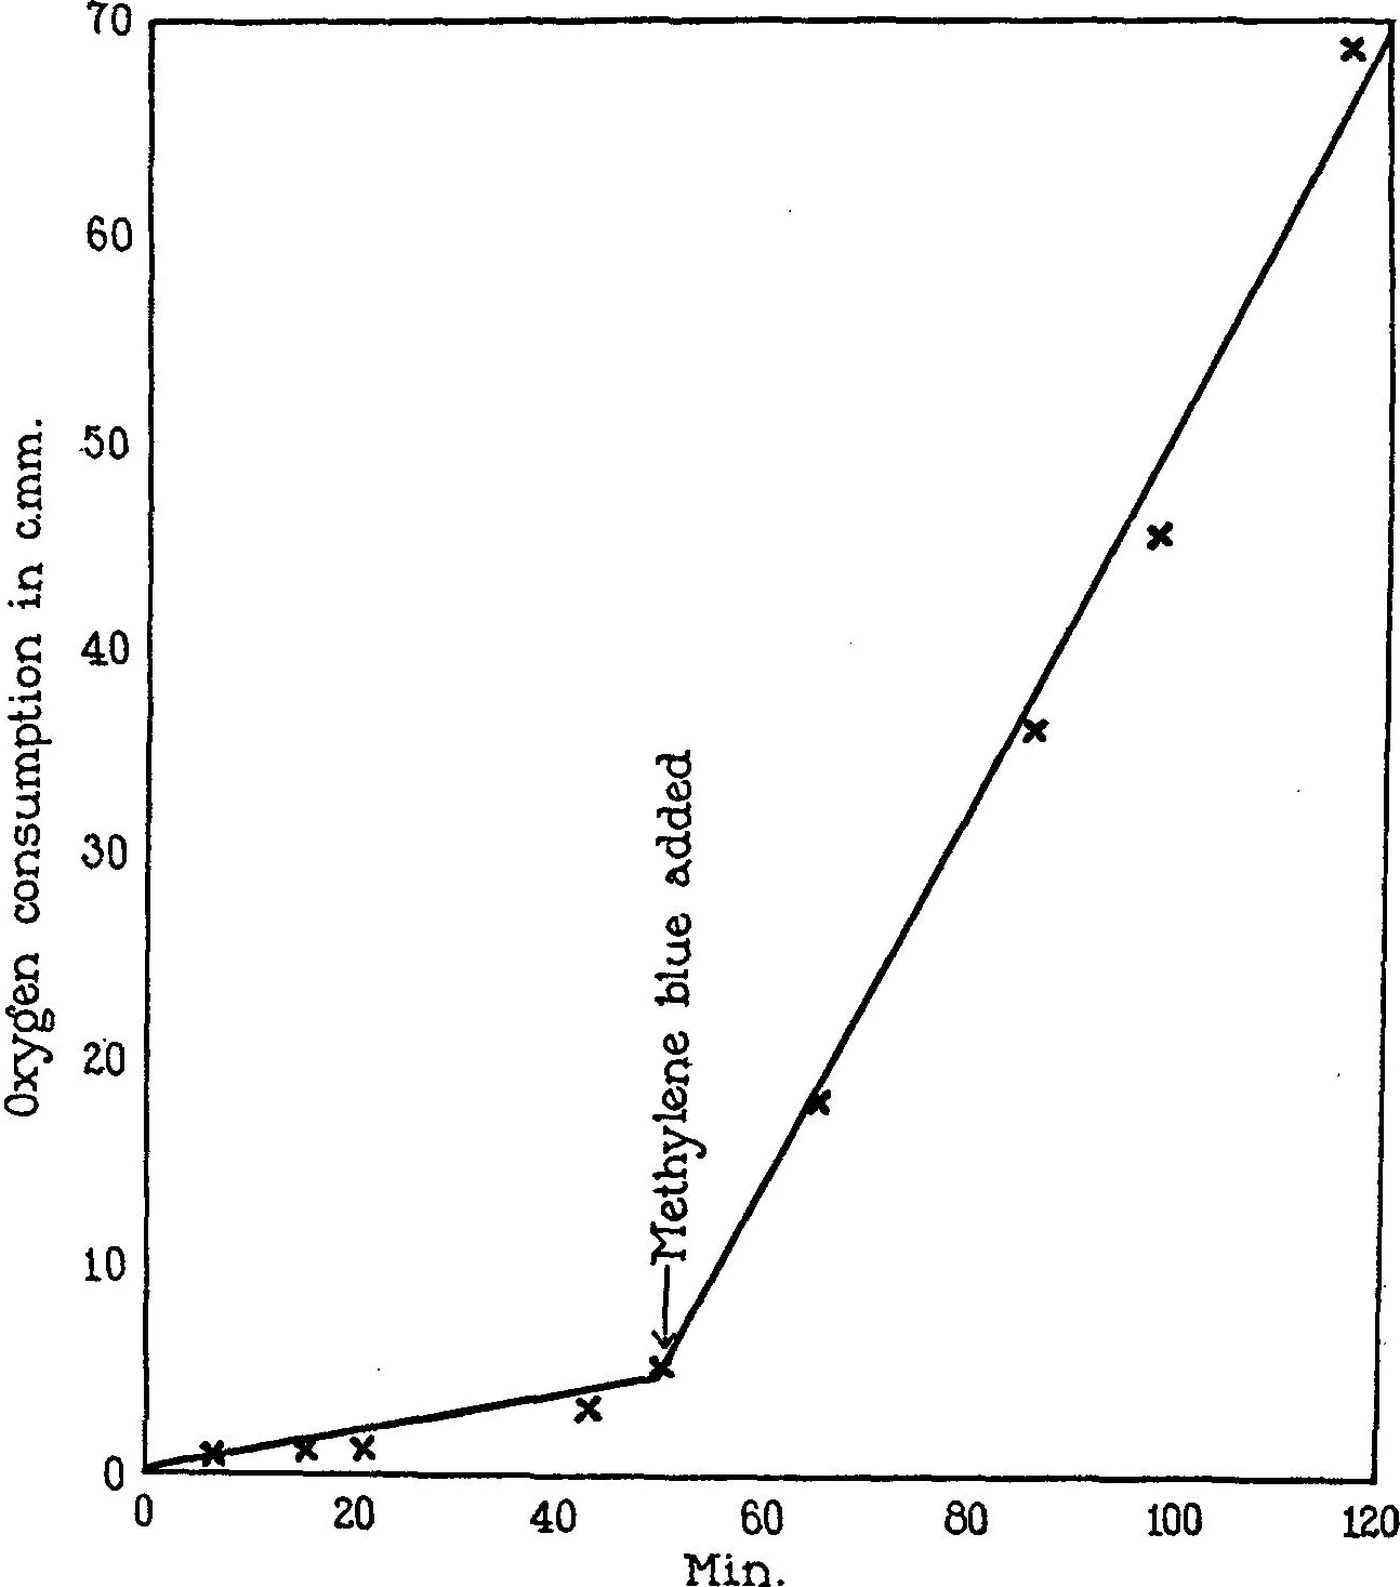
Obrázek: souvislý mikrorespirometrický záznam lidských erytrocytů. Šipka označuje přidání methylenové modři. Před ním je křivka téměř vodorovná; poté soustavně stoupá. Převzato z práce Harropa a Barrona, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Dospěli k závěru, že barvivo působí jako přenašeč kyslíku, který „dodává látku, jež z bezjaderných erytrocytů dospělých savců vymizela“. O dva roky později Michaelis a Salomon z Rockefellerova institutu formulovali tento rozpor způsobem, který přetrval. Buď byl účinek barviva „náhodnou vlastností barviva“, nebo bylo barvivo „modelem nějaké neznámé látky v organismech“. Mezi těmito možnostmi stále není rozhodnuto. Změnilo se však to, že dnes lze buňky popsat mnohem přesněji.
Jaterní extrakt dělal totéž
Michaelis a Salomon ukázali, že extrakty orgánů připravené studenou vodou vyvolávají stejnou stimulaci. Nejsilnější účinek měla potkaní játra, následovaná ledvinou, slezinou a varletem. Mozek, sval a krevní sérum měly malý nebo žádný účinek.
Poté zkoumali extrakt za přítomnosti oxidu uhelnatého. Dýchání vyvolané extraktem nebo barvivem se ve směsi 98 procent oxidu uhelnatého a 2 procent kyslíku nezměnilo. Stejná směs plynů potlačila dýchání kvasinek a jaderných erytrocytů drůbeže přibližně o 60 až 80 procent, v souladu s Warburgovým popisem respiračního enzymu citlivého na oxid uhelnatý. Neidentifikovaná tkáňová látka tedy nebyla Warburgovým enzymem.
Postupně bylo vyloučeno několik kandidátů na její totožnost. Redukovaný glutathion a cystein vyvolaly pouze spotřebu kyslíku nutnou pro jejich vlastní oxidaci. Hardenův a Youngův koenzym byl vyloučen, protože sval jej obsahuje nejvíce, ale vykazoval téměř nejslabší účinek. Keilinův cytochrom, pojmenovaný o několik let dříve, narazil na stejný rozpor. Svůj vlastní návrh, že účinná látka pochází z buněčného jádra, označili za pouhou domněnku.
Účinek měl své podmínky
Buňky musely zůstat neporušené. Hemolýza destilovanou vodou nebo opakovaným zmrazováním odstranila reakci na barvivo i na extrakt a částečná hemolýza ji úměrně snížila.
Nutný byl také cukr. Glukóza, fruktóza a sacharóza podporovaly dýchání vyvolané barvivem; mannitol nikoli. Bez cukru neprobíhalo vůbec žádné dýchání a zdálo se, že barvivo při tom buňky poškozuje, takže glukóza přidaná o jednu nebo dvě hodiny později je neobnovila. Autoři vyslovili domněnku, že barvivo oxiduje strukturní složku, kterou buňka potřebuje.
Osvětlení účinek barviva výrazně zvýšilo, přestože byl zřetelný i ve tmě. Jiná redukovatelná barviva se chovala odlišně: toluylenová modř se methylenové modři vyrovnala nebo ji překonala, zatímco indigodisulfonát nedělal téměř nic. Mezi oxidačně-redukčním potenciálem barviva a velikostí jeho účinku se neukázal žádný jednoznačný vztah, což autoři připisovali propustnosti membrán a toxicitě.
Účinek souvisel s fermentací, nikoli s dýcháním
Barronova studie z roku 1930 přešla od buněčných suspenzí k tkáňovým řezům normálních potkaních orgánů a transplantovaných nádorů.
Ve tkáních bez aerobní glykolýzy methylenová modř neměla žádný účinek nebo spotřebu kyslíku mírně potlačovala: v ledvině přibližně o 14 procent, ve slinivce přibližně o 14 procent a v játrech přibližně o 5 procent. Ve tkáních, které fermentují za přítomnosti kyslíku, spotřebu zvyšovala: ve slezině přibližně o 8 procent a v mozku přibližně o 13 procent. U nádorů se zvýšení pohybovalo od přibližně 27 procent u lidského karcinomu prsu po více než 80 procent u Rousova sarkomu kuřete, zhruba úměrně aerobní glykolýze jednotlivých tkání.
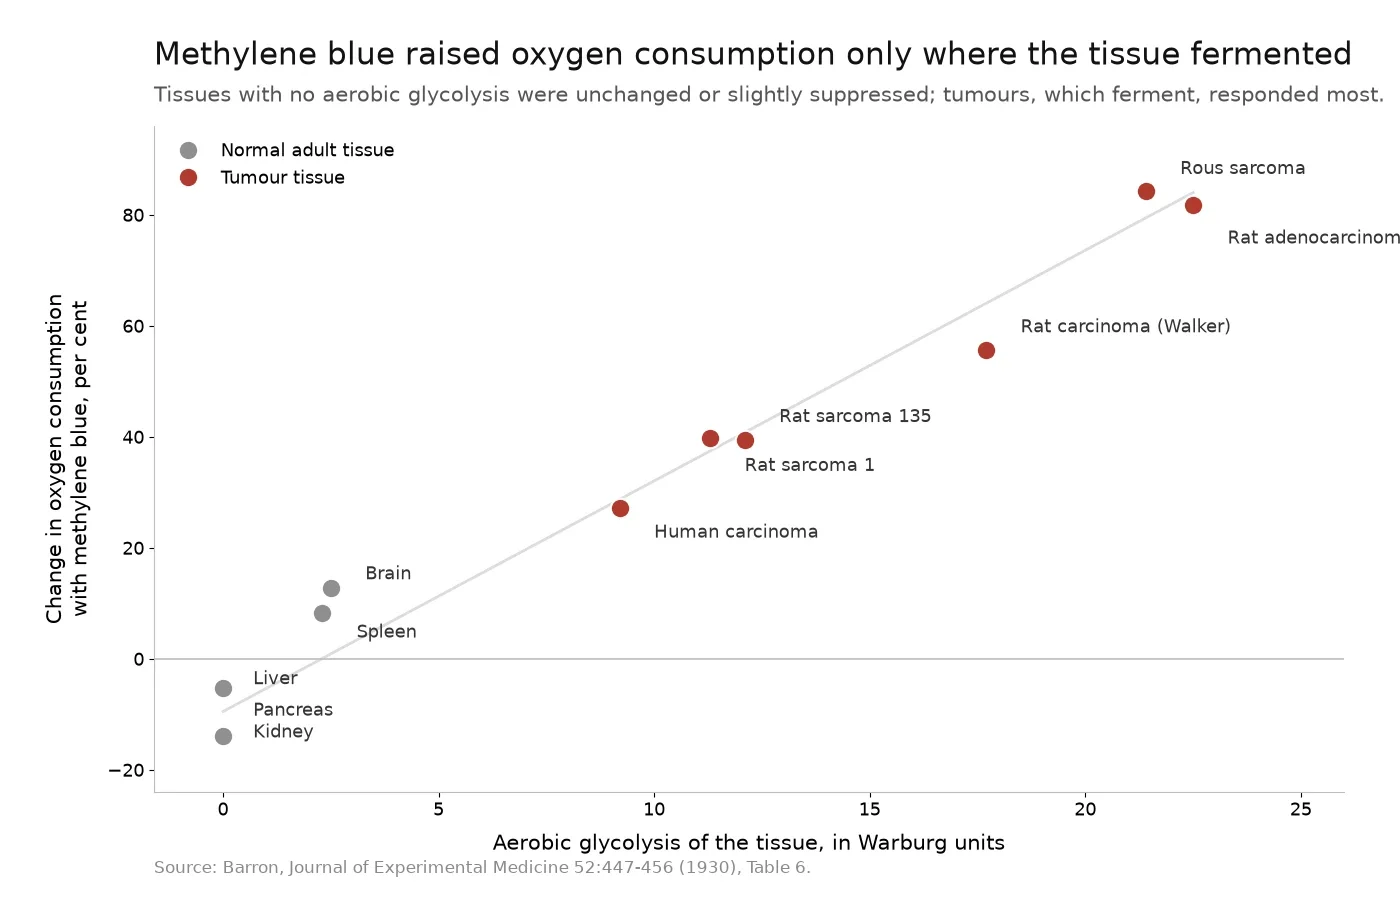
Obrázek: každý bod představuje jeden typ tkáně. Vodorovná osa znázorňuje aerobní glykolýzu; svislá osa změnu spotřeby kyslíku po přidání methylenové modři. Data z práce Barrona, Journal of Experimental Medicine 52:447–456 (1930), tabulka 6, PMID 19869777.
Experiment s kyanidem pak přinesl zrcadlově obrácený výsledek. Když bylo dýchání v těchto dříve nereagujících tkáních zablokováno kyanidem a projevila se fermentace, barvivo opět zvýšilo spotřebu kyslíku: v ledvině přibližně o 59 procent, v játrech přibližně o 19 procent, ve slezině přibližně o 286 procent a ve varleti přibližně o 200 procent.
Barron navrhl, že by barvivo mohlo sloužit jako test fermentační schopnosti buňky nebo tkáně, a článek uzavřel spekulací: opakované generace nádorové kultury v médiu obsahujícím barvivo by jednou mohly trvale změnit metabolismus nádoru tak, aby se podobal metabolismu normální tkáně. To byla výzkumná otázka formulovaná v roce 1930. Není to tvrzení o léčbě.
Co tyto experimenty nemohly měřit
V letech 1928 a 1930 znamenalo „dýchání“ spotřebu kyslíku. Adenosintrifosfát byl poprvé popsán v roce 1929 a důkaz, že izolované mitochondrie esterifikují fosfát při přenosu elektronů, přišel v roce 1949. Žádná z raných prací o methylenové modři nemohla měřit produkci energie a žádná ani netvrdila, že ji měří.
Druhým problémem jsou samotné buňky. Zralé savčí erytrocyty neobsahují mitochondrie. Ve stadiu retikulocytu odstraňují mitochondrie a ribozomy selektivní autofagií, a proto zralá červená krvinka získává energii glykolýzou a na své pentózofosfátové dráze závisí především kvůli NADPH, nikoli ATP. V experimentech z roku 1928 nebyl přítomen žádný elektronový transportní řetězec, který by bylo možné opravit. Ať už kyslík spotřebovávalo cokoli, dělalo to něco jiného.
Co to bylo, je dnes poměrně dobře popsáno. Methylenová modř přijímá elektrony z buněčných redukčních ekvivalentů a mění se na leukomethylenovou modř, kterou molekulární kyslík znovu oxiduje, čímž se cyklus uzavírá. V lidských červených krvinkách provádějí redukční krok flavinreduktáza závislá na NADPH a příbuzné disulfidreduktázy. Studie z roku 1976 využívající značenou glukózu zjistila, že barvivo stimuluje hexózomonofosfátovou dráhu, že účinek při nízké koncentraci závisí na oxyhemoglobinu a že vyšší koncentrace, 0.1 mM, vytváří peroxid vodíku. Redukované barvivo při reakci s kyslíkem vytváří peroxid, nikoli fosfátové vazby.
V mitochondriích je situace spornější, než připouštějí populární shrnutí. Jeden směr výzkumu zastává názor, že barvivo přebírá elektrony z oblasti komplexu I a předává je cytochromu c. Jiná práce zjistila, že v mitochondriích myšího mozku nedokáže obnovit dýchání po blokádě antimycinem, a umístila akceptor elektronů místo toho do vazebného místa pro ubichinol v komplexu III. Třetí práce zjistila, že nízké koncentrace zvyšují klidovou spotřebu kyslíku, zatímco dýchání stimulované ADP zůstává nezměněné. Nejpřímější vyjádření tohoto závěru zní, že spotřeba kyslíku vyvolaná methylenovou modří vůbec nezávisí na oxidativní fosforylaci: přetrvávala při inhibici dýchacího řetězce i v preparátech, které jej neobsahovaly.
Existují také přímá měření rozdílu mezi těmito dvěma veličinami. V izolovaných mitochondriích potkaních jater zvyšující se koncentrace barviva snižovaly poměry respirační kontroly a způsobovaly bobtnání, které autoři popsali jako rozpojení oxidativní fosforylace. V perfundovaných potkaních játrech methylenová modř zvyšovala spotřebu kyslíku, zatímco poměr ATP k ADP klesal.
Klinické poznatky nesou stejné poselství. Methemoglobinémie se léčí přibližně jedním až dvěma miligramy methylenové modři na kilogram podanými nitrožilně prostřednictvím redukční dráhy závislé na NADPH a vyšší dávky způsobují stav, který má být léčen. Tentýž přehled uvádí, že antidotální účinek je největší v neporušených erytrocytech a při hemolýze je oslabený. Nález týkající se hemolýzy z roku 1930 se tak o sedmdesát tři let později znovu objevuje v nemocničním kontextu. U látky, jejíž prospěšné a škodlivé účinky leží na opačných stranách dávkového prahu, nelze dávku odvozovat z měření spotřeby kyslíku.
Proč do diskuse patří i konkrétní šarže
Harrop a Barron si všimli něčeho, co stojí za druhé přečtení. Samotná methylenová modř vytváří ve spektroskopu pás mezi dvěma charakteristickými pásy methemoglobinu, „což může při zběžném pozorování snadno vést k záměně“. Barvivo může napodobovat hledanou látku.
Tentýž problém má i chemickou podobu. Příbuzný fenothiazin přítomný jako minoritní složka má své vlastní redoxní chování, svou vlastní propustnost a svou vlastní toxicitu. Jeden zdokumentovaný případ ukazuje konkrétní důsledky: ve studii jodace methylenové modři vytvářely vzorky obsahující přibližně 7 až 8 procent Azure B převážně jodovaný Azure B, takže v reakci dominovala nečistota, nikoli methylenová modř.
Každý, kdo používá methylenovou modř jako činidlo v laboratoři, na pracovišti pro barvení preparátů nebo v akváriu, pracuje s blíže neurčenou složkou, pokud daná šarže nebyla charakterizována. Příbuzné látky, identita, elementární nečistoty, zbytková rozpouštědla a zbytek po žíhání jsou součástí experimentu, nikoli jen související administrativou. Blupreme získává methylenovou modř od farmaceutického výrobce a zveřejňuje úplný certifikát analýzy, přičemž testuje celou specifikaci USP, nikoli pouze těžké kovy; průvodce čtením certifikátu analýzy a článek co označení jakosti USP dokládá a co nikoli vysvětlují, jak ověřit, zda dokument odpovídá tvrzení.
Číslo bylo správné
Experimenty z let 1928 a 1930 byly pečlivé a jejich hlavní pozorování obstálo: redukovatelné barvivo může přimět buňku, která téměř nedýchá, aby spotřebovávala kyslík mnohonásobně rychleji než v klidu, aniž by procházela krokem, který blokuje kyanid.
Chyba se objevuje později, když se „dýchání“ vykládá v jeho dnešním významu. Měření výměny plynů vám říká, že elektrony dorazily ke kyslíku. Neříká vám, že některé z nich byly využity k tvorbě ATP, a v buňce bez mitochondrií je rozdíl mezi těmito dvěma tvrzeními největší možný. Širší přehled toho, co methylenová modř dělá v buňkách zasazuje stejné rozlišení do širšího rámce a historie této látky od barviva k léčivu vysvětluje, jak se textilní barvivo k těmto experimentům vůbec dostalo.