
Artigo
Azul de metileno como antioxidante e pró-oxidante: o que altera o resultado?
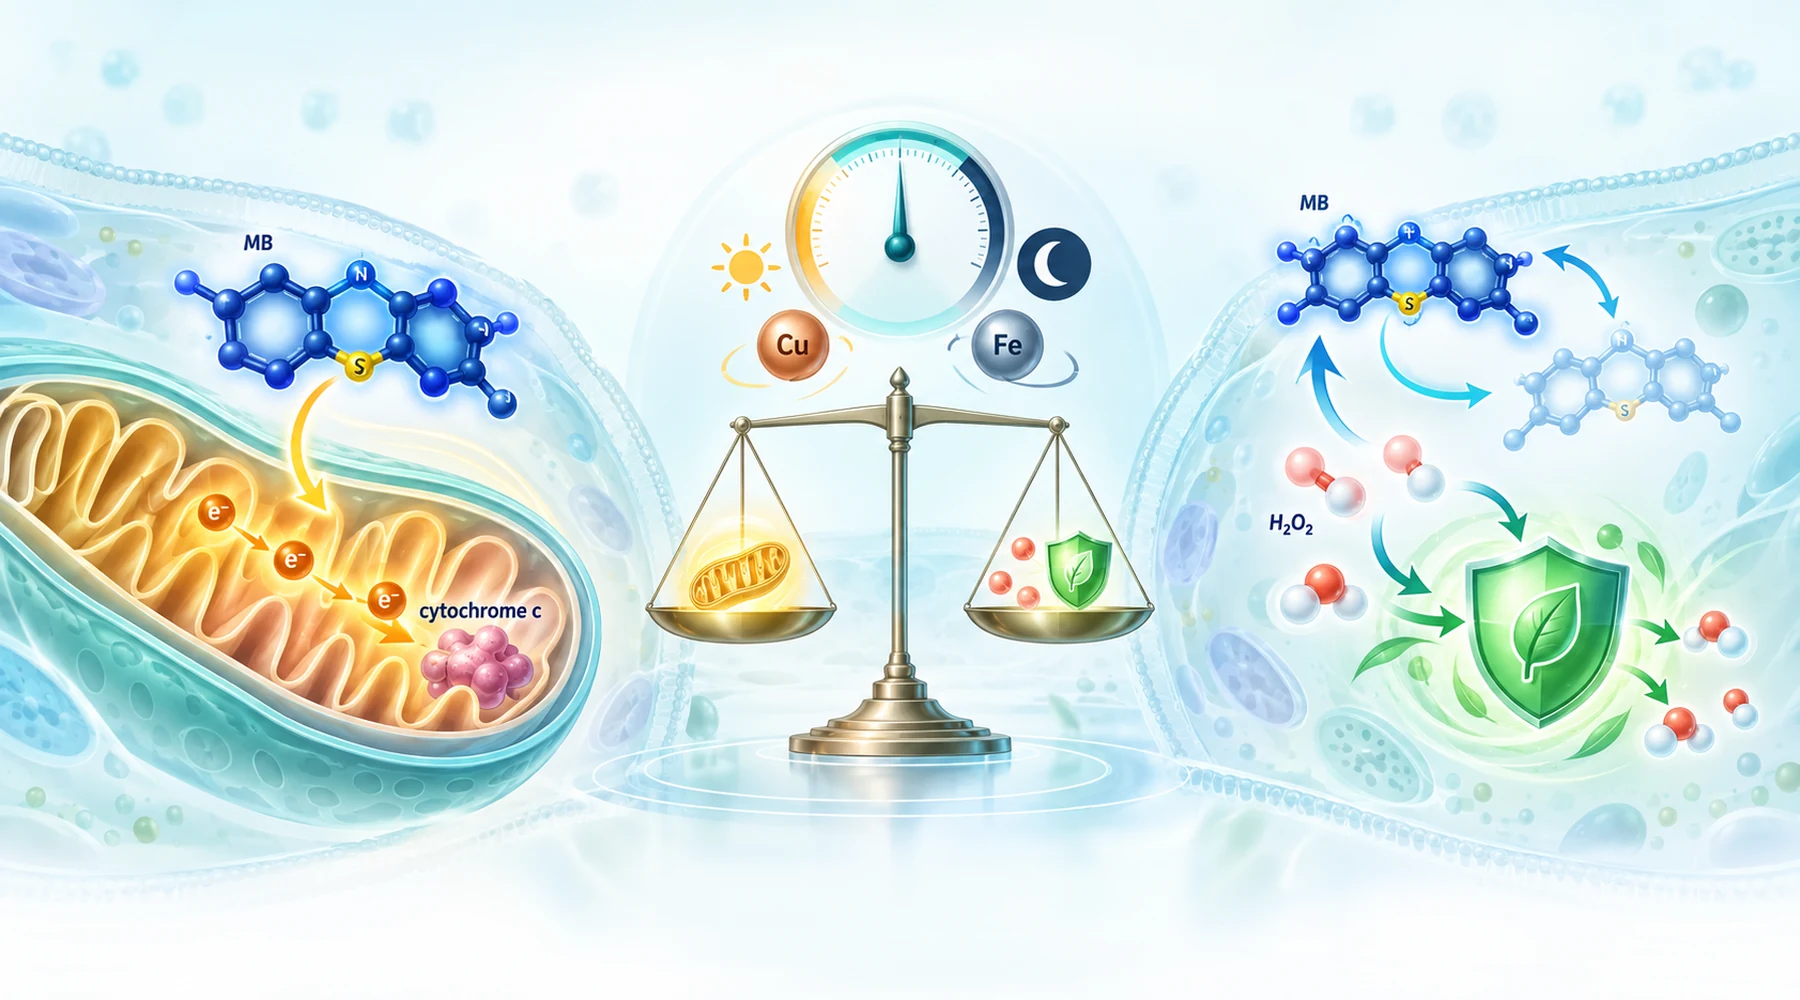
Suponha que dois laboratórios testam o mesmo corante azul e apresentam resultados opostos. No primeiro, mitocôndrias cerebrais isoladas respiram melhor e produzem mais ATP. No segundo, a mesma preparação liberta muito mais peróxido de hidrogénio. Ambos os resultados estão corretos. Descrevem o mesmo ciclo visto a partir de duas extremidades, e a confusão começa quando os leitores tratam uma delas como se fosse a história completa.
O erro está em perguntar qual o rótulo que melhor se aplica à molécula. O azul de metileno funciona como um intermediário para eletrões, como mostra, num contexto mais amplo, o mapa dos seus alvos na biologia celular. O corante oxidado aceita eletrões e transforma-se em leucoMB incolor. O leucoMB transfere esses eletrões e volta a ficar azul. O que se observa depende de quem fornece os eletrões, de quem os recebe e de o sistema conseguir ou não eliminar o peróxido de hidrogénio produzido pelo caminho. A pergunta relevante nunca é se o corante é um antioxidante. É o que as condições permitem que este intermediário faça.
O ciclo que produz as duas faces
No escuro, o ciclo principal é curto. NADH, NADPH ou transportadores da cadeia respiratória reduzem o corante. O corante reduzido tem depois vias de saída concorrentes. Pode transferir eletrões para o citocromo c e sustentar o fluxo contornando um complexo danificado, razão pela qual a respiração e o potencial de membrana recuperam parcialmente durante o bloqueio dos complexos I ou III. Ou pode transferir eletrões diretamente para o oxigénio, regenerando a forma azul e produzindo peróxido de hidrogénio. Como o corante é regenerado, uma pequena quantidade pode repetir este ciclo muitas vezes, consumindo continuamente equivalentes redutores e produzindo continuamente peróxido.
Dois outros ramos alteram completamente a química. O cobre ou o ferro livres convertem esse peróxido difusível em oxidantes locais muito mais destrutivos através de reações do tipo Fenton. A luz vermelha abre um ramo fotoquímico separado, no qual o corante excitado transfere energia para o oxigénio e produz oxigénio singleto, uma espécie abordada em detalhe na explicação da fotoquímica de tipo I e tipo II. A ciclagem redox no escuro, os danos amplificados por metais e os danos fotodinâmicos são três mecanismos diferentes que partilham apenas a mesma molécula inicial.
Matriz de condições e resultados
A tabela abaixo é o elemento a reter. Cada linha apresenta uma variável, a direção em que esta influencia o resultado e a experiência que a sustenta. Positivo significa uma leitura protetora ou melhorada. Adverso significa mais oxidante, maior depleção ou mais danos.
| Condição | Direção do resultado | O que a experiência mostrou |
|---|---|---|
| Baixa concentração, 0.1 to 1 uM, mitocôndrias isoladas | Bioenergética positiva mais peróxido mais elevado | 0.1 uM melhorou o consumo de oxigénio em mitocôndrias cardíacas de ratos saudáveis e diabéticos; 100 nM to 1 uM restaurou parcialmente ATP, potencial de membrana e captação de cálcio em mitocôndrias cerebrais bloqueadas, enquanto a libertação de peróxido aumentou em todas as condições |
| Concentração mais elevada, above 5 uM, células privadas de glicose | Sinal oxidante adverso | Células endoteliais oxidaram uma sonda geral de ROS e perderam glutationa reduzida above 5 uM na ausência de glicose; a adição de glicose evitou ambos os efeitos |
| Substratos do complexo I (glutamato mais malato) | Mais peróxido | Tanto os estudos com mitocôndrias cerebrais como cardíacas encontraram maior libertação de peróxido com substratos ligados ao NADH |
| Succinato mais rotenona, mitocôndrias cardíacas, 0.1 uM | Menos peróxido nesse protocolo | A única leitura de peróxido claramente antioxidante no conjunto; note-se que o protocolo incluía rotenona e um tecido diferente, pelo que o substrato, por si só, não explica o resultado |
| Luz vermelha, 20 uM mais 630 nm | Danos adversos no DNA | Nenhuma lesão significativa no DNA mitocondrial no escuro a 20 uM; a mesma concentração com luz vermelha danificou todos os fragmentos testados |
| Concentração muito elevada no escuro, 100 uM | Danos seletivos adversos no DNA | Lesões seletivas no DNA mitocondrial em sequências ricas em purinas, uma mudança acentuada face ao sinal de peróxido na gama nanomolar |
| Cobre ou ferro mais NADH, DNA sem células | Lesões oxidativas adversas | O cobre direcionou os danos para uma sequência hotspot de p53; ferro EDTA causou danos generalizados; catalase e quelantes de metais bloquearam as respetivas vias; a guanina oxidada aumentou |
| Glicose presente, células intactas | Efeito tampão protetor apesar de ciclagem mais rápida | A glicose aumentou a redução do corante, mas diminuiu o stress líquido, de forma consistente com o fornecimento de NADPH pela via das pentoses-fosfato para reciclagem antioxidante |
| Células carregadas com ascorbato | Misto: ascorbato consumido, sinal da sonda atenuado | O corante oxidou progressivamente o ascorbato intracelular mesmo na presença de glicose, enquanto suprimiu parcialmente a oxidação da sonda; a reserva de defesa suportou o custo |
| Animais pré-tratados com rotenona, corante administrado primeiro | Resultado tecidular positivo | O pré-tratamento com o corante reduziu as lesões no DNA mitocondrial induzidas pela rotenona no mesencéfalo de ratinhos, apesar de aumentar o peróxido em mitocôndrias isoladas |
O padrão entre as várias linhas é o ponto essencial. A produção de peróxido e a proteção biológica são eixos separados. Um tratamento pode apresentar um resultado adverso no primeiro e positivo no segundo ao mesmo tempo.
Porque é que a mesma dose dá respostas diferentes
A concentração determina a capacidade de transporte, não o destino. A libertação de peróxido por mitocôndrias cerebrais aumentou de forma detetável a partir de 50 nM no trabalho com mitocôndrias cerebrais intactas, enquanto danos evidentes no DNA mitocondrial exigiram 100 uM no escuro. Trata-se de uma diferença de cerca de duas mil vezes entre o primeiro sinal e a genotoxicidade, mas não constitui uma margem de segurança. Os endpoints, compartimentos e tempos de exposição são diferentes, pelo que estes valores assinalam fenómenos distintos, e não pontos da mesma curva. A discussão sobre resposta à dose enquadra este tipo de diferença entre sinal baixo e danos elevados no contexto mais amplo da hormese.
O substrato determina onde entram os eletrões. Os combustíveis ligados ao NADH fornecem ao corante equivalentes redutores abundantes, tanto para o desvio útil como para a reação improdutiva com o oxigénio. A síntese frequentemente citada de que o succinato torna o corante antioxidante enquanto o glutamato o torna pró-oxidante vai além do que os dados demonstram, porque a condição de peróxido com succinato no estudo cardíaco também continha rotenona e utilizou um tecido e uma dose diferentes dos do trabalho cerebral que encontrou peróxido aumentado com todos os substratos e estados respiratórios.
A luz altera o mecanismo, não apenas a magnitude. O contraste mais claro do conjunto é 20 uM no escuro sem qualquer efeito detetável sobre fragmentos de DNA mitocondrial, enquanto 20 uM sob luz vermelha danificou todos eles. Comparar uma experiência iluminada com uma experiência no escuro é comparar fotoquímica com ciclagem redox.
Os metais convertem o oxidante. Sem metais, o ciclo do corante no escuro produz peróxido, uma molécula difusível que as células também utilizam como sinal. Com cobre ou ferro acessíveis, o corante reduzido por NADH alimenta a redução dos metais, e o metal reduzido ativa o peróxido, formando espécies do tipo hidroxilo ou cobre-peróxido junto ao DNA. Foi assim que trabalho sem células com NADH e iões metálicos produziu danos seletivos em hotspots e danos generalizados no DNA a partir do mesmo corante inicial. A forma como o compartimento gere os metais, e não apenas o corante, determina se este ramo é relevante.
O estado energético determina se a célula consegue suportar o custo. Em células endoteliais expostas a 2 to 20 uM do corante, a remoção da glicose revelou o custo oxidante, enquanto o fornecimento de glicose o eliminou, apesar de a glicose também acelerar a redução do corante. Uma ciclagem mais rápida com defesas devidamente alimentadas supera uma ciclagem mais lenta com defesas esgotadas. Qualquer alegação sobre oxidantes que omita o estado da glicose ou do NADPH deve ser considerada incompleta.
O tecido determina o equipamento biológico disponível. As células endoteliais regeneram NADPH através do metabolismo da glicose e dispõem de reservas antioxidantes citosólicas. As mitocôndrias isoladas não têm nada disso. O DNA purificado nem sequer dispõe de reparação. Um resultado obtido numa destas preparações diz pouco sobre as restantes, razão pela qual o artigo planeado sobre respostas específicas dos tecidos terá de manter estes sistemas separados.
A medição direta não é o mesmo que a defesa a jusante
Muitos textos fundem duas camadas que as experiências mantêm separadas. Uma pergunta quanto oxidante surgiu. A outra pergunta como respondeu a célula.
Os ensaios de peróxido do tipo Amplex são os que ficam mais próximos da primeira camada, e mesmo esses medem fluxo líquido, ou seja, produção menos destruição menos exportação. O estudo de mitocôndrias cerebrais encontrou alterações em ambos os lados: formou-se mais peróxido e a eliminação de um bolus de peróxido adicionado tornou-se mais lenta. Mais a jusante encontram-se a oxidação da glutationa, o consumo de ascorbato, a guanina oxidada e as lesões no DNA que bloqueiam a polimerase. Cada etapa acrescenta biologia entre o oxidante e a leitura.
As enzimas antioxidantes reguladas por Nrf2 e a biogénese mitocondrial pertencem à segunda camada. São programas adaptativos que um pulso ligeiro de peróxido pode desencadear, e os autores do estudo de proteção das mitocôndrias cerebrais propõem precisamente esse estímulo de stress ligeiro, observando ao mesmo tempo que a cadeia causal através de Nrf2 se baseia em trabalhos anteriores, e não numa demonstração completa realizada por eles próprios. Uma proteção que surge horas mais tarde através de novas proteínas não significa que a química inicial tenha sido antioxidante. Significa que um pequeno evento pró-oxidante desencadeou uma defesa maior. As salvaguardas necessárias para interpretar este tipo de alegação, incluindo os limites dos ensaios e as diferenças entre preparações, são abordadas no guia para interpretar investigação sobre azul de metileno.
Porque é que os ensaios discordam entre si
Uma sonda geral como a di-hidrofluoresceína mede a oxidação generalizada da sonda, não uma concentração de peróxido. Depende da química de peroxidases e do heme e pode não detetar um aumento de peróxido que um ensaio Amplex calibrado consegue captar. O estudo de mitocôndrias cerebrais observou um aumento acentuado do peróxido sem um sinal correspondente de superóxido, o que constitui um aviso contra a utilização de qualquer alegação antioxidante baseada numa única sonda. A sobreposição ótica é uma questão de controlo legítima, dado que o corante absorve luz visível próximo de bandas comuns de excitação e emissão, mas o estudo mais rigoroso calibrou o sinal com peróxido conhecido, reduziu a exposição à excitação com pouca alteração do sinal e confirmou uma eliminação mais lenta do peróxido com um elétrodo separado. A interferência é algo que deve ser controlado, não um motivo para rejeição automática.
O resultado relativo ao cálcio ilustra a mesma necessidade de precisão. O corante administrado de forma aguda não alterou a carga total de cálcio antes da transição de permeabilidade no estudo cardíaco, mas melhorou a velocidade de captação de cálcio em mitocôndrias cerebrais bloqueadas no estudo de mitocôndrias cardíacas centrado na diabetes. Endpoints diferentes, sistemas diferentes, nenhuma contradição.
Uma lista de verificação antes de aceitar uma conclusão
Trate qualquer conclusão de que algo é antioxidante ou pró-oxidante como um relatório sobre um sistema e faça cinco perguntas. A que concentração e em que compartimento. Com que dador de eletrões e que aceitador concorrente. Com luz ou no escuro, e com que comprimento de onda e dose. Que metais estão disponíveis e que reservas de combustível e antioxidantes estão abastecidas. E com que ensaio, medindo fluxo de oxidantes, danos ou resposta adaptativa. Altere uma única resposta e a mesma molécula pode deslocar-se na matriz de protetora para prejudicial sem qualquer paradoxo.