
Artikkel
Eksperimentene som knyttet metylenblått til cellerespirasjon
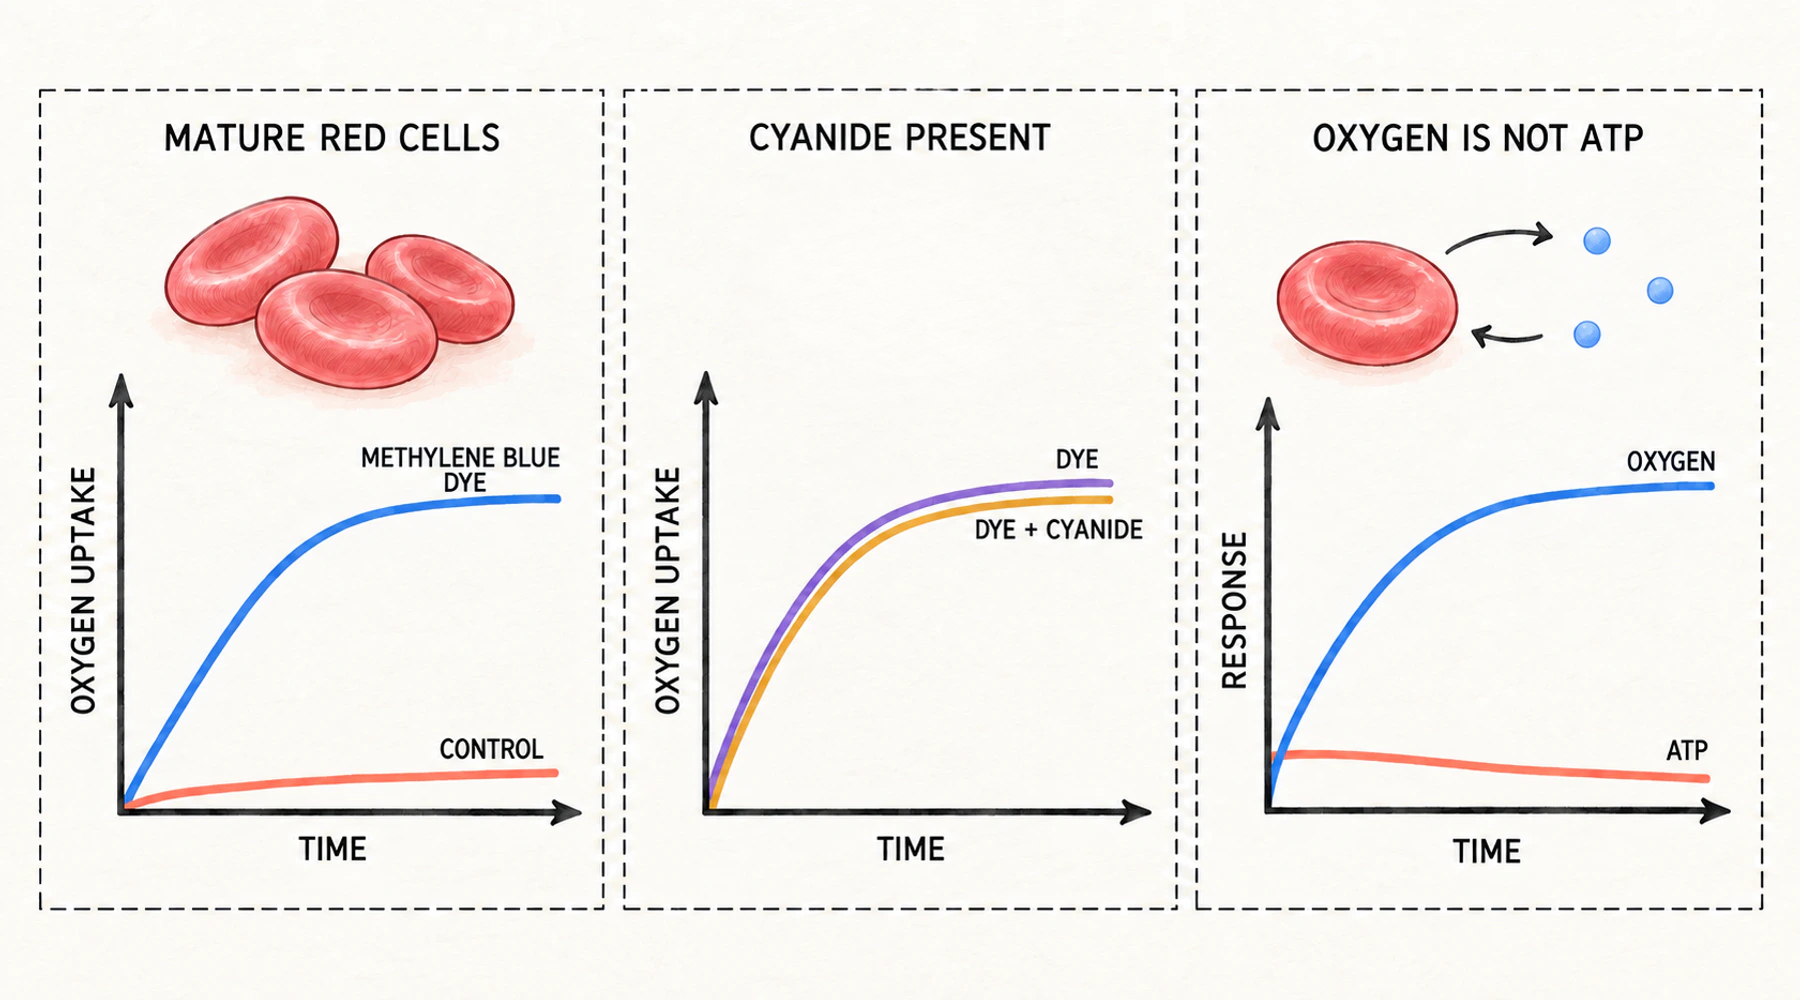
Defibrinert menneskeblod, varmet til 37 °C i tre timer, forbruker rundt to prosent av oksygenet det inneholder. Tilsett en liten mengde metylenblått før inkubasjonen, og det samme blodet forbruker rundt sekstifem prosent. Ingenting ved cellene endret seg. Bare løsningen gjorde det.
Dette tallet stammer fra en artikkel fra 1928 av George Harrop og E. S. Guzman Barron ved Johns Hopkins, og er opphavet til den ofte gjentatte påstanden om at metylenblått forbedrer cellerespirasjonen. Påstanden er ikke feil, men den betyr mindre enn den kan høres ut som.
Hva tallet i tabellen faktisk måler
Endepunktet var oksygenopptak, bestemt ved gassanalyse. Harrop og Barron filtrerte nytappet blod gjennom bomull ved 10 °C for å fjerne de hvite blodcellene, mettet prøven med oksygen, delte den, tilsatte fargestoff til én del og analyserte begge etter inkubasjon. Leukocyttallet oversteg sjelden rundt tusen per kubikkmillimeter. Oksygenforbruket ble rapportert som andelen av prøvens opprinnelige oksygeninnhold som hadde forsvunnet.
De målte også karbondioksid, og der skapte metoden problemer. Defibrinert blod frigjorde opptil to millimol karbondioksid per 100 mL i den første timen av inkubasjonen av årsaker som ikke var knyttet til reaksjonen de studerte. Respirasjonskvotienter fra fullblod var derfor ubrukelige. Bare vaskede celler i Lockes løsning ga tolkbare tall, og disse lå mellom 0.73 og 0.80 både med og uten fargestoffet.
Denne detaljen er ikke en bagatell. «Respirasjon» i disse artiklene betyr gassutveksling i en lukket beholder. Forskjellen mellom oksygenforbruk og nyttig energiutbytte undersøkes separat i hva oksygenforbruk forteller og ikke forteller om ATP.
Fargestoffet bidro mest der cellene respirerte minst
Modne erytrocytter hos pattedyr har nesten ikke noe målbart oksygenforbruk. Erytrocytter med cellekjerne hos fugler har det. Harrop og Barron undersøkte begge, og kontrasten er grunnlaget for argumentet deres.
I prøvene fra pattedyr ga fargestoffet en tjue- til femtidobling. I gåseblod, der cellene allerede respirerte, ble hastigheten aldri mer enn doblet. Jo høyere respirasjonen var i utgangspunktet, desto mindre kunne fargestoffet bidra med.
Den samme gradienten finnes innenfor én art. En blodprøve fra en pasient med polycytemia vera, som inneholdt umodne celler, forbrukte 11.3 prosent av oksygenet uten fargestoff, mot 2.8 prosent for vaskede celler fra en frisk giver. Fargestoffet økte dette bare til 63.4 prosent, en seksdobling der normale celler økte hastigheten nesten tretti ganger. Fargestoffet fikk modne celler til å oppføre seg mer som umodne celler, noe forfatterne selv sa at det gjorde.
Cyanid burde ha stoppet det
Det var kjent at cyanid stoppet cellulær oksidasjon. Harrop og Barron tilsatte det likevel, sammen med fargestoffet.
Resultatene fra storfeblod er representative. Oksygeninnholdet falt fra 22.61 til 22.03 volumprosent i løpet av tre timer uten tilsetninger. Med metylenblått falt det til 12.84. Med metylenblått og kaliumcyanid i en konsentrasjon på én femtusendels molar falt det til 12.74. Fargestoffets effekt var i hovedsak uendret.
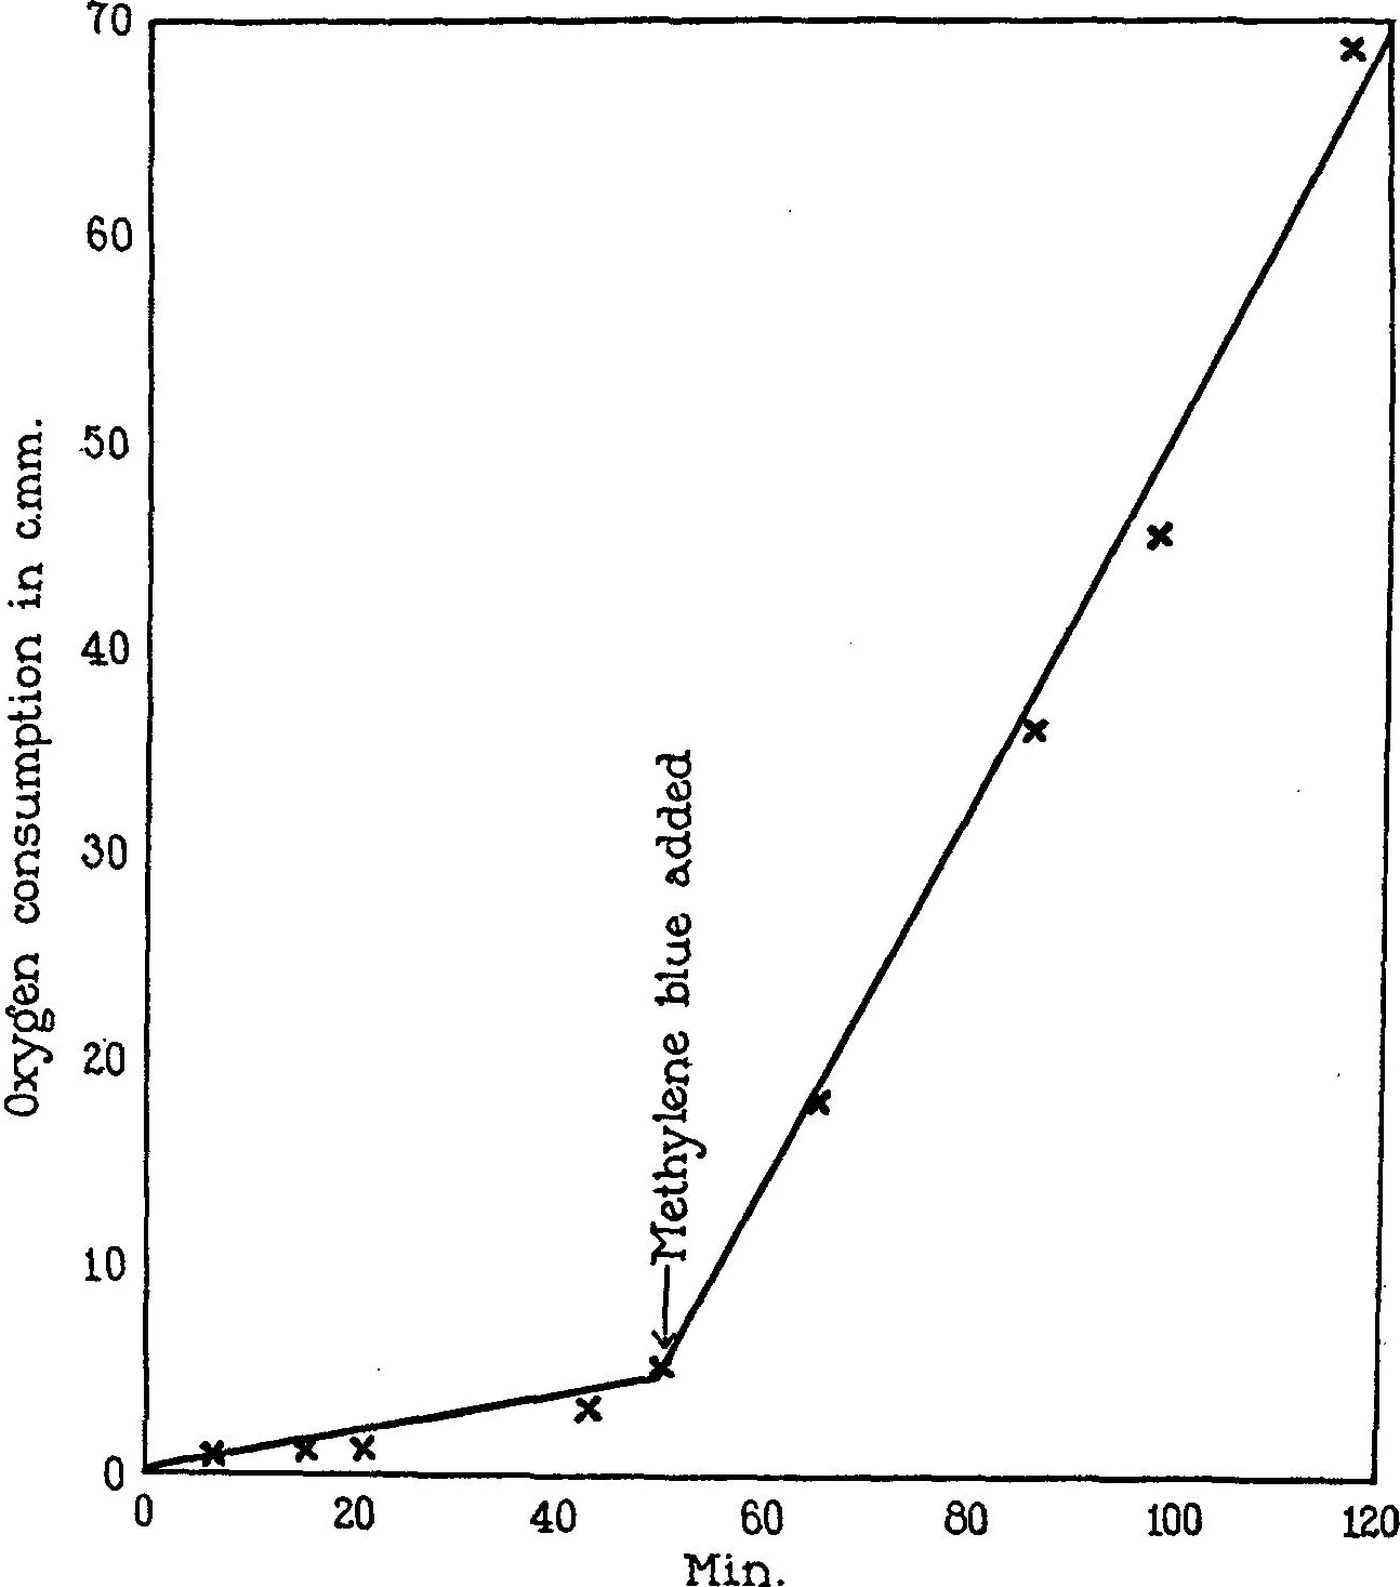
Figur: en kontinuerlig mikrorespirasjonsregistrering av menneskelige erytrocytter. Pilen markerer tilsetningen av metylenblått. Før dette er kurven nesten flat; etterpå stiger den jevnt. Gjengitt fra Harrop og Barron, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Konklusjonen deres var at fargestoffet fungerte som en oksygenbærer ved å «tilføre et stoff som har forsvunnet fra modne, kjerneløse erytrocytter hos pattedyr». To år senere formulerte Michaelis og Salomon ved Rockefeller Institute uenigheten på en måte som har blitt stående. Enten var effekten «en tilfeldig egenskap ved fargestoffet», eller så var fargestoffet «en modell for et ukjent stoff i organismene». Dette spørsmålet er fortsatt ikke avklart. Det som har endret seg, er at cellene nå kan beskrives langt mer presist.
Et leverekstrakt gjorde det samme
Michaelis og Salomon viste at kaldtvannsekstrakter av organer gir den samme stimuleringen. Rottelever hadde sterkest effekt, fulgt av nyre, milt og testikkel. Hjerne, muskel og blodserum hadde liten eller ingen effekt.
Deretter testet de ekstraktet mot karbonmonoksid. Respirasjon indusert av enten ekstraktet eller fargestoffet var uendret i en blanding av 98 prosent karbonmonoksid og 2 prosent oksygen. Den samme gassblandingen hemmet respirasjonen hos gjær og i kjerneholdige erytrocytter fra hønsefugler med omtrent 60 til 80 prosent, i tråd med Warburgs beskrivelse av et karbonmonoksidfølsomt respirasjonsferment. Det uidentifiserte stoffet i vevet var derfor ikke Warburgs enzym.
Flere mulige identiteter ble avvist underveis. Redusert glutation og cystein ga bare det oksygenforbruket som deres egen oksidasjon krevde. Harden og Youngs koenzym ble utelukket fordi muskel inneholder mest av det, men viste nesten minst effekt. Keilins cytokrom, som hadde fått navn noen år tidligere, støtte på den samme motsigelsen. Sitt eget forslag om at det aktive stoffet kom fra cellekjernen, kalte de bare et forslag.
Effekten var avhengig av bestemte betingelser
Cellene måtte være intakte. Hemolyse med destillert vann eller gjentatt frysing fjernet responsen på både fargestoffet og ekstraktet, og delvis hemolyse reduserte den tilsvarende.
Sukker var også nødvendig. Glukose, fruktose og sukrose støttet den fargestoffinduserte respirasjonen; mannitol gjorde ikke det. Uten sukker var det ingen respirasjon i det hele tatt, og fargestoffet så ut til å skade cellene underveis, slik at glukose tilsatt én eller to timer senere ikke gjenopprettet den. Forfatterne foreslo at fargestoffet oksiderte en strukturell komponent som cellen trengte.
Belysning økte effekten av fargestoffet betydelig, selv om effekten også var tydelig i mørket. Andre reduserbare fargestoffer oppførte seg annerledes: toluylenblått hadde like stor eller større effekt enn metylenblått, mens indigodisulfonat nesten ikke gjorde noe. Det fremkom ingen entydig sammenheng mellom et fargestoffs oksidasjons-reduksjonspotensial og størrelsen på effekten. Forfatterne tilskrev dette membranpermeabilitet og toksisitet.
Effekten fulgte gjæring, ikke respirasjon
Barrons studie fra 1930 gikk fra cellesuspensjoner til vevssnitt fra normale rotteorganer og transplanterte svulster.
I vev uten aerob glykolyse gjorde metylenblått ingenting eller reduserte oksygenforbruket noe: i nyre med rundt 14 prosent, i bukspyttkjertel med rundt 14 prosent og i lever med rundt 5 prosent. I vev som har gjæring i nærvær av oksygen, økte det forbruket: i milt med rundt 8 prosent og i hjerne med rundt 13 prosent. Økningene i svulster varierte fra rundt 27 prosent i et humant brystkarsinom til mer enn 80 prosent i et Rous-sarkom hos kylling, omtrent proporsjonalt med den aerobe glykolysen i hvert vev.
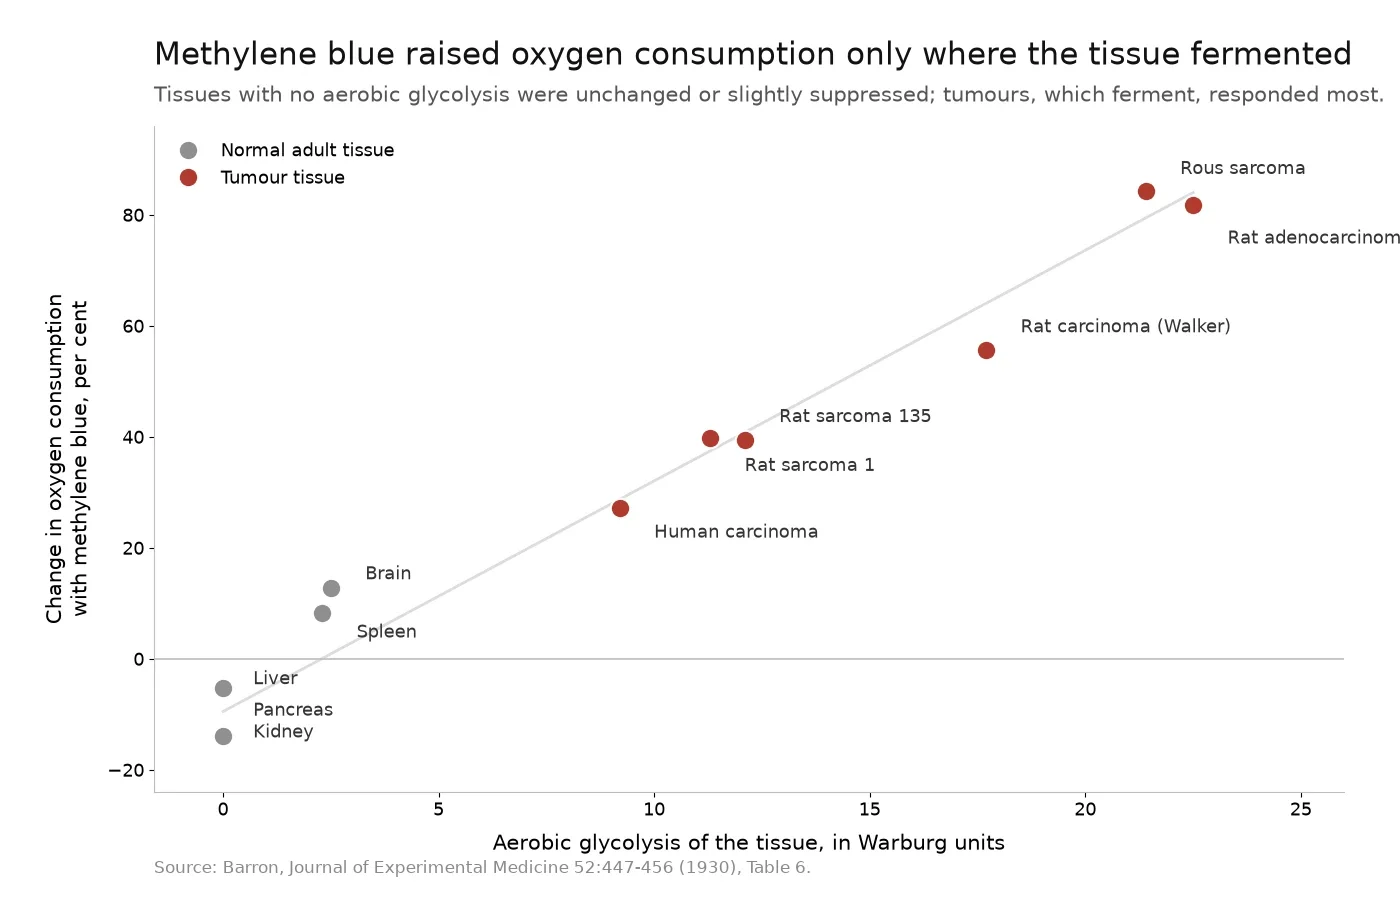
Figur: hvert punkt er én vevstype. Den horisontale aksen viser aerob glykolyse; den vertikale aksen viser endringen i oksygenforbruk etter tilsetning av metylenblått. Data fra Barron, Journal of Experimental Medicine 52:447–456 (1930), tabell 6, PMID 19869777.
Cyanidforsøket ga deretter et speilbilde. Da respirasjonen i disse tidligere uresponsive vevene ble blokkert med cyanid og gjæringen kom til syne, økte fargestoffet igjen oksygenforbruket: i nyre med rundt 59 prosent, i lever med rundt 19 prosent, i milt med rundt 286 prosent og i testikkel med rundt 200 prosent.
Barron foreslo at fargestoffet kunne brukes til å teste gjæringsevnen til en celle eller et vev, og avsluttet med en spekulasjon: Generasjoner med svulstdyrking i et medium som inneholdt fargestoffet, kunne kanskje en dag gjøre svulstens stoffskifte permanent likt normalt vev. Dette var et forskningsspørsmål skrevet i 1930. Det er ikke en behandlingspåstand.
Hva eksperimentene ikke kan ha målt
I 1928 og 1930 betydde «respirasjon» oksygenforbruk. Adenosintrifosfat ble først rapportert i 1929, og påvisningen av at isolerte mitokondrier forestrer fosfat mens de overfører elektroner, kom i 1949. Ingen av de tidlige artiklene om metylenblått kan ha målt energiproduksjon, og ingen av dem hevdet å ha gjort det.
Cellene er det andre problemet. Modne erytrocytter hos pattedyr inneholder ingen mitokondrier. Under retikulocyttstadiet fjerner de mitokondrier og ribosomer ved selektiv autofagi. Derfor drives en moden rød blodcelle av glykolyse og er avhengig av pentosefosfatveien hovedsakelig for NADPH, ikke for ATP. I eksperimentene fra 1928 fantes det ingen elektrontransportkjede å reparere. Det som forbrukte oksygenet, gjorde noe annet.
Hva dette andre var, er nå rimelig godt beskrevet. Metylenblått tar imot elektroner fra cellens reduksjonsekvivalenter og blir til leukometylenblått, som reoksideres av molekylært oksygen og dermed lukker syklusen. I menneskets røde blodceller utføres reduksjonstrinnet av NADPH-avhengig flavinreduktase og beslektede disulfidreduktaser. En studie fra 1976 med merket glukose fant at fargestoffet stimulerer heksosemonofosfatshunten, at effekten ved lav konsentrasjon var avhengig av oksyhemoglobin, og at en høyere konsentrasjon, 0.1 mM, dannet hydrogenperoksid. Et redusert fargestoff som møter oksygen, produserer peroksid, ikke fosfatbindinger.
I mitokondrier er bildet mer omstridt enn populære oppsummeringer gir inntrykk av. Én forskningsretning mener at fargestoffet tar elektroner fra området ved kompleks I og overfører dem til cytokrom c. En annen fant at det i mitokondrier fra musehjerne ikke kan gjenopprette respirasjonen etter en antimycinblokkering, og plasserte i stedet elektronakseptoren ved ubikinolbindingsstedet i kompleks III. En tredje fant at lave konsentrasjoner økte oksygenforbruket i hvile uten å endre ADP-stimulert respirasjon. Den mest direkte formuleringen av poenget er at oksygenforbruk indusert av metylenblått ikke er avhengig av oksidativ fosforylering i det hele tatt: Det vedvarte når respirasjonskjeden var hemmet, og i preparater uten en slik kjede.
Det finnes også direkte målinger av avstanden mellom de to størrelsene. I isolerte mitokondrier fra rottelever senket økende fargestoffkonsentrasjoner respirasjonskontrollforholdene og forårsaket svelling, noe forfatterne beskrev som frakobling av oksidativ fosforylering. I perfundert rottelever økte metylenblått oksygenforbruket mens ATP/ADP-forholdet falt.
Den kliniske litteraturen formidler det samme budskapet. Methemoglobinemi behandles med omtrent ett til to milligram metylenblått per kilogram intravenøst via en NADPH-avhengig reduksjonsvei, mens større doser forårsaker tilstanden som behandles. Den samme oversiktsartikkelen bemerker at motgifteffekten er størst i intakte erytrocytter og redusert når hemolyse er til stede. Det er funnet om hemolyse fra 1930 som dukker opp igjen syttitre år senere i en sykehuskontekst. Et stoff der nyttige og skadelige effekter ligger på hver sin side av en doseterskel, er ikke et stoff man bør utlede dosen for fra en måling av oksygenforbruk.
Hvorfor partiet hører hjemme i diskusjonen
Harrop og Barron merket seg noe som er verdt å lese en gang til. Metylenblått gir selv et bånd i spektroskopet mellom de to karakteristiske båndene til methemoglobin, «noe som lett kan føre til forveksling ved en overfladisk inspeksjon». Fargestoffet kan etterligne stoffet man leter etter.
Det samme problemet har en kjemisk form. Et beslektet fenotiazin som finnes som en mindre bestanddel, har sin egen redoksatferd, sin egen permeabilitet og sin egen toksisitet. Ett dokumentert tilfelle konkretiserer hva som står på spill: I en studie av jodering av metylenblått ga prøver som inneholdt rundt 7 til 8 prosent Azure B, hovedsakelig jodert Azure B. Dermed var det urenheten, ikke metylenblått, som dominerte reaksjonen.
Alle som bruker metylenblått som reagens, i et laboratorium, ved en fargebenk eller i et akvarium, arbeider med en uspesifisert ingrediens med mindre partiet er karakterisert. Beslektede stoffer, identitet, elementære urenheter, restløsemidler og gløderest er en del av eksperimentet, ikke bare papirarbeid rundt det. Blupreme får sitt metylenblått fra en farmasøytisk produsent og publiserer et fullstendig analysesertifikat, med testing mot hele USP-spesifikasjonen og ikke bare for tungmetaller. Veiledningen til å lese et analysesertifikat og hva betegnelsen USP-kvalitet fastslår og ikke fastslår forklarer hvordan dokumentet kan kontrolleres opp mot påstanden.
Tallet var riktig
Eksperimentene fra 1928 og 1930 var grundige, og den sentrale observasjonen har holdt seg: Et reduserbart fargestoff kan få en celle som knapt respirerer, til å forbruke oksygen mange ganger raskere enn i hvile, uten å gå gjennom trinnet som cyanid blokkerer.
Feilen oppstår senere, når «respirasjon» leses med sin moderne betydning. En gassutvekslingsmåling forteller at elektroner nådde frem til oksygen. Den forteller ikke at noen av dem ble brukt til å lage ATP, og i en celle uten mitokondrier er avstanden mellom disse to utsagnene så stor som den kan bli. Den bredere oversikten over hva metylenblått gjør i celler setter det samme skillet i en større sammenheng, og stoffets historie fra fargestoff til legemiddel forklarer hvordan et tekstilfargestoff i det hele tatt fant veien til disse eksperimentene.