
Макала
Метилен көгүн клеткалык дем алуу менен байланыштырган тажрыйбалар
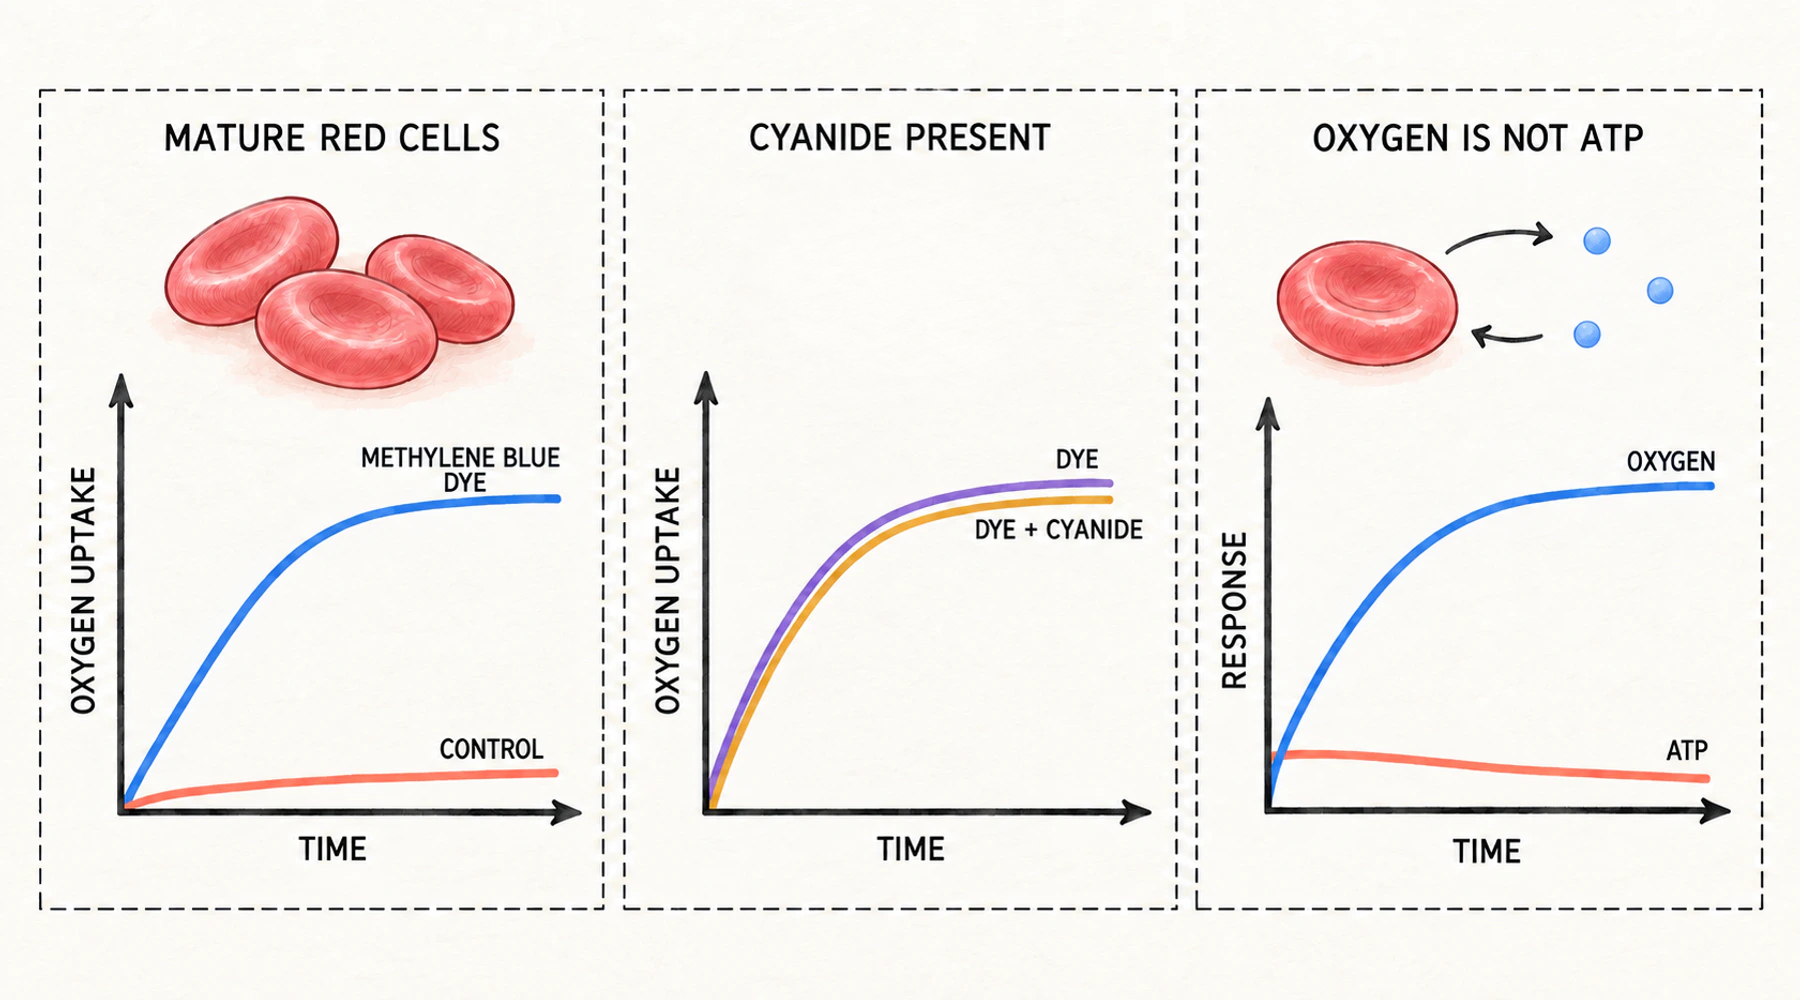
Фибрини алынган адамдын канын 37 °C температурада үч саат кармаганда, ал өзүндөгү кычкылтектин болжол менен эки пайызын керектейт. Инкубациянын алдында аз өлчөмдө метилен көгүн кошсо, ошол эле кан кычкылтектин болжол менен алтымыш беш пайызын керектейт. Клеткаларда эч нерсе өзгөргөн эмес. Эритме гана өзгөргөн.
Бул сан Жонс Хопкинс университетинде иштеген Жорж Харроп менен Э. С. Гусман Баррондун 1928-жылкы макаласынан алынган. Метилен көгү клеткалык дем алууну жакшыртат деген кеңири кайталанган пикир дал ушул жерден башталган. Бул пикир жалган эмес, бирок анын мааниси угулганынан кыйла тар.
Таблицадагы сан чындыгында эмнени өлчөйт
Өлчөнгөн акыркы көрсөткүч газдык талдоо аркылуу аныкталган кычкылтек сиңирүү болгон. Харроп менен Баррон жаңы алынган канды ак кан клеткаларынан тазалоо үчүн 10 °C температурада кебез аркылуу чыпкалап, үлгүнү кычкылтекке каныктырып, экиге бөлүшкөн. Бир бөлүгүнө боёк кошуп, инкубациядан кийин экөөнү тең талдашкан. Лейкоциттердин саны бир куб миллиметрде болжол менен миңден сейрек ашкан. Кычкылтек керектөө үлгүдөгү баштапкы кычкылтектин канча үлүшү жоголгону менен берилген.
Алар көмүр кычкыл газын да өлчөшкөн, бирок бул жерде ыкма кыйынчылык жараткан. Инкубациянын биринчи саатында фибрини алынган кан изилденип жаткан реакцияга тиешеси жок себептерден улам ар бир 100 mL үчүн эки миллимолго чейин көмүр кычкыл газын бөлүп чыгарган. Ошондуктан бүтүн кандын дем алуу коэффициенттерин колдонууга мүмкүн болгон эмес. Локк эритмесиндеги жуулган клеткалар гана чечмелөөгө жарактуу көрсөткүчтөрдү берген. Боёк кошулганда да, кошулбаганда да алар 0.73 менен 0.80 аралыгында топтолгон.
Бул майда-чүйдө эмес. Бул макалалардагы «дем алуу» жабык идиштеги газ алмашууну билдирет. Кычкылтек керектөө менен пайдалуу энергиянын өндүрүлүшүнүн ортосундагы айырма кычкылтек керектөө ATP жөнүндө эмнени билдирет жана эмнени билдирбейт деген макалада өзүнчө каралат.
Боёк эң аз дем алган клеткаларга эң көп таасир берген
Сүт эмүүчүлөрдүн жетилген эритроциттеринде өлчөөгө боло турган кычкылтек керектөө дээрлик жок. Ал эми канаттуулардын ядролуу эритроциттеринде ал бар. Харроп менен Баррон экөөнү тең текшеришкен жана алардын жүйөсү ушул айырмага негизделген.
Сүт эмүүчүлөрдөн алынган үлгүлөрдө боёк кычкылтек керектөөнү жыйырмадан элүү эсеге чейин көбөйткөн. Клеткалары ансыз деле дем алган каздын канында болсо ылдамдык эч качан эки эседен ашык көбөйгөн эмес. Баштапкы дем алуу канчалык жогору болсо, боёктун кошумча таасири ошончолук аз болгон.
Ушундай эле мыйзам ченемдүүлүк бир түрдүн ичинде да байкалат. Чыныгы полицитемиясы бар бейтаптан алынган, жетиле элек клеткаларды камтыган адам каны боёксуз эле өзүндөгү кычкылтектин 11.3 пайызын керектеген. Салыштыруу үчүн, дени сак донордун жуулган клеткаларында бул көрсөткүч 2.8 пайыз болгон. Боёк биринчи үлгүнүн көрсөткүчүн 63.4 пайызга гана жеткирген: алты эсеге тездөө, ал эми кадимки клеткаларда тездөө дээрлик отуз эсеге жеткен. Боёк жетилген клеткалардын жүрүм-турумун жетиле элек клеткалардыкына жакындаткан. Авторлор да анын таасирин ушундай сүрөттөшкөн.
Цианид муну токтотушу керек эле
Цианид клеткалык кычкылданууну токтотору белгилүү болгон. Ошого карабастан Харроп менен Баррон аны боёк менен кошо кошушкан.
Уйдун каны боюнча жыйынтыктар муну айкын көрсөтөт. Эч нерсе кошулбаганда үч сааттын ичинде кычкылтектин көлөмдүк пайызы 22.61ден 22.03кө түшкөн. Метилен көгү кошулганда ал 12.84кө чейин азайган. Метилен көгү жана молярдык концентрациясы беш миңден бир болгон калий цианиди кошулганда 12.74кө түшкөн. Боёктун таасири дээрлик өзгөргөн эмес.
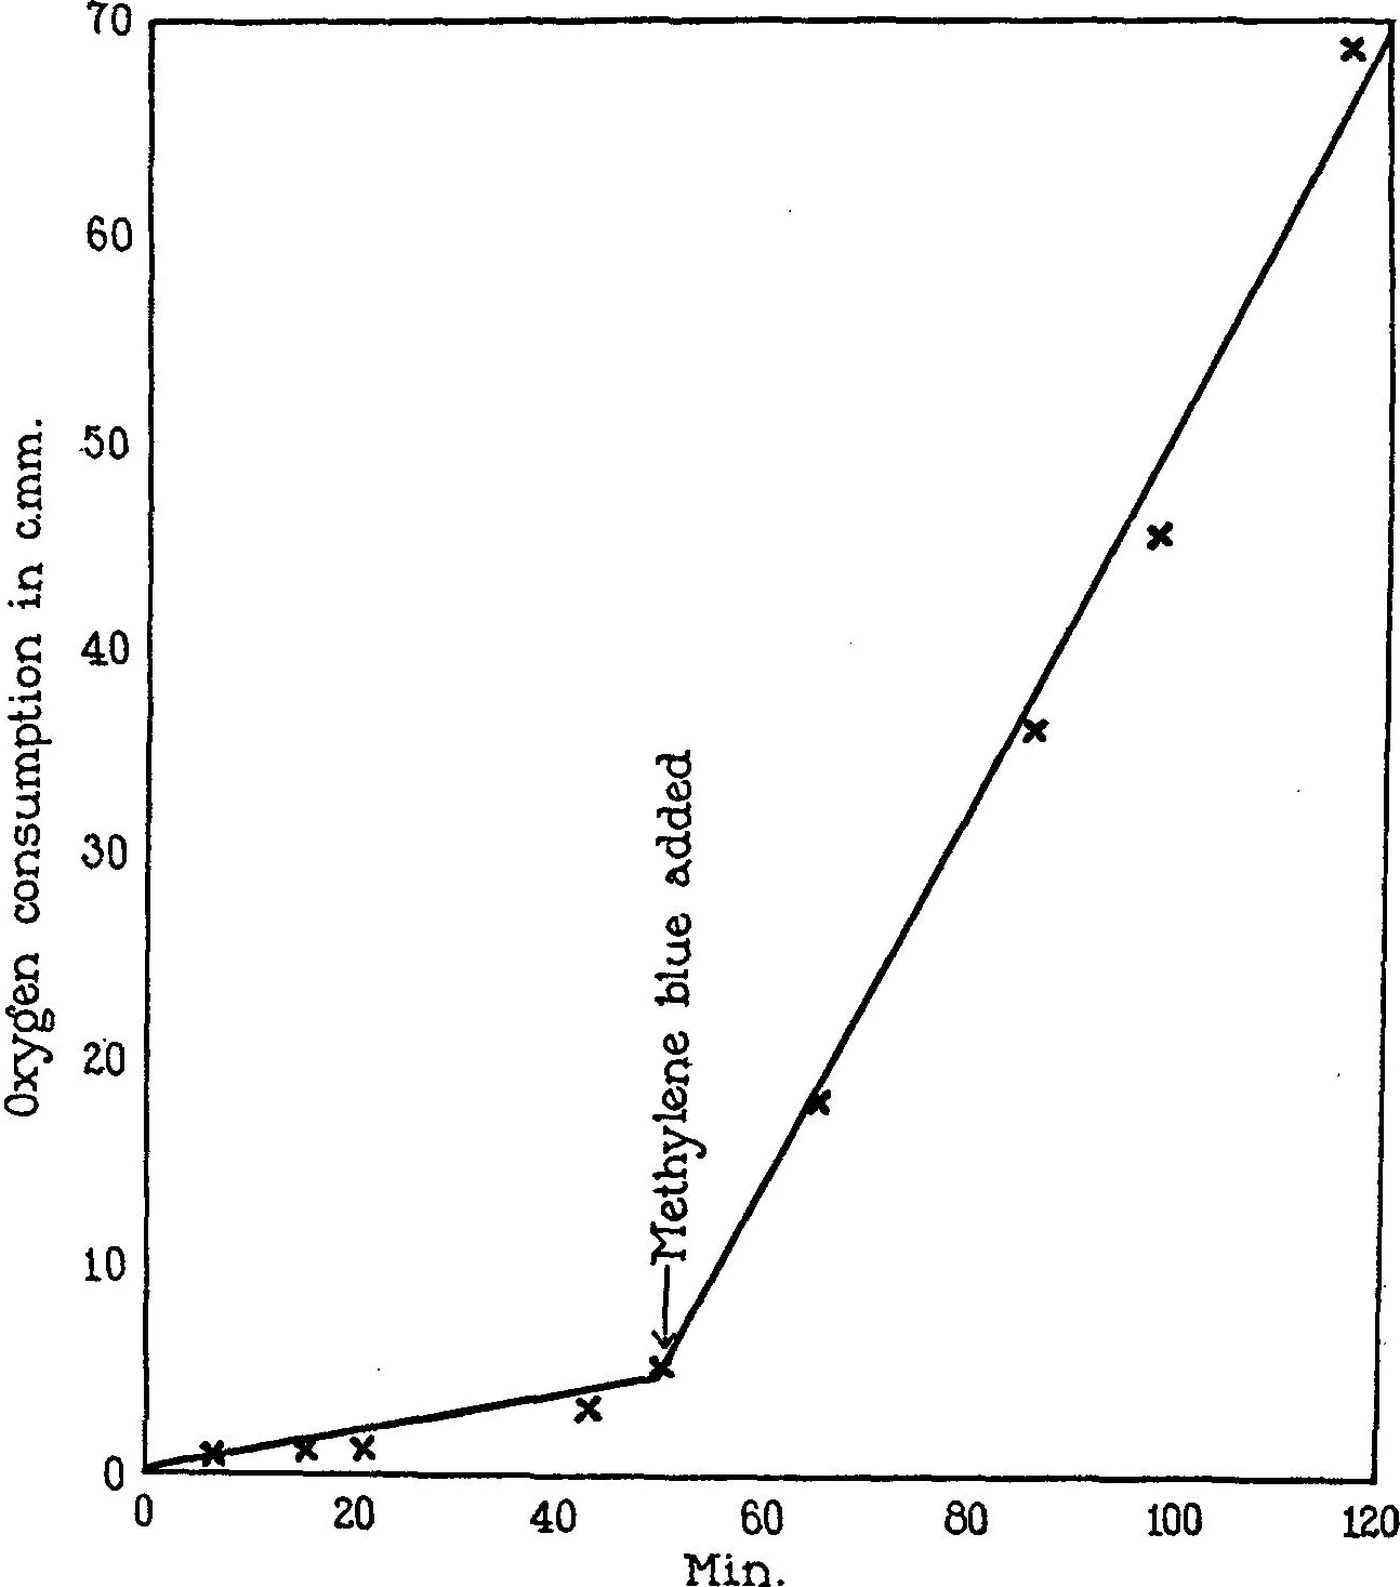
Сүрөт: адамдын эритроциттеринин микро-дем алуусунун үзгүлтүксүз жазуусу. Жебе метилен көгү кошулган учурду көрсөтөт. Ага чейин сызык дээрлик түз; андан кийин туруктуу жогорулайт. Харроп менен Баррондун Journal of Experimental Medicine 48:207–223 (1928) макаласынан алынган, PMID 19869478.
Алар боёк кычкылтек ташуучу катары иштеп, «бойго жеткен сүт эмүүчүлөрдүн ядросуз эритроциттеринде жоголуп кеткен затты камсыз кылат» деген тыянакка келишкен. Эки жылдан кийин Рокфеллер институтундагы Михаэлис менен Саломон бул талашты кийинки жылдарга да жарактуу түрдө койгон. Боёктун таасири же «боёктун кокусунан болгон касиети», же боёк «организмдердеги кандайдыр бир белгисиз заттын модели» болгон. Бул эки түшүндүрмөнүн кайсынысы туура экени али чечиле элек. Өзгөргөн нерсе — азыр клеткаларды кыйла так сүрөттөөгө болот.
Боордун экстракты да ушундай таасир берген
Михаэлис менен Саломон органдардан муздак суу менен алынган экстракттар ушундай эле стимулдаштырууну жаратарын көрсөтүшкөн. Эң күчтүү таасирди келемиштин боору берген, андан кийин бөйрөк, көк боор жана урук бези турган. Мээнин, булчуңдун жана кан сывороткасынын таасири аз болгон же таптакыр болгон эмес.
Андан кийин алар экстракттын таасирин көмүртек монооксиди бар шартта текшеришкен. 98 пайыз көмүртек монооксиди жана 2 пайыз кычкылтектен турган аралашмада экстракт же боёк козгогон дем алуу өзгөргөн эмес. Ошол эле газ аралашмасы ачыткылардын жана үй канаттууларынын ядролуу эритроциттеринин дем алуусун болжол менен 60–80 пайызга басаңдаткан. Бул Варбургдун көмүртек монооксидине сезгич дем алуу ферменти жөнүндөгү түшүндүрмөсүнө туура келген. Демек, аныктала элек ткандык зат Варбургдун ферменти болгон эмес.
Изилдөөнүн жүрүшүндө бир нече болжолдуу зат четке кагылган. Калыбына келген глутатион менен цистеин өздөрүнүн кычкылдануусу үчүн зарыл болгон өлчөмдө гана кычкылтек керектөөнү жараткан. Харден менен Янгдын коферменти да четке кагылган: ал булчуңда эң көп болгону менен, булчуң дээрлик эң аз таасир көрсөткөн. Бир нече жыл мурун аталышы берилген Кейлиндин цитохрому да ушул эле карама-каршылыкка туш болгон. Активдүү зат клетканын ядросунан чыгат деген өз ойлорун авторлор жөн гана божомол деп аташкан.
Таасир белгилүү шарттарга көз каранды болгон
Клеткалар бүтүн болушу керек эле. Дистилденген суу же кайра-кайра тоңдуруу менен жасалган гемолиз боёкко да, экстрактка да болгон жоопту жок кылган. Жарым-жартылай гемолиз болсо жоопту ошого жараша азайткан.
Кант да зарыл болгон. Глюкоза, фруктоза жана сахароза боёк козгогон дем алууну камсыз кылган; маннитол камсыз кылган эмес. Кант жок болгондо дем алуу таптакыр байкалган эмес. Ошол учурда боёк клеткаларды жабыркаткандай көрүнгөн, анткени бир же эки сааттан кийин кошулган глюкоза дем алууну калыбына келтирген эмес. Авторлор боёк клеткага керектүү түзүмдүк компонентти кычкылдантып жатат деп божомолдошкон.
Жарык боёктун таасирин кыйла күчөткөн, бирок таасир караңгыда да ачык байкалган. Калыбына келе алган башка боёктор өзүн башкача алып жүргөн: толуилен көгү метилен көгүнө тең же андан күчтүү таасир берген, ал эми индиго дисульфонат дээрлик эч нерсе кылган эмес. Боёктун кычкылдануу-калыбына келүү потенциалы менен таасиринин күчүнүн ортосунда так байланыш табылган эмес. Авторлор муну мембранадан өтүү жөндөмүнө жана уулуулукка байланыштырган.
Таасир дем алууга эмес, ачытууга байланыштуу болгон
Баррондун 1930-жылкы изилдөөсүндө клетка суспензияларынын ордуна келемиштин кадимки органдарынын жана көчүрүп отургузулган шишиктердин ткандык кесиндилери колдонулган.
Аэробдук гликолиз жүрбөгөн ткандарда метилен көгү эч таасир берген эмес же кычкылтек керектөөнү бир аз басаңдаткан: бөйрөктө болжол менен 14 пайызга, уйку безинде болжол менен 14 пайызга, боордо болжол менен 5 пайызга. Кычкылтек бар шартта ачытуу жүргөн ткандарда болсо керектөөнү көбөйткөн: көк боордо болжол менен 8 пайызга, мээде болжол менен 13 пайызга. Шишиктердеги өсүш адамдын эмчек карциномасында болжол менен 27 пайыздан Роус тоок саркомасында 80 пайыздан ашыкка чейин жеткен. Бул ар бир ткандын аэробдук гликолизине болжолдуу түрдө пропорционалдуу болгон.
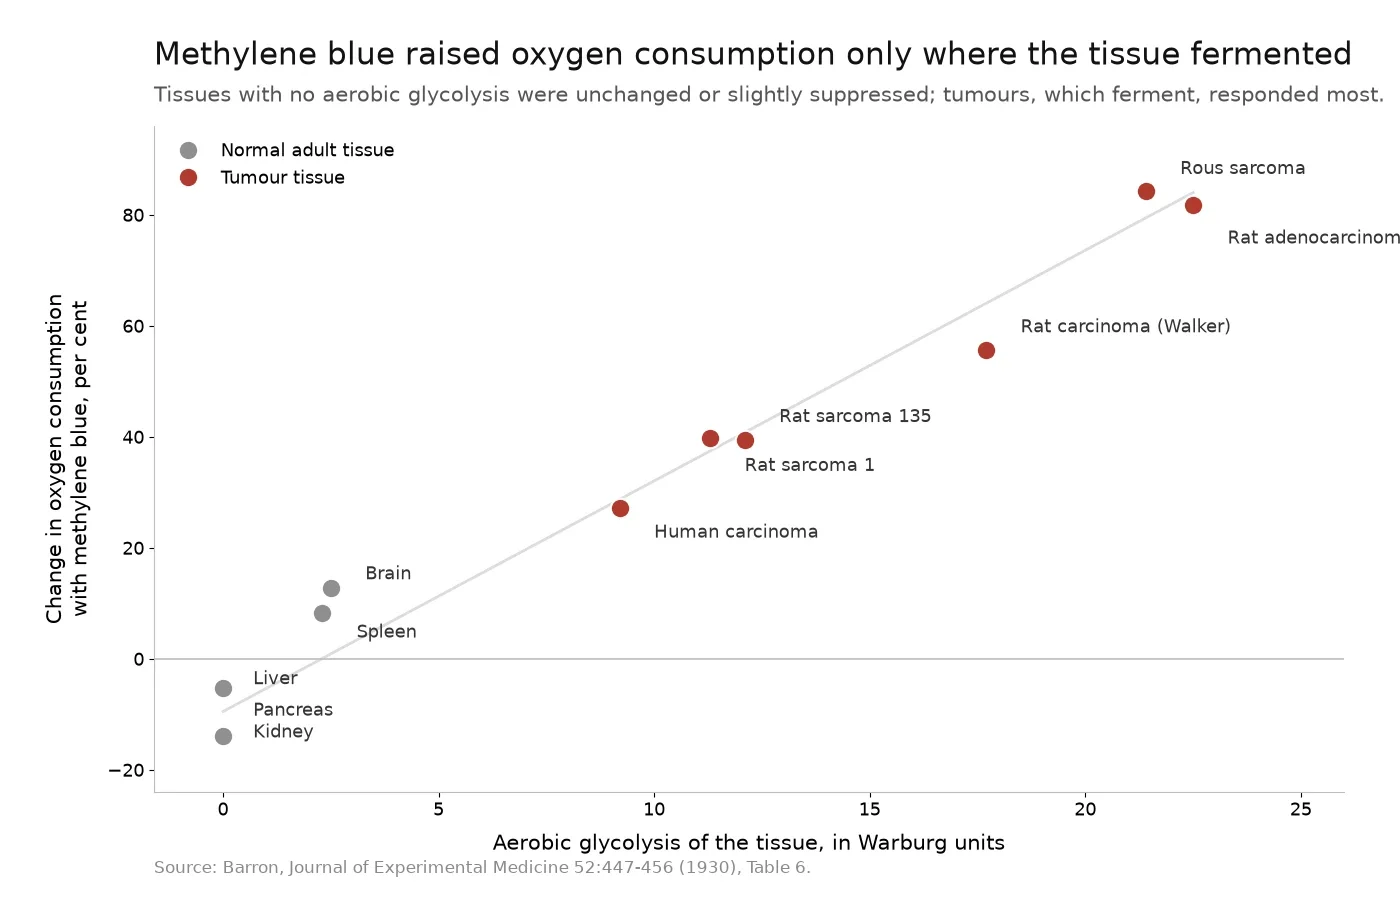
Сүрөт: ар бир чекит бир ткань түрүн билдирет. Туурасынан кеткен огу — аэробдук гликолиз; тик огу — метилен көгү кошулгандан кийинки кычкылтек керектөөнүн өзгөрүшү. Маалыматтар Баррондун Journal of Experimental Medicine 52:447–456 (1930) макаласынын 6-таблицасынан алынган, PMID 19869777.
Андан кийинки цианид менен жүргүзүлгөн тажрыйба тескери көрүнүштү берген. Мурда боёкко жооп бербеген бул ткандардын дем алуусу цианид менен бөгөттөлүп, ачытуу ачык байкала баштаганда, боёк кычкылтек керектөөнү кайра көбөйткөн: бөйрөктө болжол менен 59 пайызга, боордо болжол менен 19 пайызга, көк боордо болжол менен 286 пайызга, урук безинде болжол менен 200 пайызга.
Баррон боёкту клетканын же ткандын ачытуу жөндөмүн текшерүү үчүн колдонсо болорун сунуштаган. Макаласынын аягында ал мындай божомол айткан: боёк камтыган чөйрөдө шишик культурасын көп муун бою өстүрүү бир күнү анын зат алмашуусун кадимки ткандыкындай кылып туруктуу өзгөртүшү мүмкүн. Бул 1930-жылы жазылган изилдөө суроосу болгон. Ал дарылоо жөнүндө ырастоо эмес.
Тажрыйбалар эмнени өлчөй алмак эмес
1928 жана 1930-жылдары «дем алуу» кычкылтек керектөөнү билдирген. Аденозинтрифосфат жөнүндө алгач 1929-жылы кабарланган. Ал эми бөлүнүп алынган митохондриялар электрондорду өткөрүү учурунда фосфатты эфирлештирери 1949-жылы көрсөтүлгөн. Метилен көгү боюнча алгачкы макалалардын эч бири энергия өндүрүүнү өлчөй алмак эмес жана эч бири андай кылганын билдирген эмес.
Экинчи маселе — клеткалардын өзү. Сүт эмүүчүлөрдүн жетилген эритроциттеринде митохондриялар жок. Ретикулоцит баскычында алар тандалма аутофагия аркылуу митохондриялар менен рибосомалардан арылат. Ошондуктан жетилген эритроцит гликолиздин эсебинен иштейт жана пентозофосфаттык жолго негизинен ATP үчүн эмес, NADPH үчүн таянат. 1928-жылкы тажрыйбаларда оңдоого мүмкүн болгон электрон ташуу чынжыры болгон эмес. Кычкылтекти керектеген процесс башка иш аткарган.
Ал башка иш эмне экени азыр кыйла жакшы сүрөттөлгөн. Метилен көгү клеткадагы калыбына келтирүүчү эквиваленттерден электрондорду кабыл алып, лейкометилен көгүнө айланат. Ал молекулалык кычкылтек менен кайра кычкылданып, циклди бүтүрөт. Адамдын эритроциттеринде калыбына келтирүү баскычын NADPHке көз каранды флавинредуктаза жана ага байланыштуу дисульфидредуктазалар аткарат. Белгиленген глюкоза колдонулган 1976-жылкы изилдөө боёк гексозомонофосфаттык шунтту стимулдаштырарын, төмөн концентрациядагы таасир оксигемоглобинге көз каранды экенин жана жогорураак концентрацияда, 0.1 mM болгондо, суутек пероксиди пайда болорун аныктаган. Калыбына келген боёк кычкылтек менен жолукканда фосфаттык байланыштарды эмес, пероксидди пайда кылат.
Митохондриялардагы көрүнүш популярдуу баяндамаларда айтылгандан көбүрөөк талаш жаратат. Изилдөөлөрдүн бир багыты боёк электрондорду I комплекстин аймагынан алып, цитохром cге өткөрөт деп эсептейт. Башкасы чычкандын мээсинин митохондрияларында антимицин менен бөгөттөлгөндөн кийин боёк дем алууну калыбына келтире албасын аныктап, электрон кабыл алуучу орунду III комплекстин убихинол байланышкан жерине жайгаштырган. Үчүнчү изилдөө төмөн концентрациялар тынч абалдагы кычкылтек керектөөнү көбөйтүп, ADP менен стимулдаштырылган дем алууну өзгөртпөй турганын тапкан. Бул ойдун эң түз айтылышы мындай: метилен көгү козгогон кычкылтек керектөө кычкылдануу фосфорлонуусуна такыр көз каранды эмес. Ал дем алуу чынжыры басаңдатылганда да, мындай чынжыры жок препараттарда да сакталган.
Бул эки чоңдуктун ортосундагы айырманы түз өлчөгөн иштер да бар. Келемиштин боорунан бөлүнүп алынган митохондрияларда боёктун концентрациясын жогорулатуу дем алуу контролунун коэффициенттерин төмөндөтүп, шишүүнү пайда кылган. Авторлор муну кычкылдануу фосфорлонуусунун ажырашы деп сүрөттөшкөн. Перфузияланган келемиш боорунда метилен көгү кычкылтек керектөөнү көбөйткөн, ошол эле учурда ATPнин ADPге катышы төмөндөгөн.
Клиникалык маалыматтар да ушул эле ойду көрсөтөт. Метгемоглобинемияны NADPHке көз каранды калыбына келтирүү жолу аркылуу дене салмагынын ар бир килограммына болжол менен бирден эки миллиграммга чейин метилен көгүн венага берүү менен дарылашат. Ал эми чоңураак дозалар дарыланып жаткан абалдын өзүн пайда кылат. Ошол эле серепте антидоттук таасир бүтүн эритроциттерде эң күчтүү болору жана гемолиз болгондо азаяры белгиленген. Бул — 1930-жылкы гемолиз боюнча табылган көрүнүштүн жетимиш үч жылдан кийин оорукана шартында кайра кездешиши. Пайдалуу жана зыяндуу таасирлери дозанын белгилүү бир чегинин эки тарабында турган кошулманын дозасын кычкылтек керектөөнүн өлчөмүнөн чыгарып аныктоого болбойт.
Эмне үчүн партия да талкууга кириши керек
Харроп менен Баррон кайра окууга арзый турган нерсени байкашкан. Метилен көгүнүн өзү спектроскопто метгемоглобиндин эки мүнөздүү тилкесинин ортосунда бир тилке пайда кылат. Бул «үстүртөн караганда оңой эле чаташууга алып келиши мүмкүн». Боёк изделип жаткан затты туурай алат.
Ушул эле маселенин химиялык жагы да бар. Аз өлчөмдөгү компонент катары кездешкен тектеш фенотиазиндин өзүнө мүнөздүү кычкылдануу-калыбына келүү жүрүм-туруму, мембранадан өтүү жөндөмү жана уулуулугу болот. Документтештирилген бир мисал мунун маанисин айкын көрсөтөт: метилен көгүн йоддоо боюнча изилдөөдө болжол менен 7–8 пайыз Azure B камтыган үлгүлөр негизинен йоддолгон Azure B берген. Демек, реакцияда метилен көгү эмес, кошулма үстөмдүк кылган.
Метилен көгүн лабораторияда, боёо столунда же аквариумда реагент катары колдонгон ар бир адам, эгер партиянын мүнөздөмөлөрү аныкталбаса, так аныкталбаган ингредиент менен иштеп жатат. Тектеш заттар, заттын аныктыгы, элементтик кошулмалар, калдык эриткичтер жана күйгүзүүдөн калган калдык — тажрыйбанын айланасындагы кагаз иштери эмес, анын өзүнүн бөлүгү. Blupreme метилен көгүн фармацевтикалык өндүрүүчүдөн алат жана толук талдоо сертификатын жарыялайт. Ал оор металлдарды гана эмес, USP спецификациясынын бардык талаптарын текшерет. Талдоо сертификатын окуу боюнча колдонмо жана USP сапат даражасынын белгиси эмнени тастыктайт жана эмнени тастыктабайт деген макалада документти билдирилген ырастоо менен кантип салыштыруу керектиги түшүндүрүлөт.
Сан туура болгон
1928 жана 1930-жылкы тажрыйбалар кылдат жүргүзүлгөн жана алардын негизги байкоосу азыр да күчүндө: калыбына келе алган боёк дээрлик дем албаган клетканын кычкылтек керектөөсүн тынч абалдагы деңгээлинен көп эсе жогорулата алат. Мында процесс цианид бөгөттөгөн баскычтан өтпөйт.
Ката кийинчерээк, «дем алуу» азыркы маанисинде түшүнүлгөндө пайда болот. Газ алмашууну өлчөө электрондор кычкылтекке жеткенин көрсөтөт. Бирок алардын кайсынысы болбосун ATP түзүүгө колдонулганын көрсөтпөйт. Митохондриясы жок клеткада бул эки билдирүүнүн ортосундагы айырма мүмкүн болушунча чоң. Метилен көгүнүн клеткалардагы таасирлеринин кеңири картасы ушул эле айырманы кеңири алкакта көрсөтөт. Ал эми кошулманын боёктон дарыга чейинки тарыхы кездеме боёгу бул тажрыйбаларга кантип келип калганын түшүндүрөт.