
Articolo
Blu di metilene come antiossidante e pro-ossidante: cosa cambia l'esito?
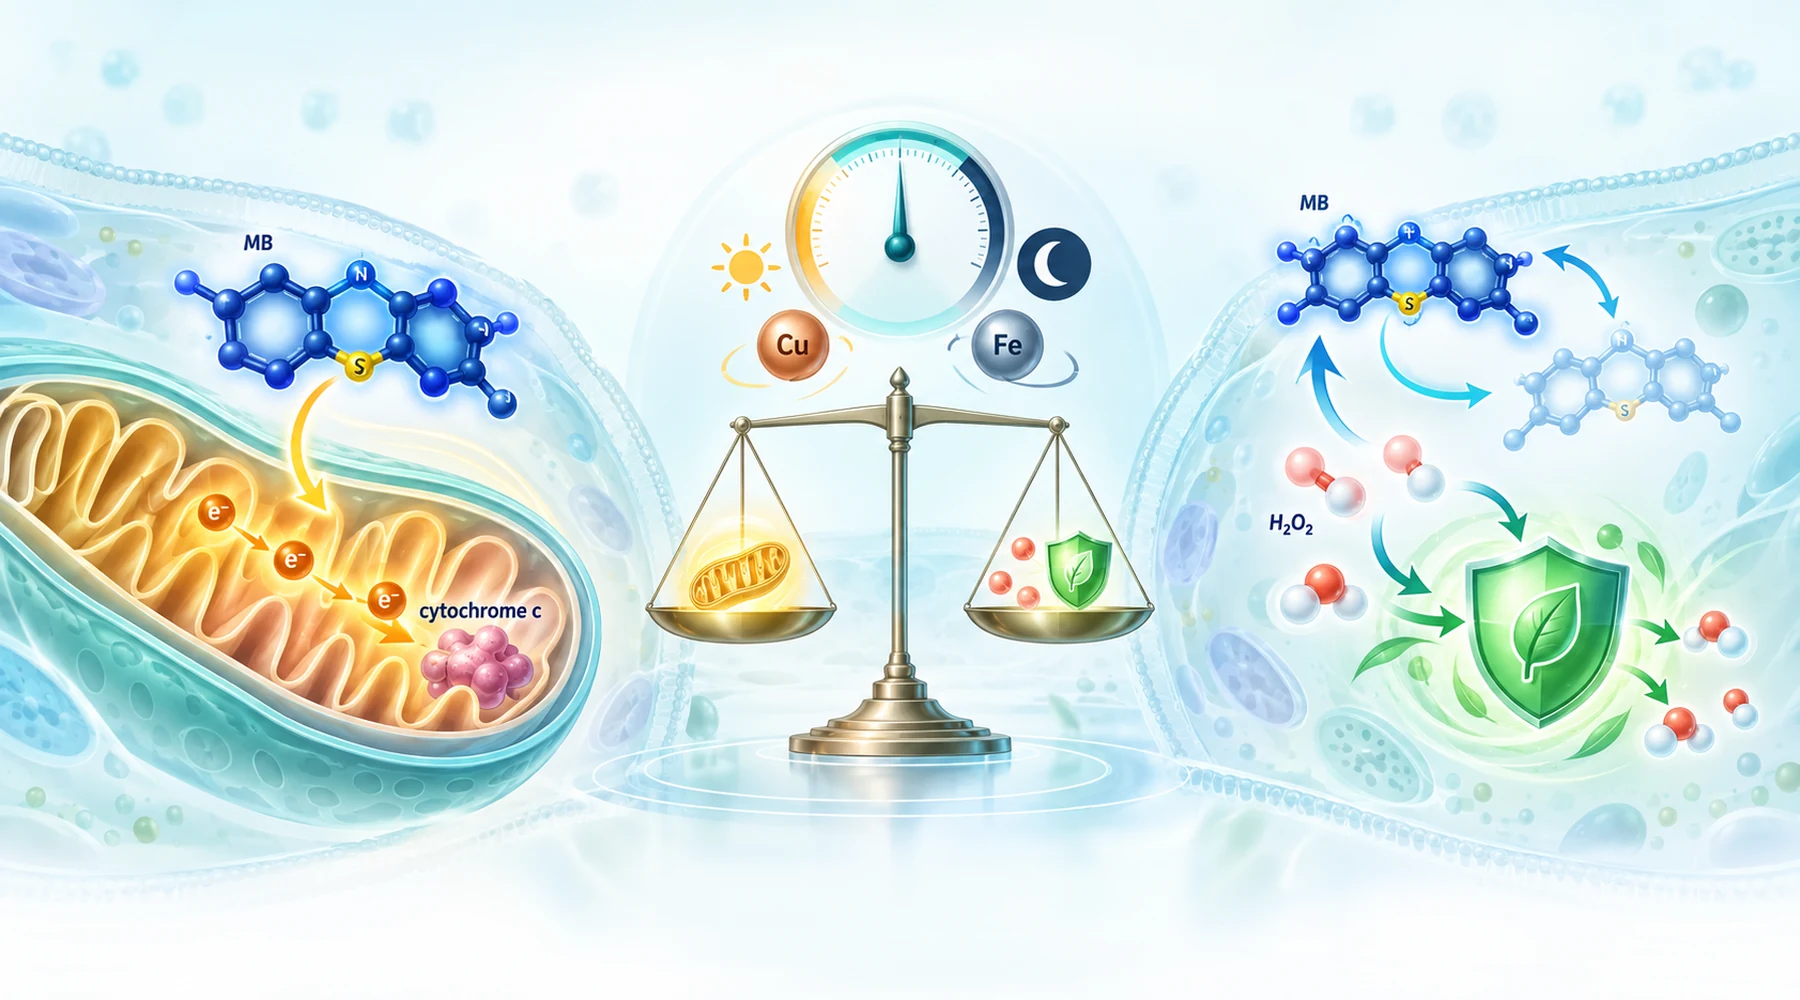
Supponiamo che due laboratori studino lo stesso colorante blu e riportino risultati opposti. Nel primo, i mitocondri cerebrali isolati respirano meglio e producono più ATP. Nel secondo, la stessa preparazione rilascia molto più perossido di idrogeno. Entrambi i risultati sono corretti. Descrivono lo stesso ciclo osservato da due estremi diversi, e la confusione nasce quando i lettori considerano uno dei due come l'intera storia.
L'errore è chiedersi quale etichetta si adatti alla molecola. Il blu di metilene è un intermediario nel trasferimento degli elettroni, come mostra in un contesto più ampio la mappa dei suoi bersagli nella biologia cellulare. Il colorante ossidato accetta elettroni e diventa leucoMB incolore. Il leucoMB cede a sua volta quegli elettroni e torna blu. Ciò che si osserva dipende da chi dona gli elettroni, da chi li riceve e dalla capacità del sistema di eliminare il perossido di idrogeno prodotto lungo il percorso. La domanda utile non è mai se il colorante sia un antiossidante. È che cosa le condizioni consentano a questo intermediario di fare.
Il ciclo che produce entrambi i volti
Al buio, il ciclo di base è breve. NADH, NADPH o trasportatori della catena respiratoria riducono il colorante. Il colorante ridotto ha poi diverse vie concorrenti. Può trasferire elettroni al citocromo c e sostenere il flusso aggirando un complesso danneggiato: per questo la respirazione e il potenziale di membrana recuperano in parte quando il complesso I o III è bloccato. Oppure può trasferire elettroni direttamente all'ossigeno, rigenerando la forma blu e producendo perossido di idrogeno. Poiché il colorante viene rigenerato, una piccola quantità può ripetere questo ciclo molte volte, consumando continuamente equivalenti riducenti e producendo continuamente perossido.
Altre due diramazioni cambiano completamente la chimica. Il rame o il ferro liberi trasformano quel perossido diffusibile in ossidanti locali molto più distruttivi attraverso reazioni di tipo Fenton. La luce rossa apre una diramazione fotochimica distinta, nella quale il colorante eccitato trasferisce energia all'ossigeno e produce ossigeno singoletto, una specie trattata in dettaglio nella spiegazione della fotochimica di tipo I e tipo II. Il ciclo redox al buio, il danno amplificato dai metalli e il danno fotodinamico sono tre meccanismi diversi che condividono la stessa molecola di partenza.
Matrice delle condizioni e degli esiti
La tabella seguente è il riferimento da conservare. Ogni riga presenta una variabile, la direzione verso cui spinge l'esito e l'esperimento che la sostiene. Positivo indica un risultato protettivo o migliorato. Negativo indica più ossidanti, un maggiore esaurimento delle riserve o più danni.
| Condizione | Direzione dell'esito | Cosa ha mostrato l'esperimento |
|---|---|---|
| Bassa concentrazione, da 0.1 a 1 uM, mitocondri isolati | Bioenergetica migliorata e perossido più elevato | 0.1 uM ha migliorato il consumo di ossigeno nei mitocondri cardiaci di ratti sani e diabetici; da 100 nM a 1 uM ha ripristinato in parte ATP, potenziale di membrana e captazione del calcio nei mitocondri cerebrali con blocco della catena respiratoria, mentre il rilascio di perossido è aumentato in ogni condizione |
| Concentrazione più elevata, superiore a 5 uM, cellule private di glucosio | Segnale ossidante negativo | Le cellule endoteliali hanno ossidato una sonda generica per le ROS e perso glutatione ridotto oltre 5 uM in assenza di glucosio; l'aggiunta di glucosio ha impedito entrambi i fenomeni |
| Substrati del complesso I (glutammato più malato) | Più perossido | Gli studi sui mitocondri cerebrali e cardiaci hanno entrambi riscontrato un maggiore rilascio di perossido con substrati collegati al NADH |
| Succinato più rotenone, mitocondri cardiaci, 0.1 uM | Meno perossido in quel protocollo | L'unico risultato relativo al perossido chiaramente antiossidante nel gruppo di studi; va notato che il protocollo includeva rotenone e un tessuto diverso, quindi il solo substrato non lo spiega |
| Luce rossa, 20 uM più 630 nm | Danno al DNA, esito negativo | Nessuna lesione significativa del DNA mitocondriale al buio a 20 uM; la stessa concentrazione con luce rossa ha danneggiato ogni frammento analizzato |
| Concentrazione molto elevata al buio, 100 uM | Danno selettivo al DNA, esito negativo | Lesioni selettive del DNA mitocondriale nelle sequenze ricche di purine, un salto qualitativo rispetto al segnale del perossido a concentrazioni nanomolari |
| Rame o ferro più NADH, DNA in un sistema acellulare | Lesioni ossidative, esito negativo | Il rame ha indirizzato il danno verso una sequenza hotspot di p53; il ferro-EDTA ha causato danni diffusi; la catalasi e i chelanti dei metalli hanno bloccato le rispettive vie; la guanina ossidata è aumentata |
| Glucosio presente, cellule intatte | Compensazione protettiva nonostante un ciclo più rapido | Il glucosio ha aumentato la riduzione del colorante ma ha abbassato lo stress netto, in accordo con l'apporto di NADPH dalla via dei pentoso fosfati per il riciclo degli antiossidanti |
| Cellule arricchite di ascorbato | Misto: ascorbato consumato, segnale della sonda attenuato | Il colorante ha ossidato progressivamente l'ascorbato intracellulare anche in presenza di glucosio, sopprimendo in parte l'ossidazione della sonda; il costo è stato sostenuto dalle riserve di difesa |
| Animali pretrattati con rotenone, colorante somministrato per primo | Esito positivo a livello tissutale | Il pretrattamento con il colorante ha ridotto le lesioni del DNA mitocondriale indotte dal rotenone nel mesencefalo dei topi, pur aumentando il perossido nei mitocondri isolati |
Il punto è lo schema che emerge dall'insieme delle righe. La produzione di perossido e la protezione biologica sono due assi distinti. Un trattamento può avere un esito negativo sul primo e positivo sul secondo nello stesso momento.
Perché la stessa dose dà risposte diverse
La concentrazione determina la capacità di trasporto degli elettroni, non il loro destino. Il rilascio di perossido dai mitocondri cerebrali è aumentato in modo rilevabile a partire da 50 nM nello studio sui mitocondri cerebrali intatti, mentre per un danno evidente al DNA mitocondriale sono stati necessari 100 uM al buio. È una differenza di circa duemila volte tra il primo segnale e la genotossicità, ma non è un margine di sicurezza. I parametri valutati, i compartimenti e i tempi di esposizione sono diversi, quindi i numeri indicano fenomeni distinti anziché punti su una sola curva. La discussione sulla risposta alla dose colloca questo tipo di divario tra un segnale a basse concentrazioni e un danno a concentrazioni elevate nel contesto più ampio dell'ormesi.
Il substrato determina da dove entrano gli elettroni. I substrati energetici collegati al NADH forniscono al colorante abbondanti equivalenti riducenti sia per la deviazione utile sia per la reazione dispersiva con l'ossigeno. La sintesi spesso citata secondo cui il succinato rende il colorante antiossidante mentre il glutammato lo rende pro-ossidante va oltre ciò che i dati consentono di concludere: la condizione con succinato usata per misurare il perossido nello studio cardiaco conteneva anche rotenone e utilizzava un tessuto e una dose diversi rispetto allo studio cerebrale che ha riscontrato un aumento del perossido con ogni substrato e in ogni stato respiratorio.
La luce cambia il meccanismo, non soltanto l'intensità. Il contrasto più netto nel gruppo di studi è tra 20 uM al buio, senza effetti rilevabili sui frammenti di DNA mitocondriale, e 20 uM sotto luce rossa, che li danneggiano tutti. Confrontare un esperimento illuminato con uno al buio significa confrontare la fotochimica con il ciclo redox.
I metalli trasformano l'ossidante. In assenza di metalli, il ciclo del colorante al buio produce perossido, una molecola diffusibile che le cellule usano anche come segnale. Con rame o ferro accessibili, il colorante ridotto dal NADH alimenta la riduzione del metallo, e il metallo ridotto attiva il perossido formando specie di tipo ossidrilico o specie perossidiche del rame nelle vicinanze del DNA. È così che gli esperimenti in sistemi acellulari con NADH e ioni metallici hanno prodotto, a partire dallo stesso colorante, sia danni selettivi in siti hotspot sia danni diffusi al DNA. È la gestione dei metalli nel compartimento, non il solo colorante, a determinare se questa diramazione sia rilevante.
La disponibilità di substrati energetici determina se la cellula può sostenere il costo. Nelle cellule endoteliali esposte al colorante da 2 a 20 uM, la rimozione del glucosio ha reso evidente il costo ossidante, mentre il suo apporto lo ha eliminato, anche se il glucosio accelerava la riduzione del colorante. Un ciclo più rapido con difese adeguatamente rifornite è preferibile a un ciclo più lento con difese esaurite. Qualsiasi affermazione sull'effetto ossidante che ometta la disponibilità di glucosio o NADPH va considerata incompleta.
Il tessuto determina la dotazione biologica. Le cellule endoteliali rigenerano il NADPH attraverso il metabolismo del glucosio e possiedono riserve citosoliche di antiossidanti. I mitocondri isolati non dispongono di nulla di tutto questo. Il DNA purificato non dispone nemmeno di meccanismi di riparazione. Un risultato ottenuto in una preparazione permette di prevedere ben poco sulle altre; per questo l'articolo previsto sulle risposte specifiche dei diversi tessuti dovrà mantenere distinti questi sistemi.
La misurazione diretta non è la difesa a valle
Molti testi confondono due livelli che gli esperimenti tengono separati. Un livello chiede quanto ossidante sia comparso. L'altro chiede come abbia risposto la cellula.
I saggi del perossido di tipo Amplex sono i più vicini al primo livello, ma anche questi misurano il flusso netto, cioè la produzione meno la distruzione meno l'esportazione. Lo studio sui mitocondri cerebrali ha rilevato cambiamenti su entrambi i fronti: maggiore formazione di perossido e rimozione più lenta di un bolo di perossido aggiunto. Più a valle si trovano l'ossidazione del glutatione, il consumo di ascorbato, la guanina ossidata e le lesioni del DNA che bloccano la polimerasi. Ogni passaggio aggiunge processi biologici tra l'ossidante e il risultato della misurazione.
Gli enzimi antiossidanti regolati da Nrf2 e la biogenesi mitocondriale appartengono al secondo livello. Sono programmi adattativi che un lieve impulso di perossido può attivare, e gli autori dello studio sulla protezione dei mitocondri cerebrali propongono proprio questo innesco da stress lieve, precisando che la catena causale attraverso Nrf2 si basa su lavori precedenti anziché su una loro dimostrazione completa. Una protezione che arriva ore dopo, grazie a nuove proteine, non significa che la chimica iniziale fosse antiossidante. Significa che un piccolo evento pro-ossidante ha consentito una difesa più ampia. Le cautele per interpretare queste affermazioni, compresi i limiti dei saggi e le differenze tra preparazioni, sono trattate nella guida alla lettura della ricerca sul blu di metilene.
Perché i saggi danno risultati discordanti
Una sonda generica come la diidrofluoresceina rileva l'ossidazione della sonda da parte di un ampio insieme di agenti, non una concentrazione di perossido. Dipende dalla chimica delle perossidasi e dell'eme e può non rilevare un aumento del perossido che un saggio Amplex calibrato riesce a cogliere. Lo studio sui mitocondri cerebrali ha osservato un forte aumento del perossido senza un corrispondente segnale di superossido: un motivo per non citare come conclusiva una singola affermazione antiossidante basata su un colorante. La sovrapposizione ottica è un aspetto legittimo da controllare, poiché il colorante assorbe luce visibile vicino alle comuni bande di eccitazione ed emissione; tuttavia, lo studio accurato ha effettuato una calibrazione con quantità note di perossido, ridotto l'esposizione alla luce di eccitazione con variazioni minime del segnale e confermato con un elettrodo separato la rimozione più lenta del perossido. L'interferenza è un controllo da eseguire, non un motivo per scartare automaticamente i risultati.
Il risultato relativo al calcio illustra la stessa esigenza di precisione. L'esposizione acuta al colorante non ha modificato il carico totale di calcio prima della transizione di permeabilità nello studio cardiaco, ma ha migliorato la velocità di captazione del calcio nei mitocondri cerebrali con blocco della catena respiratoria nello studio sui mitocondri cardiaci incentrato sul diabete. Parametri diversi, sistemi diversi, nessuna contraddizione.
Una lista di controllo prima di fidarsi di un verdetto
Considerate ogni verdetto antiossidante o pro-ossidante come un resoconto su un sistema e ponetevi cinque domande. A quale concentrazione e in quale compartimento? Con quale donatore di elettroni e quale accettore concorrente? Alla luce o al buio, e a quale lunghezza d'onda e dose? Con quali metalli disponibili e con quale disponibilità di substrati energetici e riserve antiossidanti? E con quale saggio, che misura il flusso di ossidanti, il danno o la risposta adattativa? Cambiando anche una sola risposta, la stessa molecola può spostarsi nella matrice da protettiva a dannosa senza alcun paradosso.