
Artikel
Bagaimana metilen biru memasuki sel: reduksi, reoksidasi, dan partisi membran
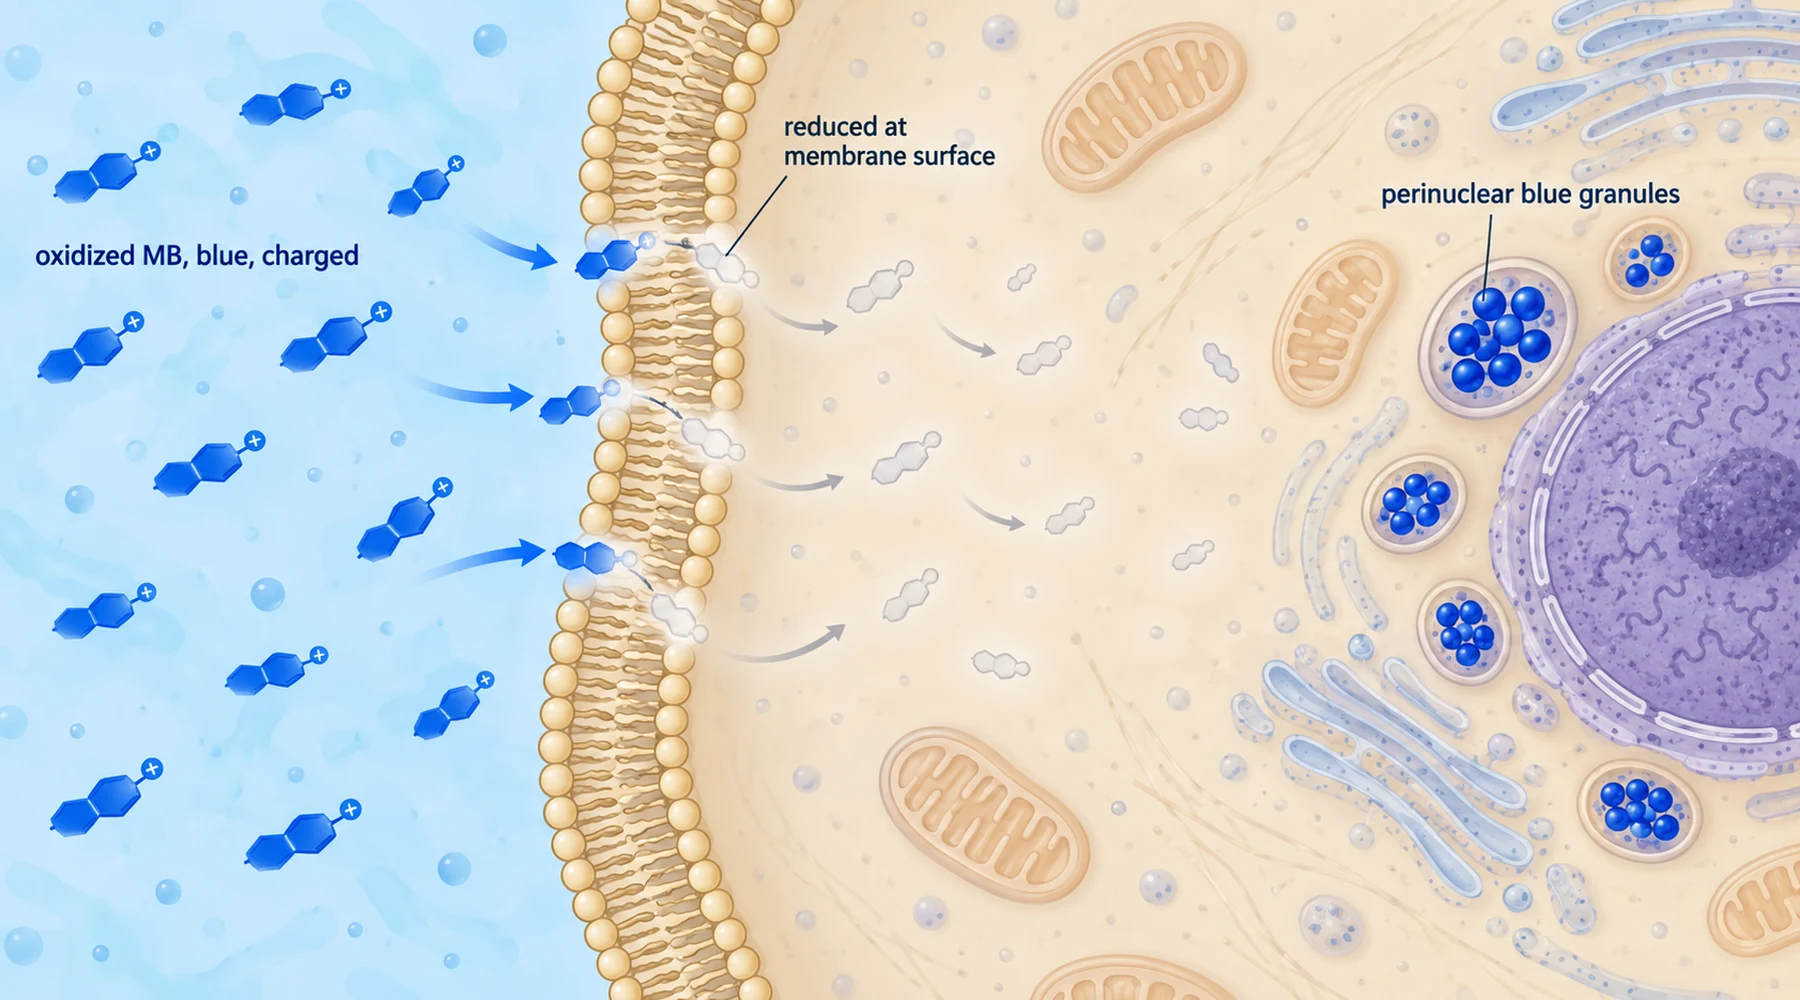
Amati sepiring sel endotel menyerap metilen biru dan penafsiran yang paling jelas justru merupakan penafsiran yang keliru. Medium kehilangan warna birunya, sel memperoleh granula biru, sehingga tampaknya zat warna tersebut pasti melintasi membran sebagai molekul biru. Eksperimen menunjukkan hal sebaliknya. Bentuk biru hampir tidak dapat melintas. Yang melintas adalah bentuk tidak berwarna, dan warna biru yang terlihat di dalam terbentuk di dalam sel setelah molekul tersebut tiba.
Pembalikan ini penting karena menentukan apa yang dapat dan tidak dapat disimpulkan dari pewarnaan. Granula biru menunjukkan zat warna teroksidasi yang mengalami reoksidasi dan terperangkap di dalam organel. Granula tersebut tidak menunjukkan jumlah total zat warna di dalam sel, tidak menunjukkan fraksi tereduksi, dan tidak mengukur efek biologis. Untuk memahami alasannya, ikuti tiga tahapnya: reduksi di permukaan, difusi bentuk tereduksi, lalu reoksidasi dan pemerangkapan di dalam sel.
Kedua bentuk berperilaku seperti molekul yang berbeda
Metilen biru teroksidasi merupakan sistem cincin datar bermuatan positif. Senyawa ini larut dalam air, menyerap cahaya dengan kuat pada sekitar 600 hingga 700 nanometers, dan tampak biru. Muatan itulah yang penting. Molekul bermuatan yang menyukai air tidak mudah melewati membran lipid, sehingga istilah yang digunakan secara hati-hati dalam literatur adalah relatif tidak permeabel terhadap membran, bukan sepenuhnya tidak permeabel.
Metilen biru tereduksi, yang disebut leucomethylene blue, tidak berwarna, tidak bermuatan, dan larut dalam lemak. Hilangkan muatannya dan membran tidak lagi menjadi penghalang. Molekul tereduksi mudah berdifusi melintasinya, dan setelah berada di dalam kompartemen yang lebih mengoksidasi, molekul tersebut dapat kembali kehilangan elektron dan berubah menjadi bentuk biru, bermuatan, dan terperangkap. Karena itu, kimia redoks zat warna ini juga merupakan mekanisme transportasinya. Ubah jumlah elektronnya dan Anda mengubah permeabilitasnya.
Elektron untuk tahap pertama berasal dari sel itu sendiri. Sel mamalia menjalankan transpor elektron melintasi membran plasma, memindahkan ekuivalen pereduksi dari donor intraseluler menuju akseptor di permukaan. Aktivitas transmembran plasma ini merupakan fungsi normal sel, ditemukan pada sebagian besar jenis sel, dan reduktase permukaan endotel yang menangani zat warna tiazina berperilaku seperti reduktase lain dalam satu hal yang sangat informatif: aktivitasnya tetap berlangsung dengan adanya sianida dan azida pada dosis yang menghentikan tahap-tahap berikutnya. Pemisahan inilah yang menjadi kunci seluruh mekanismenya.
Partisi dipahami lebih dahulu, dan hampir menjelaskan penyerapan
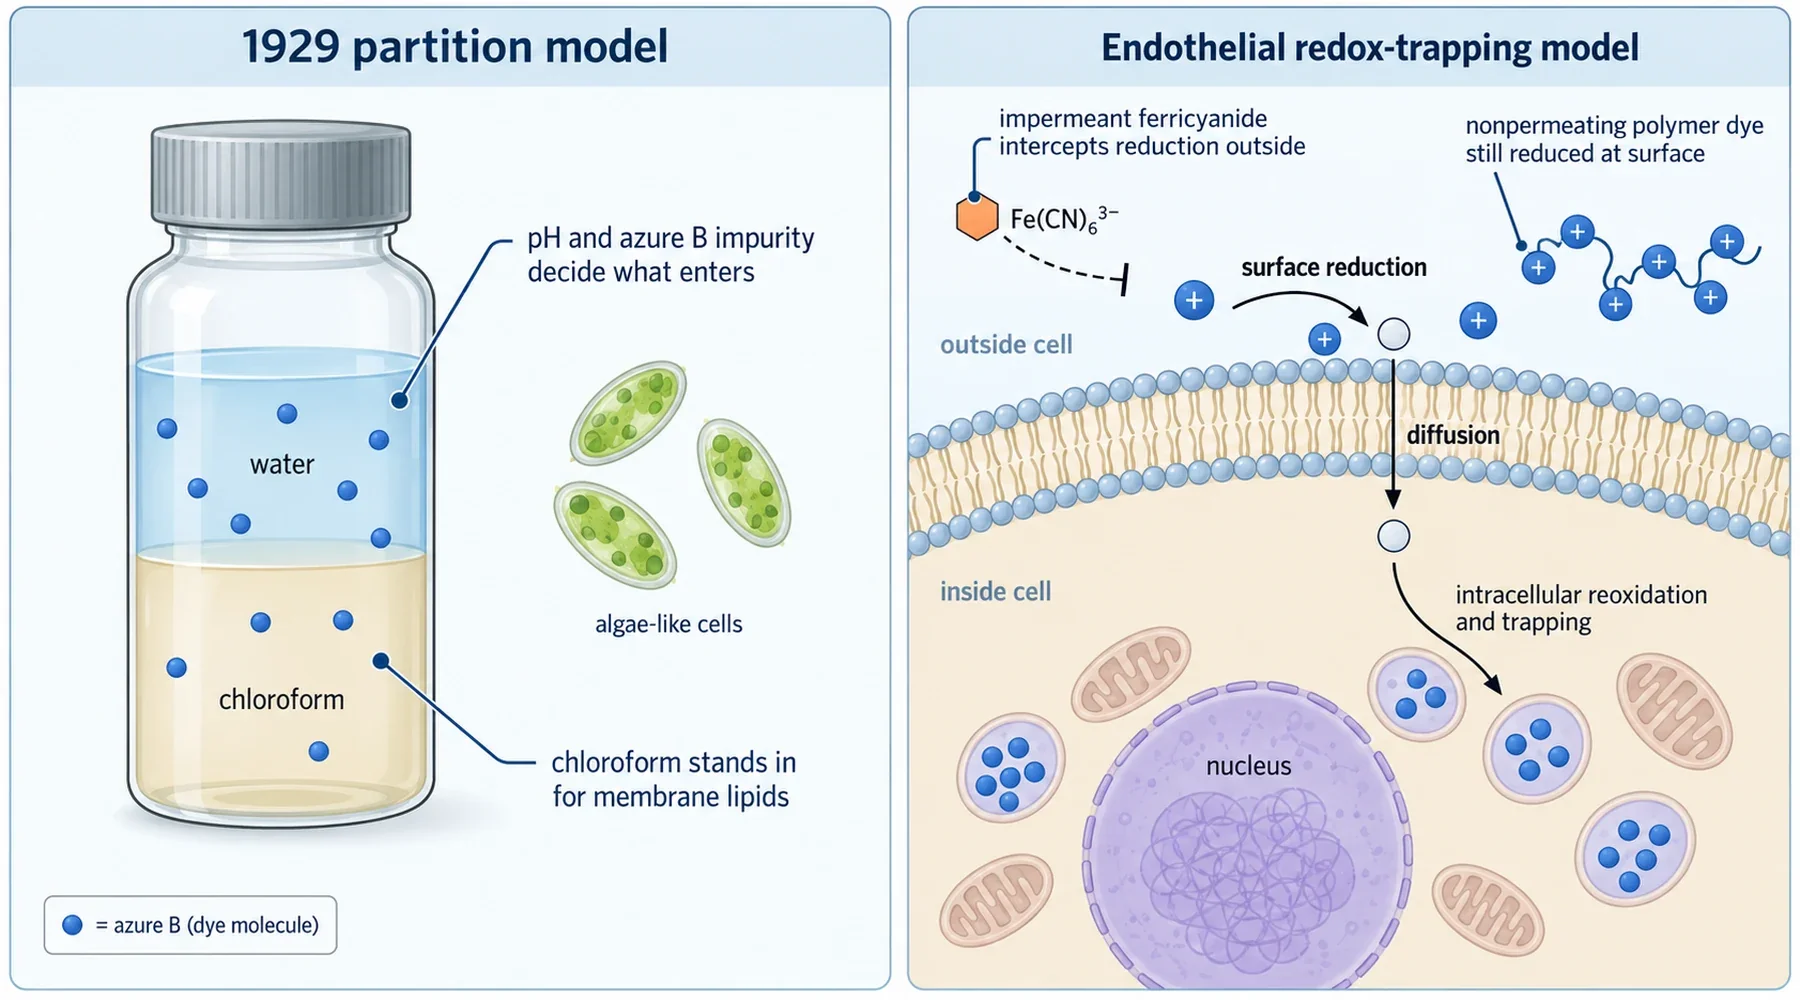
Pada 1929, Marian Irwin di Rockefeller Institute mengajukan pertanyaan yang lebih sederhana. Mungkin masuknya zat warna hanyalah hasil partisi antara air dan lapisan berlemak sel, dan lapisan kloroform dapat mewakili lapisan berlemak tersebut di meja laboratorium. Dalam studi penetrasi spektrofotometriknya, ia mengocok larutan zat warna berair bersama kloroform dan membandingkan jumlah yang berpindah ke fase organik dengan jumlah yang masuk ke sel alga hidup.
Dua temuan dari penelitian tersebut masih layak diperhatikan. Pertama, larutan metilen biru komersial mengandung trimethyl thionine, yang sekarang disebut azure B, dan pengotor tersebut menembus lebih cepat daripada metilen biru itu sendiri, terutama pada pH basa ketika bentuk basa bebas yang larut dalam lipid mendominasi. Sebagian penyerapan yang tampak sebagai metilen biru sebenarnya merupakan penyerapan selektif azure B. Kedua, pH menentukan hasil dengan menentukan keadaan ionisasi, dan sel yang mengalami cedera menerima jauh lebih banyak zat warna daripada sel utuh. Koefisien partisi dan keadaan muatan mengatur apa yang diserap oleh sistem buatan maupun sel hidup, dan kemiripan antara keduanya mendukung gagasan adanya lapisan nonair pada batas sel.
Model tersebut berpandangan jauh ke depan mengenai lipid dan ionisasi, tetapi tidak dapat membedakan zat warna yang berpartisi dalam bentuk aslinya dari zat warna yang secara kimiawi diubah di permukaan, melintas dalam bentuk tersamarkan, lalu diubah kembali di dalam sel. Pembedaan itu membutuhkan eksperimen lain, dan eksperimen tersebut muncul tujuh puluh tahun kemudian pada endotel paru.
Reduksi di luar, pemerangkapan di dalam
Merker dan rekan-rekannya bekerja dengan sel endotel arteri pulmonalis sapi yang dikultur dan mengusulkan urutan tiga tahap: zat warna teroksidasi direduksi di permukaan sel menjadi bentuk lipofilik yang tidak berwarna, bentuk tereduksi berdifusi masuk, dan reoksidasi intraseluler membentuk kembali bentuk teroksidasi yang tidak permeabel terhadap membran sehingga bentuk tersebut terakumulasi. Studi penyerapan tiazina oleh endotel mereka kemudian menguji urutan tersebut dengan mencoba mengganggunya pada titik-titik tertentu.
Alat pertama adalah ferricyanide, akseptor elektron yang tidak dapat memasuki sel. Ketika enzim permukaan mereduksi zat warna biru menjadi bentuk tidak berwarna di luar sel, ferricyanide dapat merebut kembali elektron tersebut dan membentuk kembali zat warna biru di medium sebelum sempat melintas. Selama ferricyanide tersedia dalam jumlah berlebih (10 micromolar zat warna dibandingkan 50 hingga 500 micromolar ferricyanide), penyerapan zat warna hampir berhenti, dan baru setelah ferricyanide habis penyerapan kembali berlangsung pada laju normalnya. Kinetikanya menunjukkan mekanisme yang sama melalui cara kedua. Ferricyanide menghilang dengan laju yang kira-kira konstan, konsisten dengan fluks reduksi permukaan yang stabil yang memasok mediator yang dapat didaur ulang, sementara zat warna ekstraseluler menghilang secara eksponensial seiring berkurangnya cadangannya. Fluks konstan ditambah cadangan yang terus berkurang berarti sinyal ferricyanide melaporkan reduksi yang berlangsung terus-menerus, bukan keluarnya molekul zat warna dari larutan.
Alat kedua menghilangkan tahap penyeberangan sepenuhnya. Kelompok tersebut mengikat toluidine blue O, kerabat dekat tiazina, pada rantai polyacrylamide besar yang terlalu besar untuk memasuki sel dalam keadaan oksidasi apa pun. Sel tetap mereduksi zat warna yang terikat tersebut. Karena itu, reduksi tidak memerlukan akses intraseluler. Mesin molekulernya terekspos di permukaan atau terhubung secara elektrik dengannya.
Kemudian muncul pemisahan yang menjadi dasar judul makalah tersebut. Sianida dan azida pada 2 millimolar sangat menekan akumulasi zat warna, dan di bawah mikroskop inklusi biru tua dan ungu yang biasanya mengelilingi nukleus hampir menghilang. Namun, kedua inhibitor tersebut tidak memperlambat reduksi ekstraseluler: siklus ferricyanide terus berlangsung tanpa berkurang dan zat warna polimer yang tidak dapat menembus sel tetap direduksi. Hambatan terjadi pada tahap berikutnya. Sianida dan azida menghentikan reoksidasi dan sekuestrasi intraseluler, bukan reduksi permukaan. Kontrol viabilitas mendukung penafsiran ini, karena sel mempertahankan enzim penanda sitosoliknya, laktat dehidrogenase, selama perlakuan tersebut, sehingga hilangnya penyerapan bukan sekadar akibat keracunan atau pecahnya membran.
Satu peringatan dari makalah tersebut masih berlaku. Inklusi biru berada di sekitar nukleus tetapi tidak di dalamnya, konsisten dengan oksidasi di dalam organel subseluler, tetapi studi tersebut tidak mengidentifikasi organel mana yang terlibat. Pola serupa pada jenis sel lain pernah disebut sebagai lisosomal berdasarkan bukti yang lemah. Anggap pemerangkapannya telah terbukti, tetapi lokasinya masih bersifat sementara. Pembaca yang ingin mengikuti ke mana elektron bergerak selanjutnya dapat melanjutkan ke transpor elektron mitokondria dan penanganan redoks serta gambaran yang lebih luas mengenai absorpsi dan distribusi berdasarkan rute.
Pewarnaan bukanlah paparan
Studi ketiga menunjukkan apa yang terjadi ketika logika penyerapan ini dipertemukan dengan pembacaan biologis. Scott dan rekan-rekannya menemukan bahwa methyl beta cyclodextrin, torus gula berbentuk cincin, mengikat metilen biru secara langsung, dengan konstanta asosiasi sekitar 310 per molar untuk kompleks inklusi dibandingkan sekitar 5846 per molar untuk dimerisasi zat warna. Pada fibroblas L929, pengikatan ini menghambat pewarnaan sel dan stimulasi penyerapan glukosa: pra-inkubasi dengan cyclodextrin mencegah pewarnaan biru, dan penambahannya setelah pewarnaan mempercepat hilangnya warna. Ketika sinyal optik biru meninggalkan sel, transpor glukosa yang teraktivasi memudar secara paralel dengan sangat erat.
Para penulis menafsirkan korelasi ini sebagai bukti yang lebih mendukung interaksi langsung antara zat warna dan suatu protein dalam jalur aktivasi transporter glukosa dibandingkan mekanisme stres oksidatif yang berlangsung lama. Inferensi tersebut masuk akal tetapi memiliki batas. Eksperimen ini tidak mengidentifikasi proteinnya, tidak menunjukkan pengikatan pada transporter itu sendiri, dan korelasi antara hilangnya warna dan hilangnya efek tidak dapat menyingkirkan setiap jalur yang dimediasi redoks.
Pelajaran yang bertahan lama berkaitan dengan pengukuran. Pewarnaan optik menunjukkan zat warna teroksidasi yang terlihat dan berasosiasi dengan sel. Pewarnaan ini sama sekali tidak menangkap fraksi tereduksi yang tidak berwarna, sehingga sel yang tampak pucat masih dapat menyimpan ekuivalen zat warna, sementara sel yang berwarna sangat kuat menunjukkan zat warna teroksidasi yang terperangkap, bukan total paparan jaringan atau besarnya efek. Peringatan yang sama berlaku pada skala yang lebih besar: membandingkan pewarnaan antarjenis sel, atau menganggap potongan jaringan yang gelap sebagai bukti paparan yang lebih tinggi, mengulangi kesalahan awal dari pengamatan di cawan. Penyerapan merupakan siklus reduksi, difusi, dan reoksidasi, dan setiap cuplikan tunggal dari bentuk biru hanya memperlihatkan satu bagian dari keseluruhan proses tersebut. Konsekuensi praktis untuk pewarnaan dan penanganan laboratorium serta untuk menafsirkan klaim dosis dan paparan mengikuti langsung dari mekanisme ini.