
Artigo
O azul de metileno como antioxidante e prooxidante: que cambia o resultado?
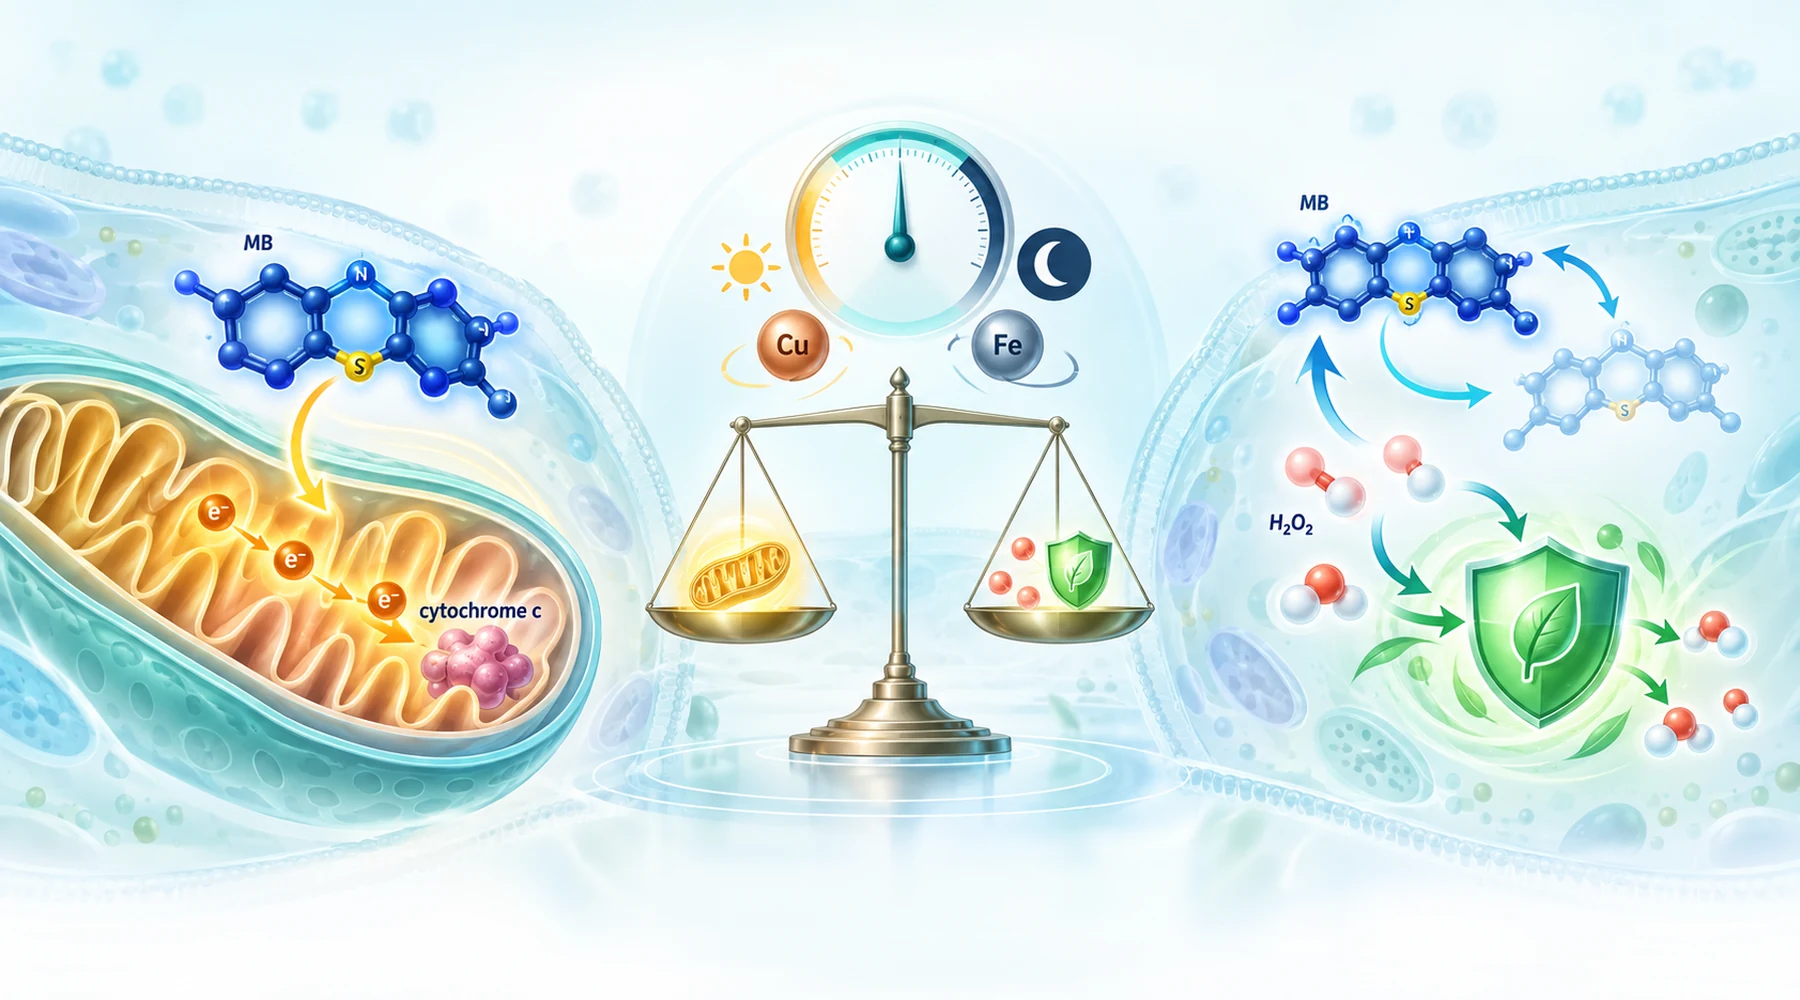
Supoñamos que dous laboratorios analizan o mesmo colorante azul e comunican resultados opostos. No primeiro, as mitocondrias cerebrais illadas respiran mellor e producen máis ATP. No segundo, a mesma preparación libera moito máis peróxido de hidróxeno. Ambos os informes son correctos. Describen o mesmo ciclo visto desde dous extremos, e a confusión comeza cando os lectores toman un extremo pola historia completa.
O erro é preguntar que etiqueta lle corresponde á molécula. O azul de metileno actúa como intermediario para os electróns, como mostra nun contexto máis amplo o mapa das súas dianas na bioloxía celular. O colorante oxidado acepta electróns e convértese en leucoMB incoloro. O leucoMB cede eses electróns e volve ser azul. O que se observa depende de quen doa os electróns, de quen os recibe e de se o sistema pode eliminar o peróxido de hidróxeno producido durante o proceso. A pregunta que paga a pena facer nunca é se o colorante é un antioxidante. É que lle permiten facer as condicións a ese intermediario.
O ciclo que produce ambas as caras
Na escuridade, o ciclo básico é curto. O NADH, o NADPH ou os transportadores da cadea respiratoria reducen o colorante. O colorante reducido ten entón vías de saída que compiten entre si. Pode transferir electróns ao citocromo c e favorecer un fluxo que evita un complexo danado, polo que a respiración e o potencial de membrana se recuperan parcialmente cando se bloquea o complexo I ou III. Ou pode transferir electróns directamente ao osíxeno, o que rexenera a forma azul e produce peróxido de hidróxeno. Como o colorante se rexenera, unha pequena cantidade pode repetir este ciclo moitas veces, consumindo de maneira continua equivalentes redutores e producindo peróxido tamén de maneira continua.
Outras dúas ramificacións cambian por completo a química. O cobre ou o ferro libres converten ese peróxido difusible en oxidantes locais moito máis destrutivos mediante reaccións de tipo Fenton. A luz vermella abre unha vía fotoquímica distinta na que o colorante excitado transfire enerxía ao osíxeno e produce osíxeno singlete, unha especie tratada en detalle na explicación da fotoquímica de tipo I e tipo II. Os ciclos redox na escuridade, o dano amplificado polos metais e o dano fotodinámico son tres mecanismos diferentes que comparten unha mesma molécula de partida.
Matriz de condicións e resultados
A táboa seguinte é o recurso que convén gardar. Cada fila presenta unha variable, a dirección cara á que empurra e o experimento que a sustenta. Positivo significa unha lectura indicativa de protección ou mellora. Adverso significa máis oxidantes, maior esgotamento ou máis dano.
| Condición | Dirección do resultado | Que mostrou o experimento |
|---|---|---|
| Concentración baixa, 0.1 a 1 uM, mitocondrias illadas | Bioenerxética positiva xunto con máis peróxido | 0.1 uM mellorou o consumo de osíxeno en mitocondrias cardíacas de ratas sas e diabéticas; de 100 nM a 1 uM restaurou parcialmente o ATP, o potencial de membrana e a captación de calcio en mitocondrias cerebrais bloqueadas, mentres que a liberación de peróxido aumentou en todas as condicións |
| Concentración máis alta, por riba de 5 uM, células privadas de glicosa | Sinal oxidante adverso | As células endoteliais oxidaron unha sonda xeral de ROS e perderon glutatión reducido por riba de 5 uM cando non había glicosa; engadir glicosa evitou ambos os efectos |
| Substratos do complexo I (glutamato máis malato) | Máis peróxido | Os estudos con mitocondrias cerebrais e cardíacas atoparon unha maior liberación de peróxido con substratos ligados ao NADH |
| Succinato máis rotenona, mitocondrias cardíacas, 0.1 uM | Menos peróxido nese protocolo | A única lectura de peróxido claramente antioxidante do conxunto; cómpre ter en conta que o protocolo incluía rotenona e un tecido diferente, polo que o substrato por si só non o explica |
| Luz vermella, 20 uM máis 630 nm | Dano adverso no ADN | Sen lesións significativas no ADN mitocondrial na escuridade con 20 uM; a mesma concentración con luz vermella danou todos os fragmentos analizados |
| Concentración moi alta na escuridade, 100 uM | Dano selectivo adverso no ADN | Lesións selectivas no ADN mitocondrial en secuencias ricas en purinas, un cambio cualitativo respecto do sinal de peróxido a concentracións nanomolares |
| Cobre ou ferro máis NADH, ADN nun sistema sen células | Lesións oxidativas adversas | O cobre dirixiu o dano a unha secuencia de p53 especialmente susceptible; o ferro con EDTA causou dano amplo; a catalase e os quelantes de metais bloquearon as vías respectivas; aumentou a guanina oxidada |
| Glicosa presente, células intactas | Amortecemento protector malia un ciclo máis rápido | A glicosa aumentou a redución do colorante, pero diminuíu o estrés neto, en consonancia coa subministración de NADPH pola vía das pentosas fosfato para a reciclaxe antioxidante |
| Células cargadas con ascorbato | Mixto: consumo de ascorbato e amortecemento do sinal da sonda | O colorante oxidou progresivamente o ascorbato intracelular mesmo en presenza de glicosa, mentres suprimía parcialmente a oxidación da sonda; a reserva defensiva pagou o custo |
| Animais pretratados con rotenona, colorante administrado primeiro | Resultado tisular positivo | O pretratamento co colorante reduciu as lesións do ADN mitocondrial inducidas pola rotenona no mesencéfalo de ratos, malia aumentar o peróxido nas mitocondrias illadas |
O importante é o patrón que se observa entre as filas. A produción de peróxido e a protección biolóxica son eixes separados. Un tratamento pode ter un resultado adverso no primeiro e positivo no segundo ao mesmo tempo.
Por que a mesma dose dá respostas diferentes
A concentración determina a capacidade de transporte, non o destino. A liberación de peróxido das mitocondrias cerebrais aumentou de maneira detectable a partir de 50 nM nun estudo con mitocondrias cerebrais intactas, mentres que o dano manifesto no ADN mitocondrial requiriu 100 uM na escuridade. Iso supón unha diferenza de aproximadamente dúas mil veces entre o primeiro sinal e a xenotoxicidade, pero non é unha marxe de seguridade. Os parámetros avaliados, os compartimentos e os tempos de exposición difiren, polo que as cifras marcan fenómenos distintos e non puntos dunha mesma curva. A análise da resposta á dose sitúa este tipo de diferenza entre un sinal a baixa concentración e un dano a alta concentración no contexto máis amplo da hormese.
O substrato determina por onde entran os electróns. Os combustibles ligados ao NADH achegan ao colorante abundantes equivalentes redutores tanto para a derivación útil como para a reacción co osíxeno que os desperdicia. O resumo, citado con frecuencia, de que o succinato fai que o colorante sexa antioxidante mentres que o glutamato o fai prooxidante vai máis alá do que permiten os datos, porque a condición de peróxido con succinato do estudo cardíaco tamén contiña rotenona e empregaba un tecido e unha dose diferentes dos do estudo cerebral que atopou un aumento do peróxido con todos os substratos e estados respiratorios.
A luz cambia o mecanismo, non só a magnitude. O contraste máis claro do conxunto é o de 20 uM na escuridade sen ningún efecto detectable sobre os fragmentos de ADN mitocondrial, fronte a 20 uM baixo luz vermella danándoos todos. Quen compara un experimento iluminado cun realizado na escuridade está a comparar fotoquímica con ciclos redox.
Os metais transforman o oxidante. Sen metais, o ciclo do colorante na escuridade produce peróxido, unha molécula difusible que as células tamén empregan como sinal. Con cobre ou ferro accesibles, o colorante reducido polo NADH favorece a redución dos metais, e o metal reducido activa o peróxido para formar especies de tipo hidroxilo ou peróxido de cobre xunto ao ADN. Así foi como un estudo sen células con NADH e ións metálicos produciu tanto dano selectivo en puntos especialmente susceptibles como dano amplo no ADN a partir do mesmo colorante. A xestión dos metais no compartimento, e non só o colorante, determina se esta vía resulta relevante.
A dispoñibilidade de combustible determina se a célula pode asumir o custo. En células endoteliais expostas a entre 2 e 20 uM de colorante, a retirada de glicosa revelou o custo oxidante, mentres que a súa subministración o eliminou, aínda que a glicosa tamén acelerou a redución do colorante. Un ciclo máis rápido con defensas abastecidas funciona mellor ca un ciclo máis lento con defensas esgotadas. Calquera afirmación sobre oxidantes que omita o estado da glicosa ou do NADPH debe considerarse incompleta.
O tecido determina a maquinaria dispoñible. As células endoteliais rexeneran NADPH mediante o metabolismo da glicosa e contan con reservas antioxidantes citosólicas. As mitocondrias illadas non teñen nada diso. O ADN purificado nin sequera dispón de reparación. Un resultado nunha preparación permite predicir pouco sobre as demais, polo que o artigo previsto sobre respostas específicas de cada tecido terá que manter separados estes sistemas.
A medición directa non é a defensa posterior
Moitos textos funden dúas capas que os experimentos manteñen separadas. Unha pregunta canto oxidante apareceu. A outra pregunta como respondeu a célula.
Os ensaios de peróxido de tipo Amplex son os máis próximos á primeira capa, e mesmo eles informan do fluxo neto, é dicir, produción menos destrución menos exportación. O estudo das mitocondrias cerebrais atopou cambios en ambos os lados: formouse máis peróxido e eliminouse máis lentamente unha cantidade de peróxido engadida de golpe. Máis adiante na cadea están a oxidación do glutatión, o consumo de ascorbato, a guanina oxidada e as lesións do ADN que bloquean a polimerase. Cada paso engade bioloxía entre o oxidante e a lectura.
Os encimas antioxidantes regulados por Nrf2 e a bioxénese mitocondrial sitúanse na segunda capa. Son programas adaptativos que un pulso leve de peróxido pode activar, e os autores do estudo sobre a protección das mitocondrias cerebrais propoñen precisamente ese desencadeante de estrés leve, aínda que sinalan que a cadea causal a través de Nrf2 se apoia en estudos previos e non nunha demostración completa realizada por eles. A protección que chega horas despois mediante novas proteínas non significa que a química inicial fose antioxidante. Significa que un pequeno episodio prooxidante conseguiu unha defensa maior. As precaucións para interpretar tales afirmacións, incluídas as limitacións dos ensaios e as diferenzas entre preparacións, son o tema da guía para ler a investigación sobre o azul de metileno.
Por que os ensaios discrepan entre si
Unha sonda xeral como a dihidrofluoresceína informa dunha oxidación ampla da sonda, non dunha concentración de peróxido. Depende da química das peroxidases e do grupo hemo e pode non detectar un aumento de peróxido que si capta un ensaio Amplex calibrado. O estudo das mitocondrias cerebrais observou un peróxido moito máis elevado sen un sinal correspondente de superóxido, o que advirte contra citar unha afirmación antioxidante baseada nun único colorante. A superposición óptica é unha cuestión lexítima que se debe controlar, xa que o colorante absorbe luz visible preto de bandas habituais de excitación e emisión, pero o estudo rigoroso calibrou o ensaio con cantidades coñecidas de peróxido, reduciu a exposición á excitación con poucos cambios no sinal e confirmou unha eliminación máis lenta do peróxido cun eléctrodo independente. A interferencia é algo que hai que comprobar mediante un control, non un motivo para descartar automaticamente os resultados.
O resultado do calcio ilustra a mesma necesidade de precisión. A exposición aguda ao colorante non cambiou a carga total de calcio antes da transición de permeabilidade no estudo cardíaco, pero mellorou a velocidade de captación de calcio en mitocondrias cerebrais bloqueadas no estudo de mitocondrias cardíacas centrado na diabetes. Parámetros diferentes, sistemas diferentes, ningunha contradición.
Unha lista de comprobación antes de confiar nun veredicto
Considere cada veredicto de antioxidante ou prooxidante como un informe sobre un sistema e formule cinco preguntas. A que concentración e en que compartimento. Con que doador de electróns e que aceptor competidor. Con luz ou na escuridade, e a que lonxitude de onda e dose. Con que metais dispoñibles e que combustible e reservas antioxidantes abastecidas. E con que ensaio, medindo fluxo de oxidantes, dano ou resposta adaptativa. Cambie unha soa resposta e a mesma molécula pode pasar na matriz de protectora a daniña sen ningún paradoxo.