
Article
Bleu de méthylène et diabète : transport du glucose et recherche animale expliqués
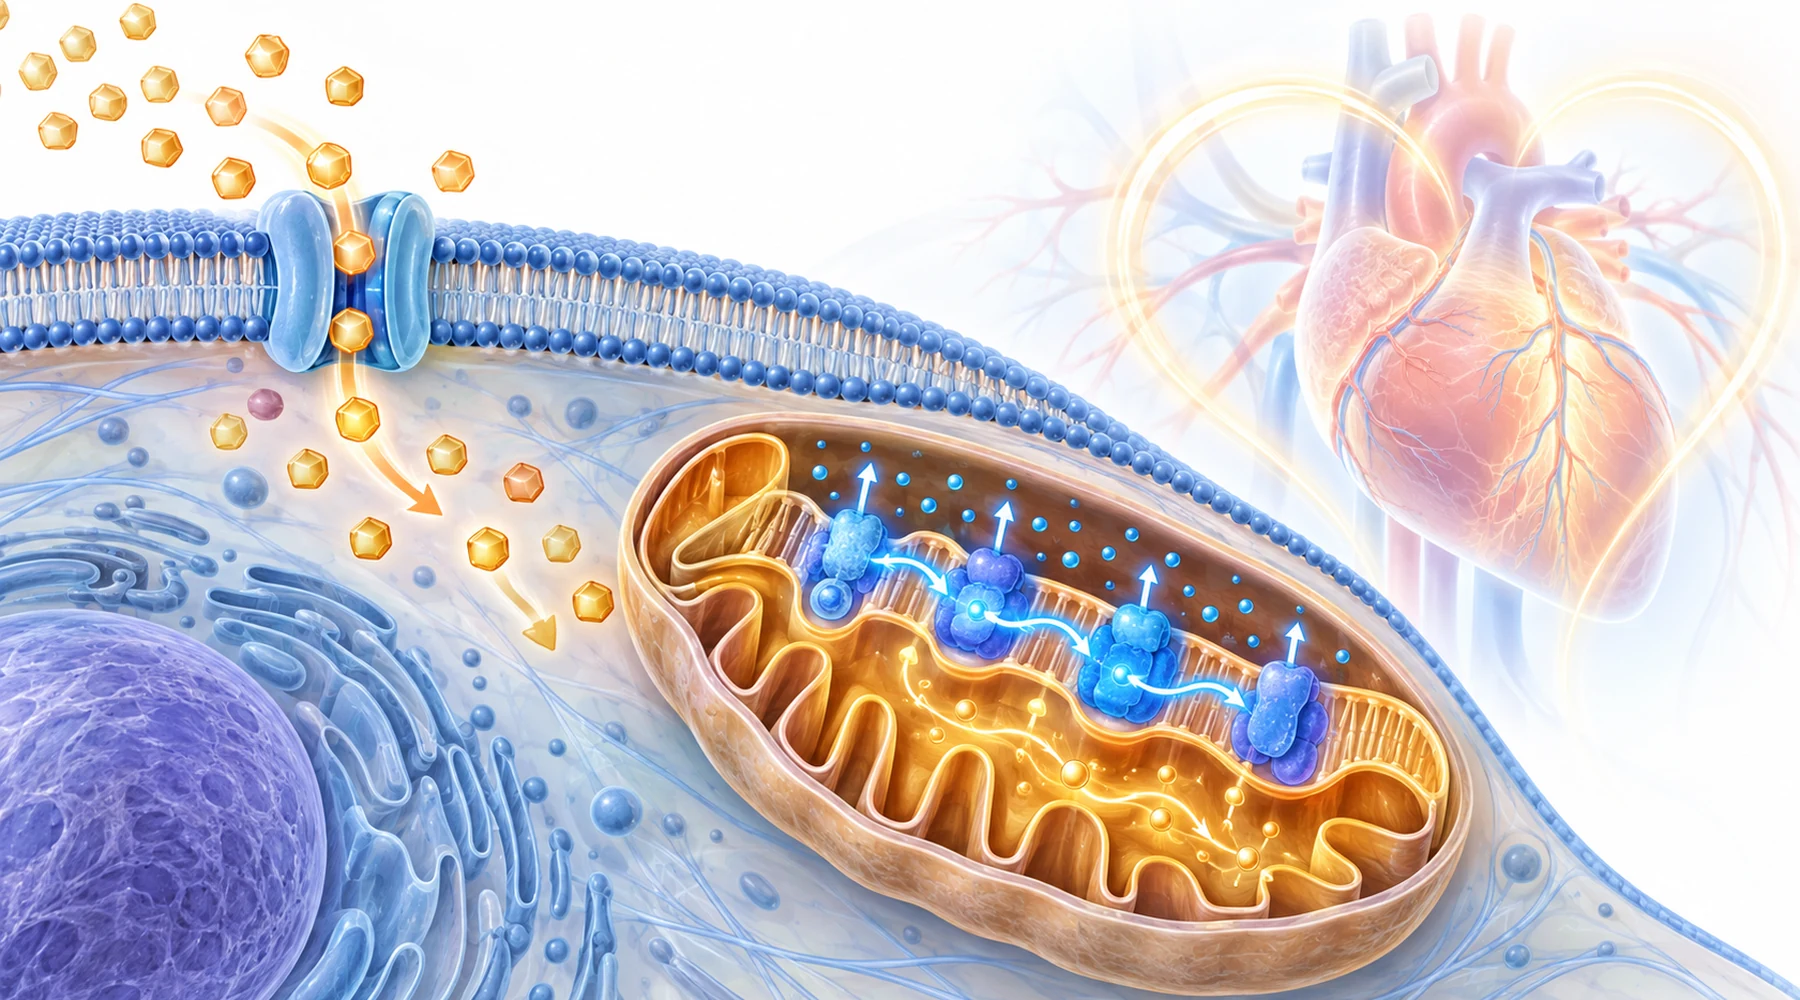
La question derrière l’engouement
Cette conclusion semble logique, mais elle repose sur un mauvais modèle mental. Elle traite trois concepts différents comme s’ils n’en formaient qu’un : l’entrée du glucose dans une cellule isolée en culture, le métabolisme à l’intérieur d’une mitochondrie cardiaque et le contrôle du glucose chez une personne entière. Chacun possède ses propres mesures et ses propres limites. Cet article les distingue.
Réponse courte : le bleu de méthylène active bien le transport du glucose dans une lignée cellulaire bien étudiée, et il modifie la chimie mitochondriale ainsi que certaines mesures cardiaques chez des rats diabétiques. Mais, dans l’étude la plus longue menée chez le rat, il n’a modifié ni la glycémie à jeun ni l’hémoglobine glyquée, et aucune donnée humaine publiée ne montre que le bleu de méthylène administré par voie systémique améliore la glycémie, l’HbA1c ou l’insuline dans le diabète.
Cellules : une entrée plus rapide du glucose grâce aux transporteurs déjà présents dans la membrane
Les chercheurs ont utilisé des fibroblastes L929, une lignée dont l’absorption du glucose dépend d’un seul transporteur, GLUT1. Avec un seul transporteur présent, toute variation de l’absorption doit provenir de ce transporteur.
Lorsque l’équipe a exposé ces cellules au bleu de méthylène, l’absorption du traceur a augmenté en 10 minutes et de manière dépendante de la dose, atteignant environ 800 percent de la valeur initiale à 50 micromolar pendant 45 minutes. Le détail cinétique est important : la vitesse maximale (Vmax) a augmenté tandis que l’affinité (Km) et la quantité de protéine GLUT1 sont restées stables. Le même nombre de portes laissait passer davantage de glucose par minute. Le colorant activait des transporteurs déjà présents dans la membrane au lieu d’en ajouter de nouveaux.
Les contrôles précisent le tableau. La forme réduite (incolore) n’a eu aucun effet. Un oxydant extracellulaire empêchant le colorant de pénétrer dans les cellules a bloqué à la fois la coloration et la stimulation. Les inhibiteurs des voies de l’AMP kinase et de la PI kinase n’ont rien changé, ce qui va à l’encontre d’un rôle de ces deux voies de signalisation bien connues.
La première hypothèse était celle d’un cycle rédox : le colorant transfère des électrons, impose un léger stress à la cellule et les cellules stressées ouvrent leurs portes au glucose. Une étude de suivi a testé cette idée. Les chercheurs ont utilisé de la méthyl-bêta-cyclodextrine, une molécule en forme d’anneau qui piège le bleu de méthylène dans un complexe d’inclusion (constante d’association proche de 310 M-1). Le colorant piégé ne colorait pas les cellules et ne stimulait pas l’absorption, et l’élimination du colorant par lavage suivait étroitement la disparition de l’effet. Leur conclusion allait à l’encontre de l’hypothèse rédox : l’activation provient probablement d’une interaction directe du colorant avec une protéine de la voie d’activation de GLUT1, et non d’un stress oxydatif général.
Le principe opérationnel est limité. Le bleu de méthylène peut activer de manière aiguë et réversible l’absorption via GLUT1 dans les cellules L929, grâce à son entrée dans la cellule suivie d’une interaction au niveau protéique. Cela ne dit rien sur l’insuline, le pancréas ou la glycémie chez un animal vivant. Pour replacer le rôle du colorant comme transporteur d’électrons dans son contexte, voir comment le bleu de méthylène agit comme transporteur d’électrons. Pour les règles d’interprétation des études cellulaires, voir comment lire les recherches sur le bleu de méthylène.
Rats diabétiques : cœur modifié, glycémie inchangée
Les travaux chez l’animal passent à un concept différent : le cœur diabétique. Les deux études chez le rat ont utilisé de la streptozotocine, une toxine qui détruit les cellules bêta productrices d’insuline et crée un état ressemblant au diabète de type 1. Les lecteurs recherchant des informations sur le bleu de méthylène et le diabète de type 2 doivent noter cette différence dès le départ. Il ne s’agit pas de modèles de type 2.
Dans l’étude chronique, des rats Lewis mâles ont reçu 10 mg par kg par jour dans l’eau de boisson pendant 11 semaines, avec de faibles doses d’insuline destinées à prévenir le dépérissement sans normaliser le glucose. Dans les mitochondries cardiaques, le colorant a favorisé l’oxydation du NADH, augmenté le NAD+ et accru l’activité désacétylase de Sirtuin 3. La protéomique a révélé une acétylation plus faible sur 83 sites de 34 protéines mitochondriales impliquées dans l’oxydation des graisses, le cycle de l’acide citrique et le transport des électrons. L’oxydation des graisses à longue chaîne et l’activité de l’hydroxyacyl-CoA déshydrogénase ont diminué, ce qui a été interprété comme un allègement de la dépendance excessive et rigide du cœur diabétique envers les graisses. Les volumes et la fraction d’éjection se sont améliorés et un marqueur d’hypertrophie s’est normalisé, tandis que les pressions et la vitesse de contraction sont restées diminuées.
Voici le résultat le plus important : la glycémie n’a pas changé. Le glucose à jeun et hors jeûne est resté élevé, l’HbA1c est restée proche de 5.6 percent chez les rats diabétiques traités comme non traités, sans effet significatif du traitement. Le colorant n’a pas non plus corrigé le défaut de respiration des complexes I et II dans les mitochondries isolées. La fonction cardiaque s’est améliorée selon certaines mesures, tandis que le contrôle du glucose et le défaut respiratoire central ne se sont pas améliorés. Des critères distincts sont restés distincts.
La deuxième étude a travaillé à une échelle plus réduite : des mitochondries isolées de cœurs sains et de cœurs diabétiques depuis deux mois, exposées à une seule faible dose de 0.1 micromolar pendant la mesure. La consommation d’oxygène a augmenté aussi bien avec les substrats du complexe I qu’avec ceux du complexe II. Mais la libération de peroxyde d’hydrogène variait selon le carburant : elle augmentait avec le glutamate plus malate et diminuait avec le succinate. La rétention du calcium n’a pas changé. Il s’agit de pharmacologie mitochondriale, et non d’un essai sur la fonction cardiaque ou le glucose. La leçon est que le colorant n’est pas un antioxydant uniforme. L’augmentation ou la diminution de la libération d’oxydants dépend du substrat utilisé par la mitochondrie. Pour un contenu connexe, voir le bleu de méthylène dans la recherche cardiovasculaire.
Tableau des modèles et des critères : ce qui a été testé, ce qui a changé et ce qui n’a pas changé
| Modèle | Ce qu’a fait le bleu de méthylène | Critère mesuré | Résultat |
|---|---|---|---|
| Fibroblastes L929, GLUT1 uniquement, absorption du traceur | Activation aiguë des transporteurs existants, Vmax en hausse, Km inchangé, aucune nouvelle protéine GLUT1 | Vitesse d’absorption du glucose dans la culture | Augmentation jusqu’à ~8 fold à 50 micromolar, réversible après lavage |
| Fibroblastes L929 plus piège à cyclodextrine | Colorant séquestré à l’extérieur des cellules, disparition de la coloration | Stimulation de l’absorption | Bloquée parallèlement à la coloration, ce qui favorise l’hypothèse d’une interaction protéique directe plutôt que celle d’un stress rédox général |
| Rats diabétiques STZ, 10 mg/kg/day par voie orale, 11 semaines | Oxydation du NADH, NAD+ plus élevé, activité de Sirtuin 3 plus élevée, 83 sites mitochondriaux désacétylés, oxydation des graisses à longue chaîne réduite | Volumes cardiaques, fraction d’éjection, marqueur d’hypertrophie | Amélioration partielle (volumes, fraction d’éjection, ANP normalisé ; pressions et dP/dt toujours diminués) |
| Même étude chronique chez le rat | Même posologie | Glucose à jeun, glucose hors jeûne, HbA1c | Aucun changement significatif ; le diabète est resté présent |
| Même étude chronique chez le rat, mitochondries isolées | Administration orale chronique puis respiration ex vivo | Phosphorylation oxydative soutenue par les complexes I et II | Défaut non corrigé |
| Mitochondries cardiaques isolées saines et diabétiques, 0.1 micromolar en aigu | Réorientation des électrons pendant la respirométrie | Consommation d’oxygène | Augmentation avec les substrats des complexes I et II |
| Même étude mitochondriale aiguë | Même posologie | Libération de peroxyde d’hydrogène | Dépendante du substrat : en hausse avec glutamate/malate, en baisse avec succinate |
| Humains, administration systémique | Aucun essai publié avec un critère glycémique principal et des résultats disponibles | HbA1c, glucose à jeun, insuline | Aucune amélioration publiée trouvée |
Chez l’être humain : les données glycémiques sont presque inexistantes
Un essai peut étudier des plaies chez des personnes diabétiques sans étudier le contrôle du glucose, et une procédure dentaire peut rapporter l’HbA1c comme mesure secondaire sans tester un traitement du diabète.
Un essai enregistré, NCT05850611, prévoit l’administration orale de bleu de méthylène (70 mg dans du lait, quatre semaines) pour l’ulcère du pied diabétique, avec le glucose à jeun, l’insuline et l’HbA1c parmi les mesures, mais ne publie aucun résultat. Une petite étude pilote publiée a associé un gel de plasma riche en plaquettes à une faible dose de colorant oral pour l’ulcère du pied et a rapporté des résultats concernant la plaie et l’oxygénation, et non des résultats glycémiques. Des essais dentaires ayant appliqué localement le colorant comme antimicrobien activé par la lumière chez des patients atteints de parodontite et de diabète n’ont trouvé aucun avantage significatif sur l’HbA1c. Un colorant appliqué dans une poche gingivale relève d’un concept différent d’un traitement métabolique systémique ; ces résultats nuls ne permettent donc pas non plus de conclure sur une administration orale.
Résumé factuel : aucune donnée humaine publiée ne montre que le bleu de méthylène administré par voie systémique améliore l’HbA1c, le glucose à jeun ou l’insuline dans le diabète. L’absence de données probantes ne prouve pas l’absence d’effet, mais elle ne permet pas de présenter l’absorption cellulaire ou les résultats observés dans le cœur du rat comme une preuve de contrôle du glucose. Pour connaître les limites de sécurité avant toute expérimentation, notamment le risque de syndrome sérotoninergique avec des antidépresseurs courants, voir sécurité du bleu de méthylène et interactions médicamenteuses.
Comment utiliser ces données sans se tromper
Imaginez trois machines. La première est une porte à glucose dans une cellule cultivée. La deuxième est une mitochondrie dans le cœur d’un rat. La troisième est une personne diabétique, avec un pancréas, un foie, des muscles, des reins, des médicaments et des repas. Il est démontré que le colorant agit sur les machines un et deux. Il n’a pas été démontré que la machine trois répond par un meilleur contrôle du glucose.
Toute la distinction de cet article tient dans ce paragraphe. Une affirmation sur l’utilisation du bleu de méthylène dans le diabète qui s’appuie sur l’activation d’un transporteur ou l’acétylation mitochondriale plutôt que sur un critère glycémique change de sujet. Les observations concernant Sirtuin 3 et l’oxydation des graisses restent à surveiller, mais l’expérience déterminante à attendre est précise : un essai contrôlé chez des personnes diabétiques mesurant l’HbA1c, le glucose à jeun ou l’insuline comme critère principal. :::