
Article
Bleu de méthylène comme antioxydant et pro-oxydant : qu’est-ce qui change le résultat ?
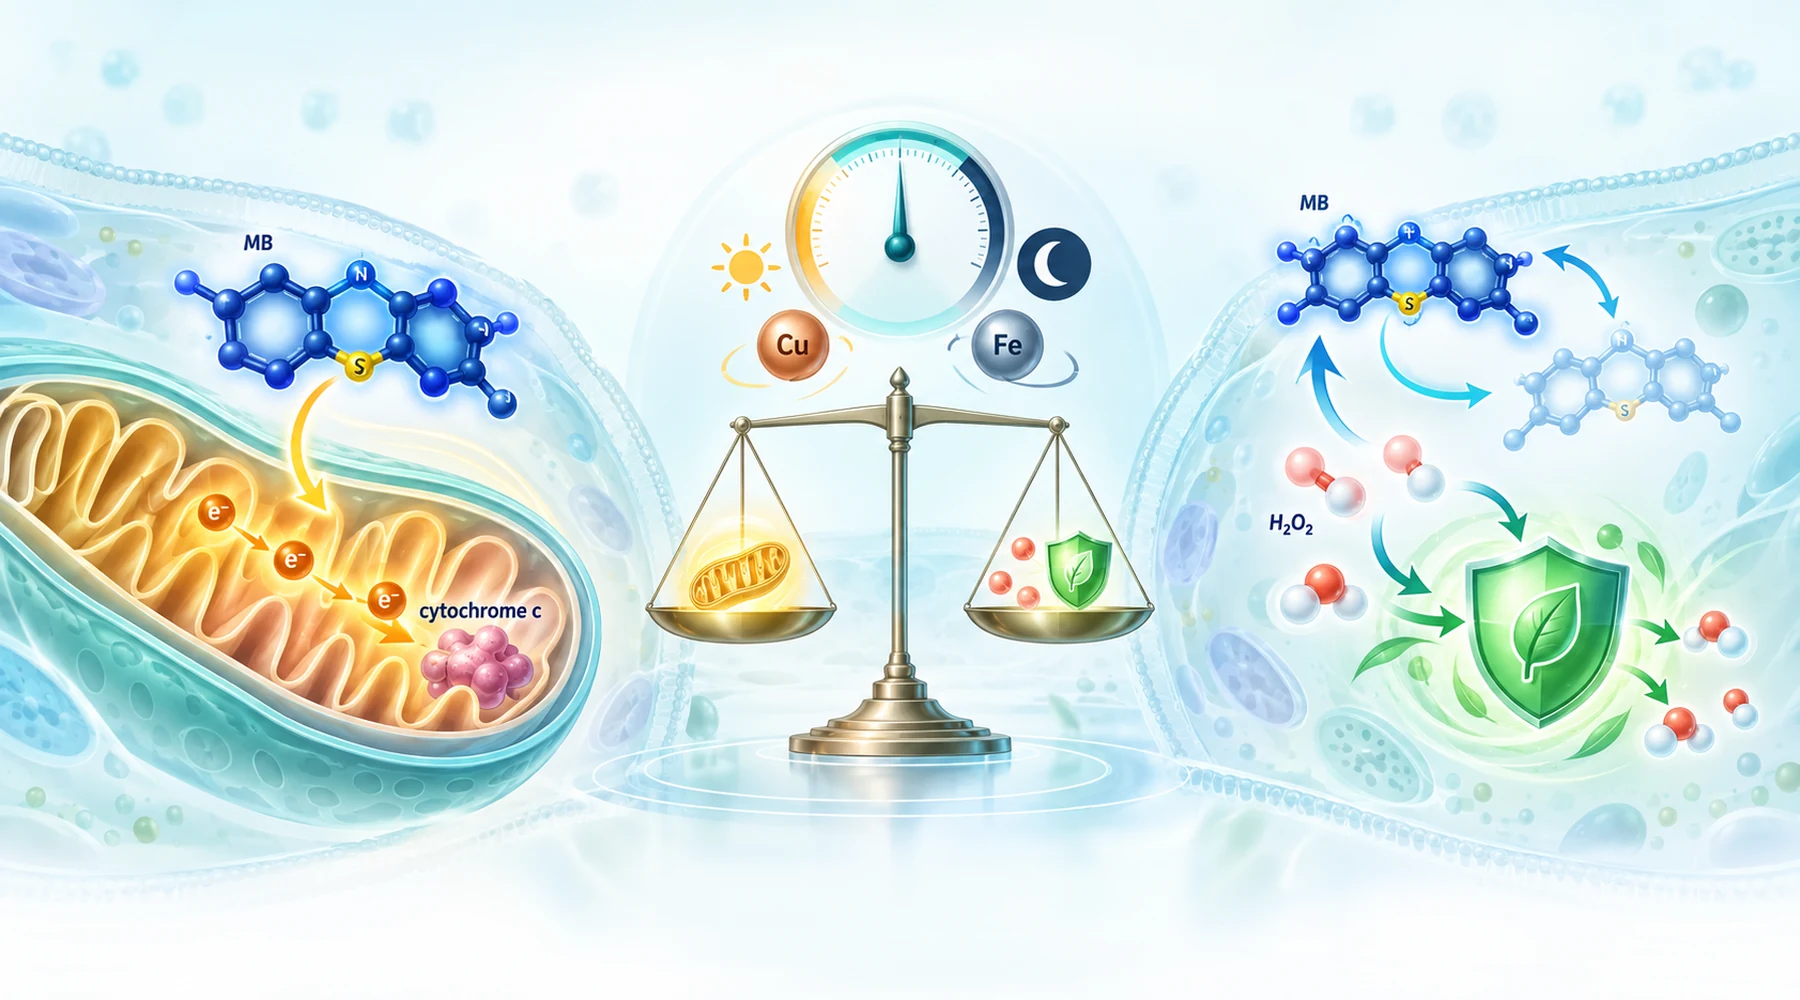
Supposons que deux laboratoires testent le même colorant bleu et rapportent des résultats opposés. Dans le premier, des mitochondries cérébrales isolées respirent mieux et produisent davantage d’ATP. Dans le second, la même préparation libère beaucoup plus de peroxyde d’hydrogène. Les deux résultats sont corrects. Ils décrivent le même cycle observé depuis deux extrémités, et la confusion commence lorsque les lecteurs prennent l’une de ces extrémités pour l’ensemble du phénomène.
L’erreur consiste à demander quelle étiquette convient à la molécule. Le bleu de méthylène est un relais d’électrons, comme le montre dans un contexte plus large la carte de ses cibles en biologie cellulaire. Le colorant oxydé accepte des électrons et devient du leucoMB incolore. Le leucoMB transmet ensuite ces électrons et redevient bleu. Ce que vous observez dépend de l’identité du donneur d’électrons, de celle du receveur et de la capacité du système à éliminer le peroxyde d’hydrogène produit en chemin. La question pertinente n’est jamais de savoir si le colorant est un antioxydant. Il faut demander ce que les conditions permettent au relais de faire.
Le cycle qui produit les deux effets
Dans l’obscurité, la boucle centrale est courte. Le NADH, le NADPH ou des transporteurs de la chaîne respiratoire réduisent le colorant. Le colorant réduit dispose alors de plusieurs voies concurrentes. Il peut transmettre des électrons au cytochrome c et soutenir le flux en contournant un complexe endommagé, ce qui explique pourquoi la respiration et le potentiel membranaire se rétablissent partiellement lors d’un blocage des complexes I ou III. Il peut aussi transmettre directement des électrons à l’oxygène, ce qui régénère la forme bleue et produit du peroxyde d’hydrogène. Comme le colorant est régénéré, une petite quantité peut répéter cette boucle de nombreuses fois, en consommant continuellement des équivalents réducteurs et en produisant continuellement du peroxyde.
Deux ramifications supplémentaires modifient complètement la chimie. Le cuivre ou le fer libres convertissent ce peroxyde diffusible en oxydants locaux beaucoup plus destructeurs par des réactions de type Fenton. La lumière rouge ouvre une branche photochimique distincte dans laquelle le colorant excité transfère de l’énergie à l’oxygène et produit de l’oxygène singulet, une espèce décrite en détail dans l’explication de la photochimie de type I et de type II. Le cycle redox dans l’obscurité, les dommages amplifiés par les métaux et les dommages photodynamiques sont trois mécanismes différents qui partagent simplement la même molécule de départ.
Matrice des conditions et des résultats
Le tableau ci-dessous est l’élément à retenir. Chaque ligne présente une variable, la direction dans laquelle elle pousse le résultat et l’expérience correspondante. Positif signifie une mesure protectrice ou améliorée. Défavorable signifie davantage d’oxydant, davantage d’épuisement ou davantage de dommages.
| Condition | Direction du résultat | Ce que l’expérience a montré |
|---|---|---|
| Faible concentration, 0.1 to 1 uM, mitochondries isolées | Bioénergétique positive plus peroxyde plus élevé | 0.1 uM a amélioré la consommation d’oxygène dans les mitochondries cardiaques de rats sains et diabétiques ; 100 nM to 1 uM a partiellement restauré l’ATP, le potentiel membranaire et l’absorption du calcium dans des mitochondries cérébrales bloquées, tandis que la libération de peroxyde augmentait dans toutes les conditions |
| Concentration plus élevée, above 5 uM, cellules privées de glucose | Signal oxydant défavorable | Les cellules endothéliales ont oxydé une sonde générale des ROS et perdu du glutathion réduit above 5 uM en l’absence de glucose ; l’ajout de glucose a empêché les deux phénomènes |
| Substrats du complexe I (glutamate plus malate) | Davantage de peroxyde | Les travaux sur les mitochondries cérébrales et cardiaques ont tous deux constaté une augmentation de la libération de peroxyde avec des substrats liés au NADH |
| Succinate plus roténone, mitochondries cardiaques, 0.1 uM | Moins de peroxyde dans ce protocole | Le seul résultat de peroxyde clairement antioxydant de l’ensemble ; à noter que le protocole comprenait de la roténone et utilisait un tissu différent, de sorte que le substrat seul ne suffit pas à l’expliquer |
| Lumière rouge, 20 uM plus 630 nm | Dommages à l’ADN défavorables | Aucune lésion significative de l’ADN mitochondrial dans l’obscurité à 20 uM ; la même concentration sous lumière rouge a endommagé chaque fragment testé |
| Très forte concentration dans l’obscurité, 100 uM | Dommages sélectifs à l’ADN défavorables | Lésions sélectives de l’ADN mitochondrial dans des séquences riches en purines, un changement d’échelle par rapport au signal de peroxyde nanomolaire |
| Cuivre ou fer plus NADH, ADN acellulaire | Lésions oxydatives défavorables | Le cuivre a dirigé les dommages vers une séquence hotspot de p53 ; le fer EDTA a provoqué des dommages étendus ; la catalase et les chélateurs de métaux ont bloqué les voies correspondantes ; la guanine oxydée a augmenté |
| Glucose présent, cellules intactes | Tamponnement protecteur malgré un cycle plus rapide | Le glucose a augmenté la réduction du colorant tout en diminuant le stress net, ce qui concorde avec l’apport de NADPH par la voie des pentoses phosphates pour le recyclage des antioxydants |
| Cellules chargées en ascorbate | Mixte : ascorbate consommé, signal de la sonde tamponné | Le colorant a progressivement oxydé l’ascorbate intracellulaire même en présence de glucose, tout en supprimant partiellement l’oxydation de la sonde ; la réserve de défense en a payé le coût |
| Animaux prétraités à la roténone, colorant administré en premier | Résultat tissulaire positif | Le prétraitement par le colorant a réduit les lésions de l’ADN mitochondrial induites par la roténone dans le mésencéphale de souris malgré une augmentation du peroxyde dans les mitochondries isolées |
Le motif qui se dégage de l’ensemble des lignes est l’essentiel. La production de peroxyde et la protection biologique sont deux axes distincts. Un traitement peut obtenir simultanément un résultat défavorable sur le premier et positif sur le second.
Pourquoi la même dose donne des réponses différentes
La concentration détermine la capacité de navette, pas le devenir. La libération de peroxyde par les mitochondries cérébrales augmentait de manière détectable à partir de 50 nM dans des travaux sur des mitochondries cérébrales intactes, tandis que des dommages manifestes à l’ADN mitochondrial nécessitaient 100 uM dans l’obscurité. Cela représente un écart d’environ deux mille fois entre le premier signal et la génotoxicité, mais ce n’est pas une marge de sécurité. Les critères d’évaluation, les compartiments et les durées d’exposition diffèrent ; ces valeurs correspondent donc à des phénomènes distincts plutôt qu’à des points sur une même courbe. La discussion sur la relation dose-réponse replace cet écart entre signal faible et dommages élevés dans le contexte plus large de l’hormèse.
Le substrat détermine où les électrons entrent. Les carburants liés au NADH fournissent au colorant une abondance d’équivalents réducteurs, à la fois pour le contournement utile et pour la réaction improductive avec l’oxygène. Le résumé souvent cité selon lequel le succinate rend le colorant antioxydant tandis que le glutamate le rend pro-oxydant va au-delà des données, car la condition de mesure du peroxyde avec succinate dans l’étude cardiaque contenait aussi de la roténone et utilisait un tissu et une dose différents de ceux des travaux sur le cerveau, qui ont constaté une augmentation du peroxyde avec chaque substrat et dans chaque état respiratoire.
La lumière change le mécanisme, pas seulement son ampleur. Le contraste le plus net de l’ensemble est celui de 20 uM dans l’obscurité, sans effet détectable sur les fragments d’ADN mitochondrial, contre 20 uM sous lumière rouge, qui les endommage tous. Comparer une expérience éclairée à une expérience dans l’obscurité revient à comparer la photochimie au cycle redox.
Les métaux transforment l’oxydant. Sans métaux, le cycle du colorant dans l’obscurité produit du peroxyde, une molécule diffusible que les cellules utilisent également comme signal. En présence de cuivre ou de fer accessibles, le colorant réduit par le NADH alimente la réduction des métaux, et le métal réduit active le peroxyde pour former des espèces de type hydroxyle ou des espèces cuivre-peroxyde à proximité de l’ADN. C’est ainsi que des travaux acellulaires avec du NADH et des ions métalliques ont produit, à partir du même colorant initial, des dommages à l’ADN à la fois sélectifs pour certains hotspots et largement distribués. La gestion des métaux dans le compartiment, et non le colorant seul, détermine l’importance de cette branche.
L’état énergétique détermine si la cellule peut en assumer le coût. Dans des cellules endothéliales exposées à 2 to 20 uM de colorant, le retrait du glucose a révélé le coût oxydant, tandis que l’apport de glucose l’a effacé, même si le glucose accélérait aussi la réduction du colorant. Un cycle plus rapide avec des défenses approvisionnées vaut mieux qu’un cycle plus lent avec des défenses épuisées. Toute affirmation sur les oxydants qui omet l’état du glucose ou du NADPH doit être considérée comme incomplète.
Le tissu détermine le matériel biologique disponible. Les cellules endothéliales régénèrent le NADPH par le métabolisme du glucose et disposent de réserves antioxydantes cytosoliques. Les mitochondries isolées ne disposent d’aucun de ces éléments. L’ADN purifié ne dispose même pas de mécanismes de réparation. Un résultat obtenu dans une préparation permet peu de prédire les autres, raison pour laquelle l’article prévu sur les réponses spécifiques aux tissus devra maintenir ces systèmes séparés.
Mesure directe et défense en aval ne sont pas la même chose
De nombreux textes confondent deux niveaux que les expériences distinguent. Le premier demande quelle quantité d’oxydant est apparue. Le second demande comment la cellule y a répondu.
Les tests de peroxyde de type Amplex sont les plus proches du premier niveau, et même eux mesurent un flux net, c’est-à-dire la production moins la destruction moins l’exportation. L’étude sur les mitochondries cérébrales a observé un déplacement des deux côtés : davantage de peroxyde formé et une élimination plus lente d’un bolus de peroxyde ajouté. Plus en aval se trouvent l’oxydation du glutathion, la consommation d’ascorbate, la guanine oxydée et les lésions de l’ADN bloquant la polymérase. Chaque étape ajoute de la biologie entre l’oxydant et la mesure.
Les enzymes antioxydantes régulées par Nrf2 et la biogenèse mitochondriale appartiennent au second niveau. Ce sont des programmes adaptatifs qu’une légère impulsion de peroxyde peut déclencher, et les auteurs de l’étude sur la protection des mitochondries cérébrales proposent précisément ce déclenchement par un stress léger, tout en précisant que la chaîne causale passant par Nrf2 repose sur des travaux antérieurs plutôt que sur une démonstration complète dans leur propre étude. Une protection qui apparaît plusieurs heures plus tard grâce à de nouvelles protéines ne signifie pas que la chimie initiatrice était antioxydante. Cela signifie qu’un petit événement pro-oxydant a déclenché une défense plus importante. Les garde-fous nécessaires pour interpréter ce type d’affirmations, notamment les limites des tests et les différences entre préparations, font l’objet du guide de lecture des recherches sur le bleu de méthylène.
Pourquoi les tests ne concordent pas entre eux
Une sonde générale telle que la dihydrofluorescéine indique une oxydation globale de la sonde, pas une concentration de peroxyde. Elle dépend de la chimie des peroxydases et de l’hème et peut ne pas détecter une hausse du peroxyde qu’un test Amplex étalonné détecte. L’étude sur les mitochondries cérébrales a constaté une forte augmentation du peroxyde sans signal correspondant de superoxyde, ce qui met en garde contre toute affirmation sur un effet antioxydant reposant sur une seule sonde colorée. Le chevauchement optique constitue une question de contrôle légitime, puisque le colorant absorbe la lumière visible à proximité des bandes d’excitation et d’émission couramment utilisées, mais l’étude rigoureuse a étalonné les mesures avec du peroxyde de concentration connue, réduit l’exposition à l’excitation avec peu de changement du signal et confirmé le ralentissement de l’élimination du peroxyde avec une électrode distincte. Les interférences sont un contrôle à effectuer, pas un motif de rejet automatique.
Le résultat concernant le calcium illustre le même besoin de précision. Dans l’étude cardiaque, l’administration aiguë du colorant n’a pas modifié la charge totale en calcium avant la transition de perméabilité, mais elle a amélioré la vitesse d’absorption du calcium dans des mitochondries cérébrales bloquées dans l’étude sur les mitochondries cardiaques axée sur le diabète. Critères d’évaluation différents, systèmes différents, aucune contradiction.
Une liste de contrôle avant de faire confiance à un verdict
Considérez tout verdict « antioxydant » ou « pro-oxydant » comme un rapport portant sur un système, puis posez cinq questions. À quelle concentration et dans quel compartiment. Avec quel donneur d’électrons et quel accepteur concurrent. Sous lumière ou dans l’obscurité, et à quelle longueur d’onde et quelle dose. Avec quels métaux disponibles, et avec quelles réserves énergétiques et antioxydantes approvisionnées. Et avec quel test, mesurant un flux d’oxydants, des dommages ou une réponse adaptative. Modifiez une seule de ces réponses et la même molécule peut passer, dans la matrice, d’un effet protecteur à un effet dommageable sans qu’il y ait le moindre paradoxe.