
Artículo
Los experimentos que vincularon el azul de metileno con la respiración celular
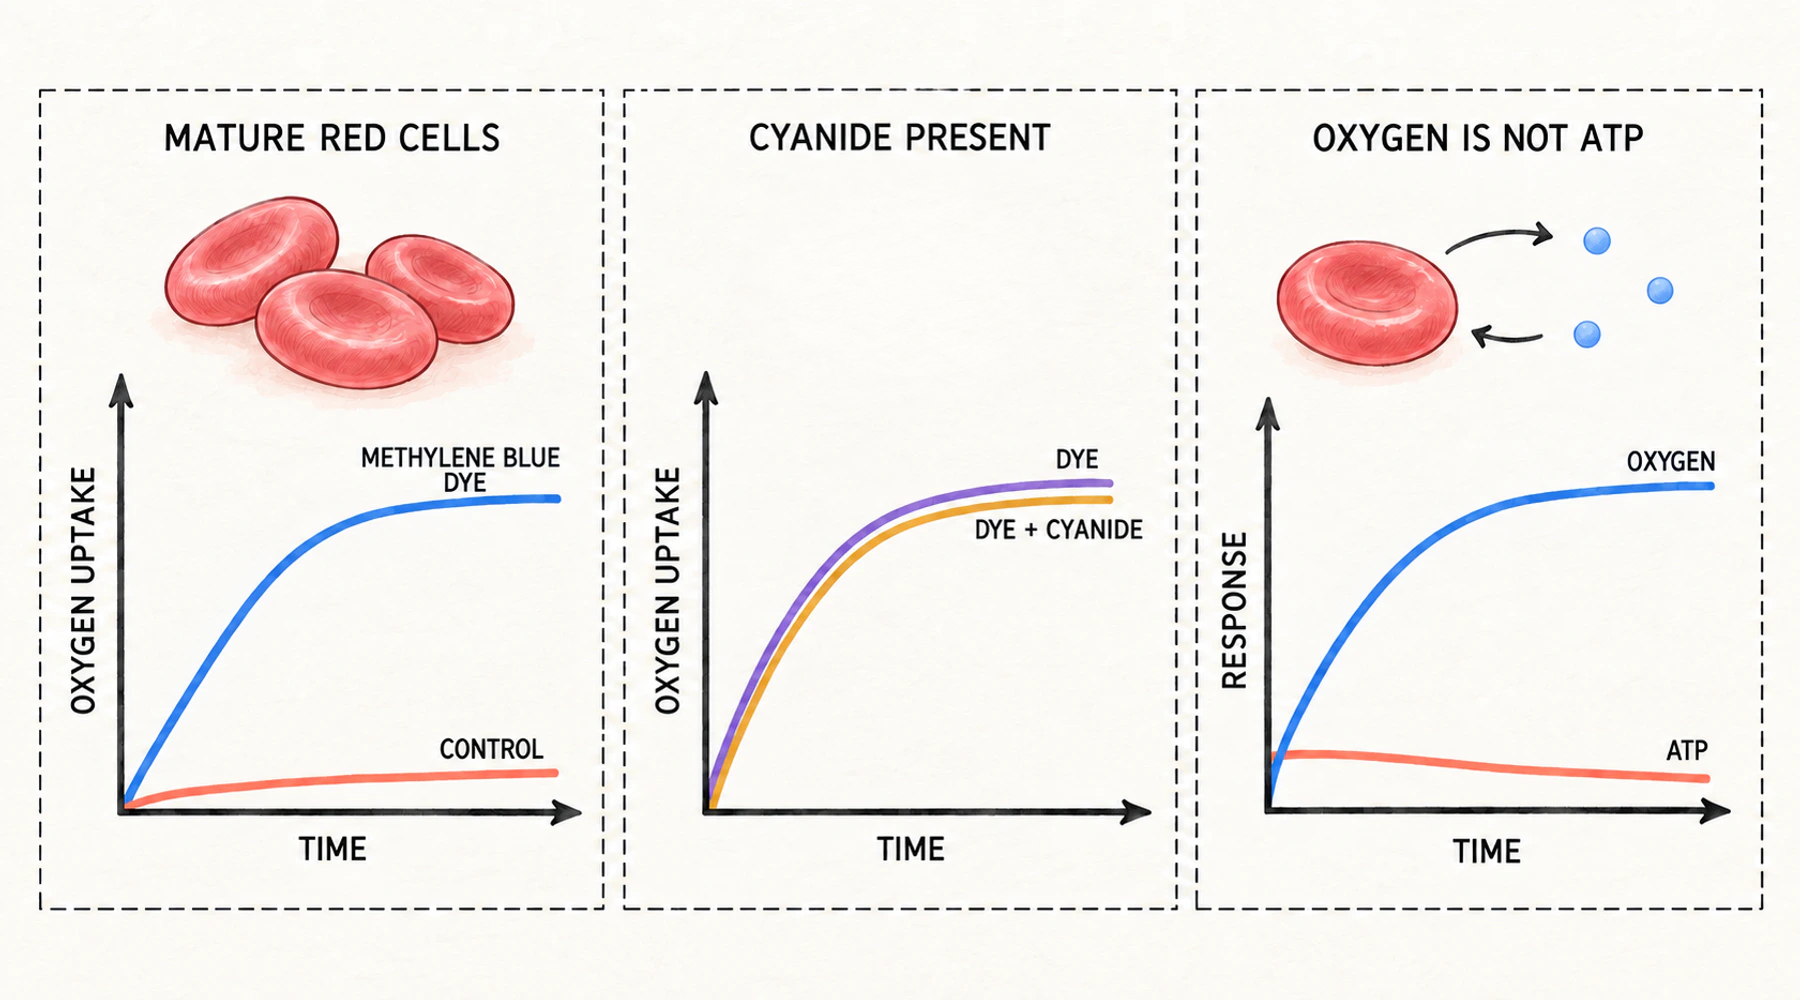
La sangre humana desfibrinada, calentada a 37 °C durante tres horas, consume alrededor del dos por ciento del oxígeno que contiene. Añada una pequeña cantidad de azul de metileno antes de la incubación y la misma sangre consume alrededor del sesenta y cinco por ciento. Nada de las células cambió. Solo cambió la solución.
Ese número proviene de un artículo de 1928 de George Harrop y E. S. Guzman Barron en Johns Hopkins, y es el origen de la afirmación ampliamente repetida de que el azul de metileno mejora la respiración celular. La afirmación no es falsa, y es más limitada de lo que parece.
Qué mide realmente el número de la tabla
El punto final era la absorción de oxígeno, determinada mediante análisis de gases. Harrop y Barron filtraron sangre recién extraída a través de algodón a 10 °C para eliminar los glóbulos blancos, saturaron la muestra con oxígeno, la dividieron, añadieron colorante a una parte y analizaron ambas después de la incubación. Los recuentos de leucocitos rara vez superaban unos mil por milímetro cúbico. El consumo de oxígeno se informó como la proporción del contenido inicial de oxígeno de la muestra que había desaparecido.
También midieron dióxido de carbono, y ahí el método presentó dificultades. La sangre desfibrinada liberó hasta dos milimoles de dióxido de carbono por cada 100 mL durante la primera hora de incubación por razones no relacionadas con la reacción estudiada, por lo que los cocientes respiratorios de sangre completa no eran utilizables. Solo las células lavadas en solución de Locke proporcionaron cifras interpretables, y estas se agruparon entre 0,73 y 0,80 con y sin el colorante.
Ese detalle no es trivial. "Respiración" en estos artículos significa intercambio de gases en un recipiente cerrado. La diferencia entre consumo de oxígeno y producción de energía útil se examina por separado en lo que el consumo de oxígeno indica y no indica sobre el ATP.
El colorante añadía más donde las células respiraban menos
Los eritrocitos maduros de mamíferos tienen un consumo de oxígeno prácticamente no medible. Los eritrocitos nucleados de aves sí lo tienen. Harrop y Barron analizaron ambos, y el contraste es la base de su argumento.
En las muestras de mamíferos, el colorante produjo aumentos de veinte a cincuenta veces. En la sangre de ganso, cuyas células ya respiraban, nunca más que duplicó la tasa. Cuanto mayor era la respiración inicial, menos podía añadir el colorante.
El mismo gradiente aparece dentro de una misma especie. Una muestra humana de un paciente con policitemia vera, que contenía células inmaduras, consumió el 11,3 por ciento de su oxígeno sin colorante presente, frente al 2,8 por ciento de las células lavadas de un donante sano. El colorante solo la llevó al 63,4 por ciento, una aceleración de seis veces donde las células normales se aceleraron casi treinta veces. El colorante empujó a las células maduras hacia el comportamiento de las inmaduras, que es lo que los autores dijeron que estaba haciendo.
El cianuro debería haberlo detenido
Se sabía que el cianuro detenía la oxidación celular. Harrop y Barron lo añadieron de todos modos, junto con el colorante.
Los resultados de la sangre de vacuno son representativos. El contenido de oxígeno cayó de 22,61 a 22,03 volúmenes por ciento durante tres horas sin adiciones. Con azul de metileno cayó a 12,84. Con azul de metileno y cianuro de potasio cinco milimolar, cayó a 12,74. El efecto del colorante permaneció prácticamente intacto.
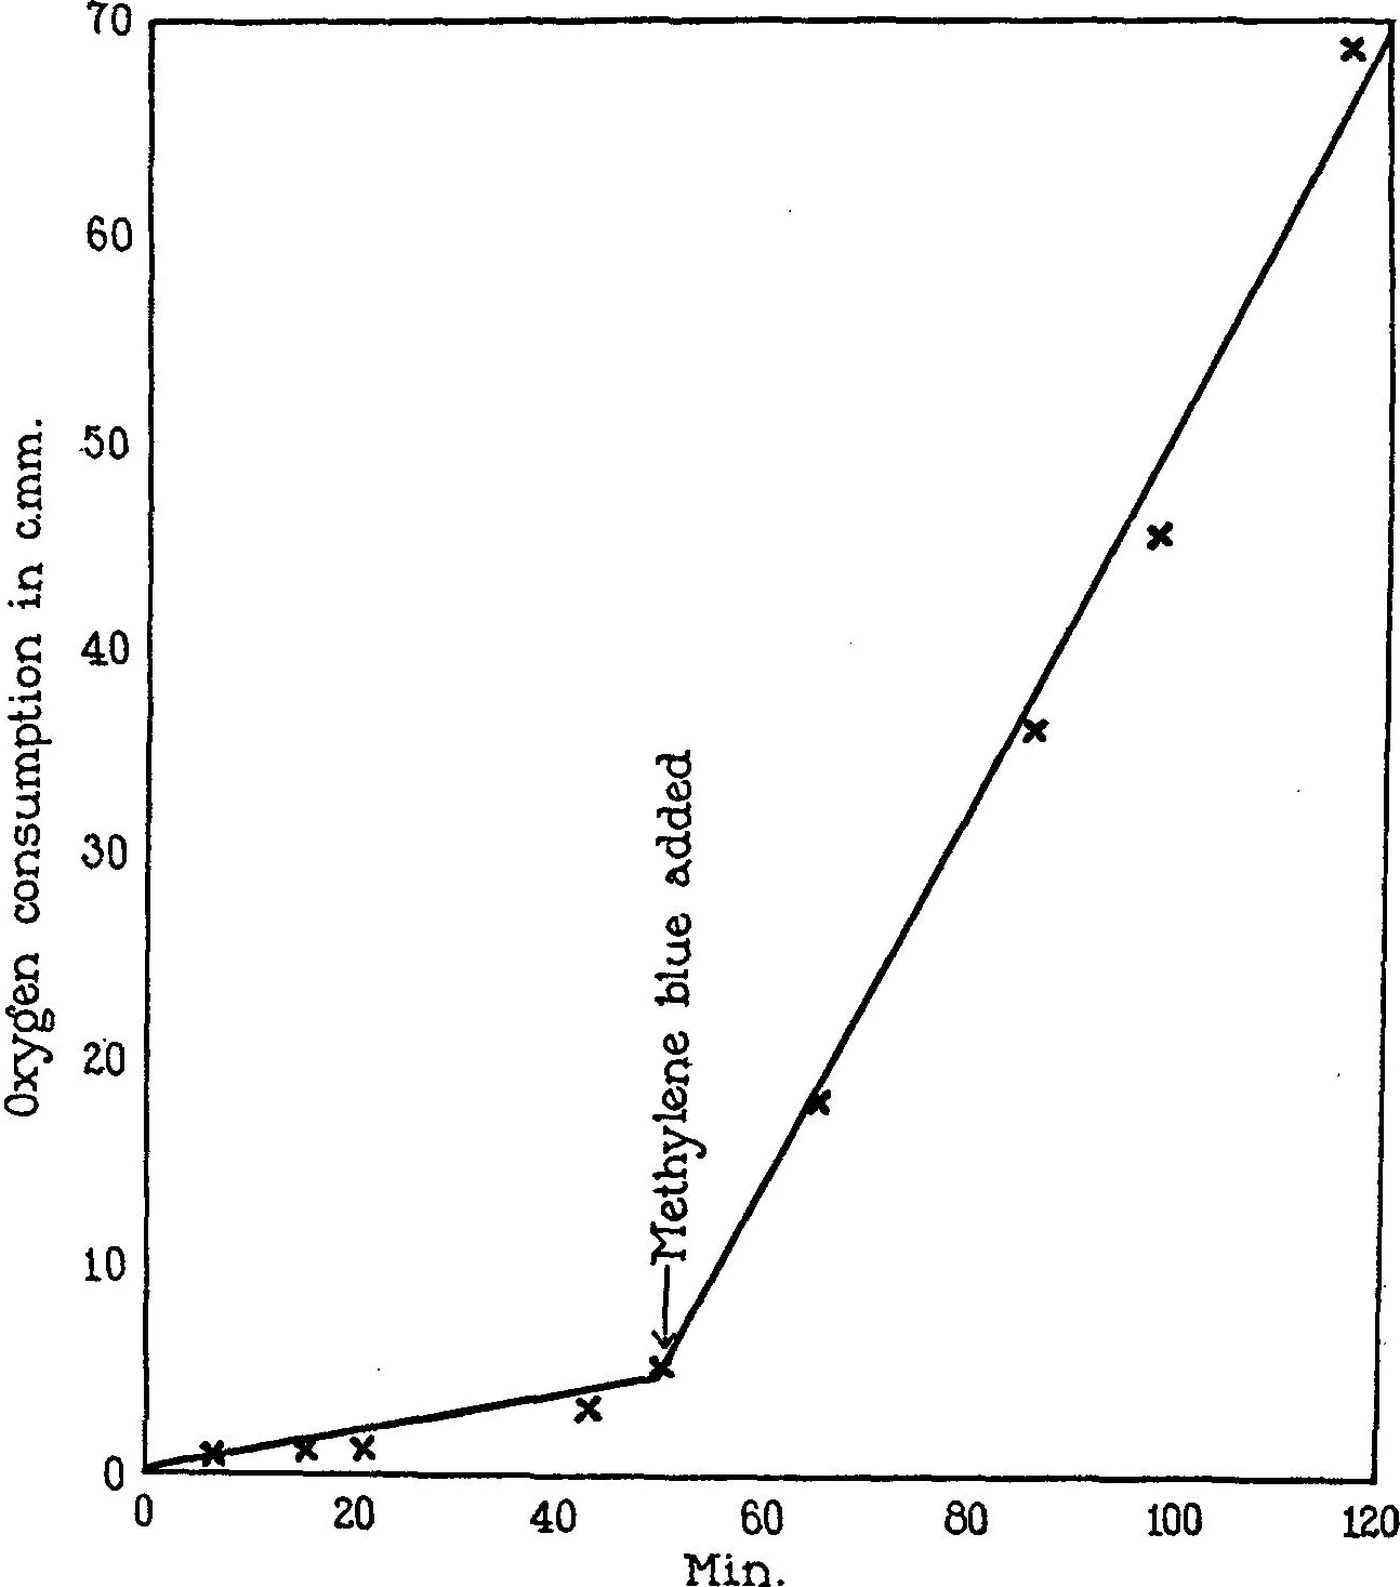
Figura: un registro continuo de microrespiración de eritrocitos humanos. La flecha marca la adición de azul de metileno. Antes de ella, la traza es casi plana; después asciende de forma constante. Reproducido de Harrop y Barron, Journal of Experimental Medicine 48:207–223 (1928), PMID 19869478.
Su conclusión fue que el colorante actuaba como un transportador de oxígeno, "proporcionando una sustancia que había desaparecido de los eritrocitos adultos de mamíferos no nucleados". Dos años después, Michaelis y Salomon en el Rockefeller Institute formularon el desacuerdo de forma permanente. O bien el efecto del colorante era "una propiedad accidental del colorante", o bien el colorante era "un modelo de alguna sustancia desconocida en los organismos". Esa bifurcación no se ha cerrado. Lo que ha cambiado es que ahora las células pueden describirse con mucha más precisión.
Un extracto de hígado hizo lo mismo
Michaelis y Salomon demostraron que los extractos de órganos en agua fría producían la misma estimulación. El hígado de rata fue el más potente, seguido por riñón, bazo y testículo. El cerebro, el músculo y el suero sanguíneo tuvieron poco o ningún efecto.
Después probaron el extracto frente al monóxido de carbono. La respiración inducida por el extracto o por el colorante no cambió en una mezcla de 98 por ciento de monóxido de carbono y 2 por ciento de oxígeno. La misma mezcla gaseosa inhibió la respiración de la levadura y de los eritrocitos nucleados de pollo aproximadamente entre un 60 y un 80 por ciento, en línea con la descripción de Warburg de una enzima respiratoria sensible al monóxido de carbono. Por lo tanto, la sustancia tisular no identificada no era la enzima de Warburg.
Varios candidatos quedaron descartados durante el proceso. El glutatión reducido y la cisteína produjeron únicamente el consumo de oxígeno requerido por su propia oxidación. La coenzima de Harden y Young fue descartada porque el músculo contiene la mayor cantidad y mostró casi el menor efecto. El citocromo de Keilin, nombrado unos años antes, encontró la misma contradicción. Su propia sugerencia, que la sustancia activa provenía del núcleo celular, la consideraron solo una sugerencia.
El efecto tenía condiciones asociadas
Las células tenían que estar intactas. La hemólisis por agua destilada o congelaciones repetidas eliminó la respuesta tanto al colorante como al extracto, y la hemólisis parcial la redujo proporcionalmente.
También se requería azúcar. La glucosa, la fructosa y la sacarosa favorecieron la respiración inducida por el colorante; el manitol no lo hizo. Sin azúcar presente no había respiración en absoluto, y el colorante parecía dañar las células durante el proceso, por lo que añadir glucosa una o dos horas después no la restauró. Los autores sugirieron que el colorante oxidaba un componente estructural que la célula necesitaba.
La iluminación aumentó considerablemente el efecto del colorante, aunque el efecto era claro en la oscuridad. Otros colorantes reducibles se comportaron de forma distinta: el azul de toluileno igualó o superó al azul de metileno, mientras que el índigo disulfonato casi no hizo nada. No surgió una relación clara entre el potencial de oxidación-reducción de un colorante y el tamaño de su efecto, algo que los autores atribuyeron a la permeabilidad de membrana y la toxicidad.
El efecto se relacionaba con la fermentación, no con la respiración
El estudio de Barron de 1930 pasó de suspensiones celulares a cortes de tejido de órganos normales de rata y tumores trasplantados.
En tejidos sin glucólisis aeróbica, el azul de metileno no hizo nada o redujo ligeramente el consumo de oxígeno: riñón aproximadamente un 14 por ciento, páncreas aproximadamente un 14 por ciento, hígado aproximadamente un 5 por ciento. En tejidos que fermentan en presencia de oxígeno, aumentó el consumo: bazo aproximadamente un 8 por ciento, cerebro aproximadamente un 13 por ciento. Los aumentos en tumores iban desde aproximadamente un 27 por ciento en un carcinoma mamario humano hasta más del 80 por ciento en un sarcoma de Rous de pollo, aproximadamente en proporción con la glucólisis aeróbica de cada tejido.
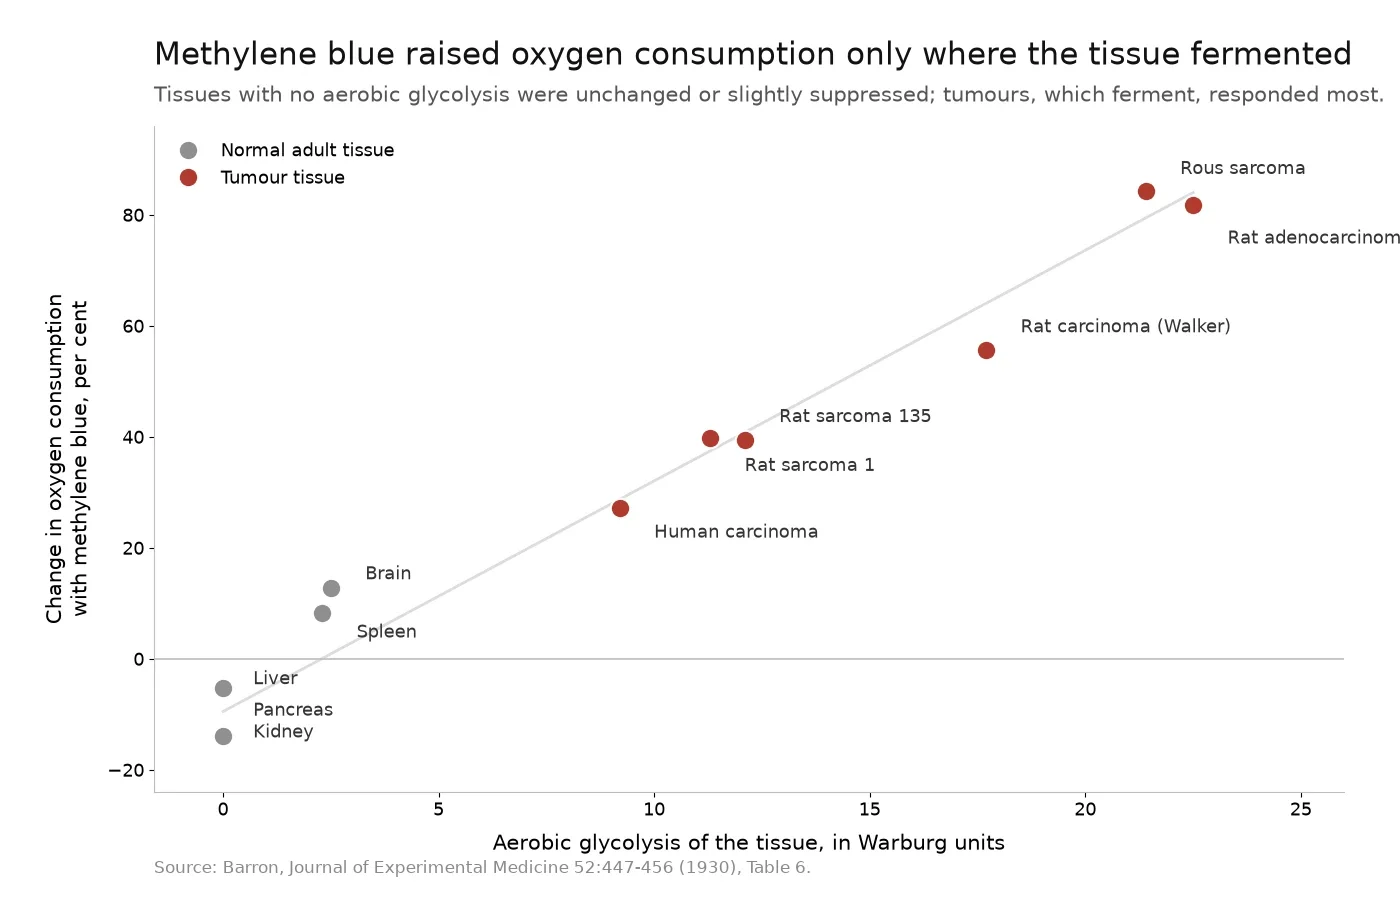
Figura: cada punto representa un tipo de tejido. El eje horizontal es la glucólisis aeróbica; el eje vertical es el cambio en el consumo de oxígeno después del azul de metileno. Datos de Barron, Journal of Experimental Medicine 52:447–456 (1930), Tabla 6, PMID 19869777.
El experimento con cianuro produjo entonces la imagen opuesta. Cuando la respiración en esos tejidos previamente sin respuesta fue bloqueada con cianuro y la fermentación salió a la superficie, el colorante volvió a aumentar el consumo de oxígeno: riñón aproximadamente un 59 por ciento, hígado aproximadamente un 19 por ciento, bazo aproximadamente un 286 por ciento, testículo aproximadamente un 200 por ciento.
Barron propuso que el colorante podía servir como prueba de la capacidad fermentativa de una célula o tejido, y terminó con una especulación: generaciones de cultivo tumoral en medio con colorante podrían algún día hacer que el metabolismo de un tumor fuera permanentemente como el de un tejido normal. Esa era una pregunta de investigación escrita en 1930. No era una afirmación de tratamiento.
Lo que los experimentos no podían haber medido
En 1928 y 1930, "respiración" significaba consumo de oxígeno. El trifosfato de adenosina se informó por primera vez en 1929, y la demostración de que las mitocondrias aisladas esterifican fosfato mientras transfieren electrones llegó en 1949. Ninguno de los primeros artículos sobre azul de metileno podía haber medido producción de energía, y ninguno afirmó hacerlo.
Las células son el segundo problema. Los eritrocitos maduros de mamíferos no contienen mitocondrias. Durante la etapa de reticulocito eliminan mitocondrias y ribosomas mediante autofagia selectiva, por lo que un glóbulo rojo maduro funciona mediante glucólisis y depende de su vía de las pentosas fosfato principalmente para NADPH, no para ATP. En los experimentos de 1928 no había cadena de transporte de electrones que reparar. Lo que consumía el oxígeno estaba haciendo otra cosa.
Qué era esa otra cosa está ahora razonablemente bien descrito. El azul de metileno acepta electrones de equivalentes reductores celulares y se convierte en azul de leucometileno, que se reoxida mediante oxígeno molecular, cerrando el ciclo. En los glóbulos rojos humanos, la flavina reductasa dependiente de NADPH y reductasas de disulfuro relacionadas realizan el paso de reducción. Un estudio de 1976 con glucosa marcada encontró que el colorante estimula la derivación de monofosfato de hexosa, que el efecto a baja concentración dependía de la oxihemoglobina y que una concentración más alta, 0,1 mM, generaba peróxido de hidrógeno. Un colorante reducido que encuentra oxígeno produce peróxido, no enlaces de fosfato.
En las mitocondrias, la situación es más discutida de lo que admiten los resúmenes populares. Una línea de investigación sostiene que el colorante toma electrones de la región del complejo I y los entrega al citocromo c. Otra encontró que en mitocondrias cerebrales de ratón no puede restaurar la respiración después de un bloqueo con antimicina y situó el aceptor de electrones en el sitio de unión de ubiquinol del complejo III. Una tercera encontró que concentraciones bajas aumentaban el consumo de oxígeno en reposo mientras dejaban sin cambios la respiración estimulada por ADP. La afirmación más directa es que el consumo de oxígeno inducido por azul de metileno no depende de la fosforilación oxidativa en absoluto: persistió cuando la cadena respiratoria estaba inhibida y en preparaciones sin ella.
También existen mediciones directas de la diferencia entre ambas cantidades. En mitocondrias aisladas de hígado de rata, aumentar las concentraciones de colorante redujo las proporciones de control respiratorio y provocó hinchamiento, lo que los autores describieron como desacoplamiento de la fosforilación oxidativa. En hígado de rata perfundido, el azul de metileno aumentó el consumo de oxígeno mientras que la proporción ATP-ADP disminuyó.
El registro clínico transmite el mismo mensaje. La metahemoglobinemia se trata con aproximadamente uno a dos miligramos de azul de metileno por kilogramo por vía intravenosa, mediante una vía de reducción dependiente de NADPH, y dosis mayores causan la condición que se está tratando. La misma revisión señala que el efecto antidótico es mayor en eritrocitos intactos y disminuye cuando existe hemólisis, lo que es el hallazgo de hemólisis de 1930 reapareciendo setenta y tres años después en un contexto hospitalario. Un compuesto cuyos efectos útiles y perjudiciales se encuentran en lados opuestos de un umbral de dosis no es un compuesto cuya dosis deba inferirse a partir de una medición de consumo de oxígeno.
Por qué el lote pertenece a la discusión
Harrop y Barron observaron algo que merece una segunda lectura. El azul de metileno produce por sí mismo una banda en el espectroscopio entre las dos bandas características de la metahemoglobina, "lo que puede causar fácilmente confusión durante una inspección superficial". El colorante puede imitar la sustancia que se busca.
El mismo problema tiene una forma química. Un fenotiazínico relacionado presente como componente menor posee su propio comportamiento redox, su propia permeabilidad y su propia toxicidad. Un caso documentado muestra las implicaciones: en un estudio de yodación del azul de metileno, muestras que contenían aproximadamente entre 7 y 8 por ciento de Azure B produjeron principalmente Azure B yodado, por lo que la impureza, en lugar del azul de metileno, dominó la reacción.
Cualquiera que utilice azul de metileno como reactivo, en un laboratorio, en una mesa de tinción o en un acuario, trabaja con un ingrediente no especificado a menos que el lote haya sido caracterizado. Las sustancias relacionadas, la identidad, las impurezas elementales, los disolventes residuales y el residuo tras ignición forman parte del experimento, no son simple documentación alrededor de él. Blupreme obtiene su azul de metileno de un fabricante farmacéutico y publica un certificado completo de análisis, comprobando toda la especificación USP en lugar de solo metales pesados; la guía para leer un certificado de análisis de azul de metileno y qué establece y qué no establece la designación de grado USP explican cómo comprobar el documento frente a la afirmación.
El número era correcto
Los experimentos de 1928 y 1930 fueron cuidadosos, y su observación central ha sobrevivido: un colorante reducible puede hacer que una célula que apenas respira consuma oxígeno a una tasa muchas veces superior a su nivel basal, sin pasar por el paso que bloquea el cianuro.
El error aparece después, cuando "respiración" se interpreta con su significado moderno. Una medición de intercambio gaseoso indica que los electrones llegaron al oxígeno. No indica que alguno de ellos se utilizara para producir ATP, y en una célula sin mitocondrias la distancia entre esas