
Artículo
Azul de metileno como antioxidante y prooxidante: ¿qué cambia el resultado?
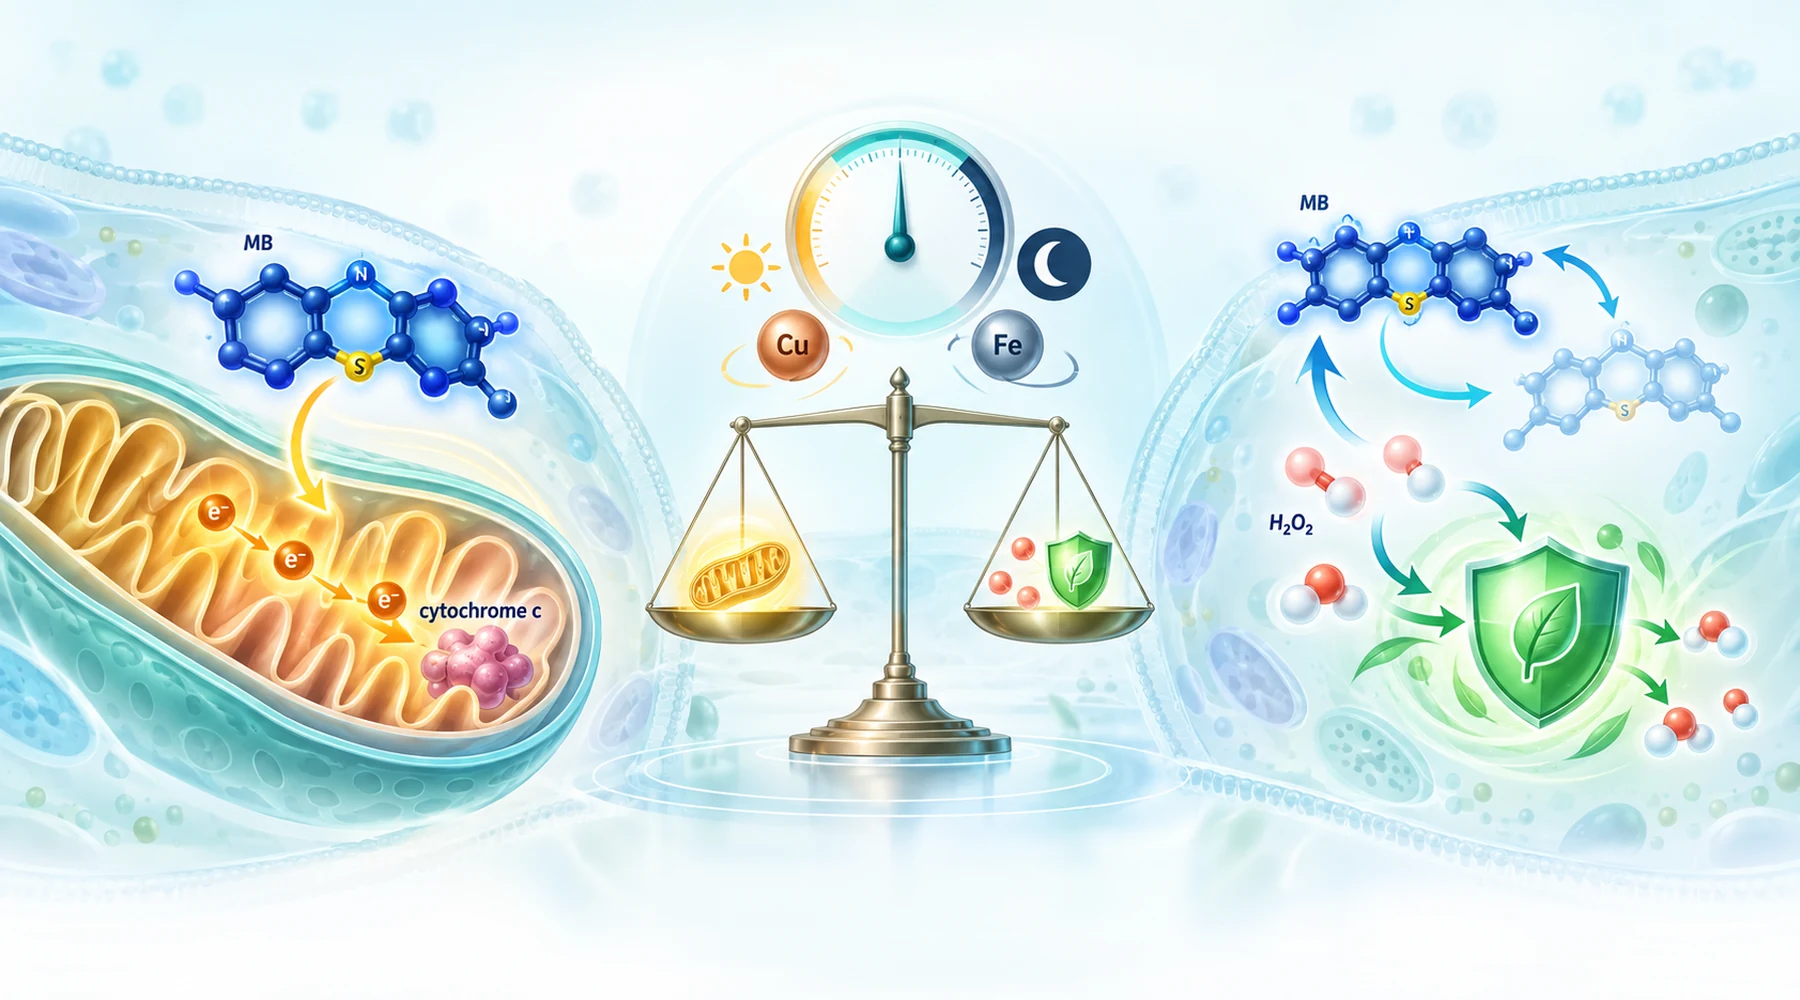
Supongamos que dos laboratorios prueban el mismo colorante azul y reportan resultados opuestos. En el primero, las mitocondrias cerebrales aisladas respiran mejor y producen más ATP. En el segundo, la misma preparación libera mucho más peróxido de hidrógeno. Ambos informes son correctos. Describen el mismo ciclo visto desde dos extremos, y la confusión comienza cuando los lectores tratan un extremo como si fuera toda la historia.
El error es preguntar qué etiqueta encaja con la molécula. El azul de metileno es un intermediario de electrones, como muestra el mapa de sus objetivos en la biología celular en un contexto más amplio. El colorante oxidado acepta electrones y se convierte en leucoMB incoloro. LeucoMB entrega esos electrones y vuelve a convertirse en azul. Lo que observas depende de quién dona los electrones, quién los recibe y si el sistema puede eliminar el peróxido de hidrógeno producido durante el proceso. La pregunta relevante nunca es si el colorante es un antioxidante. Es qué permiten hacer las condiciones a ese intermediario.
El ciclo que produce ambas caras
En la oscuridad, el ciclo central es corto. NADH, NADPH o transportadores de la cadena respiratoria reducen el colorante. El colorante reducido después tiene salidas competitivas. Puede transferir electrones al citocromo c y favorecer el flujo alrededor de un complejo dañado, razón por la cual la respiración y el potencial de membrana se recuperan parcialmente bajo bloqueo del complejo I o III. O puede transferir electrones directamente al oxígeno, lo que regenera la forma azul y produce peróxido de hidrógeno. Debido a que el colorante se regenera, una pequeña cantidad puede repetir este ciclo muchas veces, consumiendo equivalentes reductores de forma continua y produciendo peróxido de manera continua.
Dos ramas adicionales cambian completamente la química. El cobre o hierro libre convierte ese peróxido difusible en oxidantes locales mucho más destructivos mediante reacciones tipo Fenton. La luz roja abre una rama fotoquímica separada en la que el colorante excitado transfiere energía al oxígeno y produce oxígeno singlete, una especie cubierta en detalle en el análisis de fotoc química tipo I y tipo II. El ciclo redox oscuro, el daño amplificado por metales y el daño fotodinámico son tres mecanismos diferentes que comparten una misma molécula inicial.
Matriz de condición a resultado
La tabla siguiente es el recurso que debe conservarse. Cada fila es una variable, la dirección en la que impulsa el resultado y el experimento detrás de ella. Positivo significa una lectura protectora o mejorada. Adverso significa más oxidante, más agotamiento o más daño.
| Condición | Dirección del resultado | Lo que mostró el experimento |
|---|---|---|
| Baja concentración, 0.1 a 1 uM, mitocondrias aisladas | Bioenergética positiva más mayor peróxido | 0.1 uM mejoró el consumo de oxígeno en mitocondrias cardíacas de rata sanas y diabéticas; 100 nM a 1 uM restauró parcialmente ATP, potencial de membrana y captación de calcio en mitocondrias cerebrales bloqueadas, mientras la liberación de peróxido aumentó en todas las condiciones |
| Concentración más alta, superior a 5 uM, células privadas de glucosa | Señal oxidante adversa | Las células endoteliales oxidaron una sonda general de ROS y perdieron glutatión reducido por encima de 5 uM cuando faltaba glucosa; añadir glucosa evitó ambos efectos |
| Sustratos del complejo I (glutamato más malato) | Más peróxido | Tanto los estudios en mitocondrias cerebrales como cardíacas encontraron mayor liberación de peróxido con sustratos ligados a NADH |
| Succinato más rotenona, mitocondrias cardíacas, 0.1 uM | Menos peróxido en ese protocolo | La única lectura claramente antioxidante de peróxido en el conjunto; obsérvese que el protocolo incluía rotenona y un tejido diferente, por lo que el sustrato por sí solo no lo explica |
| Luz roja, 20 uM más 630 nm | Daño adverso al ADN | No hubo lesiones significativas en el ADN mitocondrial en oscuridad a 20 uM; la misma concentración con luz roja dañó todos los fragmentos probados |
| Concentración oscura muy alta, 100 uM | Daño selectivo adverso al ADN | Lesiones selectivas del ADN mitocondrial en secuencias ricas en purinas, un cambio respecto a la señal de peróxido nanomolar |
| Cobre o hierro más NADH, ADN libre de células | Lesiones oxidativas adversas | El cobre dirigió daño hacia una secuencia punto caliente de p53; el hierro EDTA causó daño amplio; catalasa y quelantes de metales bloquearon las respectivas vías; aumentó la guanina oxidada |
| Glucosa presente, células intactas | Amortiguación protectora pese a un ciclo más rápido | La glucosa aumentó la reducción del colorante pero redujo el estrés neto, consistente con el suministro de NADPH de la vía de las pentosas fosfato para el reciclaje antioxidante |
| Células cargadas con ascorbato | Mixto: ascorbato consumido, señal de sonda amortiguada | El colorante oxidó progresivamente el ascorbato intracelular incluso con glucosa presente, mientras suprimía parcialmente la oxidación de la sonda; el grupo de defensa asumió el coste |
| Animales tratados previamente con rotenona, colorante administrado primero | Resultado positivo en tejido | El pretratamiento con colorante redujo las lesiones del ADN mitocondrial inducidas por rotenona en el mesencéfalo de ratón pese a elevar el peróxido en mitocondrias aisladas |
El patrón entre filas es el punto principal. La producción de peróxido y la protección biológica son ejes separados. Un tratamiento puede ser adverso en el primero y positivo en el segundo al mismo tiempo.
Por qué la misma dosis da respuestas diferentes
La concentración determina la capacidad de transporte, no el destino. La liberación de peróxido de mitocondrias cerebrales aumentó de forma detectable desde 50 nM en trabajo sobre mitocondrias cerebrales intactas, mientras que el daño directo al ADN mitocondrial necesitó 100 uM en oscuridad. Existe una diferencia aproximada de dos mil veces entre la primera señal y la genotoxicidad, pero no es un margen de seguridad. Los puntos finales, compartimentos y tiempos de exposición son diferentes, por lo que los números representan fenómenos distintos y no puntos de una sola curva. La discusión sobre respuesta a dosis coloca este tipo de diferencia entre señal baja y daño alto dentro del contexto más amplio de hormesis.
El sustrato decide dónde entran los electrones. Los combustibles ligados a NADH proporcionan al colorante abundantes equivalentes reductores para la derivación útil y la reacción de oxígeno desperdiciada. El resumen frecuentemente citado de que el succinato hace que el colorante sea antioxidante mientras que el glutamato lo hace prooxidante interpreta demasiado los datos, porque la condición de peróxido con succinato del estudio cardíaco también contenía rotenona y utilizó un tejido y una dosis diferentes a los del trabajo cerebral que encontró peróxido elevado bajo todos los estados de sustrato y respiración.
La luz cambia el mecanismo, no solo la magnitud. El contraste más claro del conjunto es 20 uM en oscuridad sin efecto detectable sobre fragmentos de ADN mitocondrial, y 20 uM bajo luz roja dañándolos todos. Comparar un experimento con luz con uno oscuro es comparar fotoquímica con ciclo redox.
Los metales convierten el oxidante. Sin metales, el ciclo oscuro del colorante produce peróxido, una molécula difusible que las células también utilizan como señal. Con cobre o hierro accesibles, el colorante reducido por NADH alimenta la reducción del metal, y el metal reducido activa el peróxido en especies tipo hidroxilo o cobre-peróxido junto al ADN. Así es como el trabajo libre de células con NADH e iones metálicos produjo daño selectivo en puntos calientes y daño amplio del ADN a partir del mismo colorante inicial. El manejo de metales del compartimento, no el colorante por sí solo, decide si esta rama importa.
El estado energético decide si la célula puede asumir el coste. En células endoteliales expuestas a colorante de 2 a 20 uM, la eliminación de glucosa reveló el coste oxidante mientras que el suministro de glucosa lo eliminó, aunque la glucosa también aceleró la reducción del colorante. Un ciclo más rápido con defensas financiadas supera a un ciclo más lento con defensas agotadas. Cualquier afirmación sobre oxidantes que omita el estado de glucosa o NADPH está incompleta.
El tejido determina la infraestructura. Las células endoteliales regeneran NADPH mediante el metabolismo de glucosa y poseen reservas antioxidantes citosólicas. Las mitocondrias aisladas no tienen nada de eso. El ADN purificado ni siquiera tiene reparación. Un resultado en una preparación predice poco sobre las otras, por lo que el futuro análisis sobre respuestas específicas de tejido deberá mantener estos sistemas separados.
La medición directa no es defensa posterior
Muchos textos colapsan dos niveles que los experimentos mantienen separados. Un nivel pregunta cuánto oxidante apareció. El otro pregunta cómo respondió la célula.
Los ensayos de peróxido tipo Amplex están más cerca del primer nivel, e incluso ellos informan un flujo neto, es decir, producción menos destrucción menos exportación. El estudio de mitocondrias cerebrales encontró que ambos lados cambiaban: se formaba más peróxido y disminuía la eliminación de una carga añadida de peróxido. Más abajo se encuentran la oxidación del glutatión, el consumo de ascorbato, la guanina oxidada y las lesiones de ADN que bloquean polimerasas. Cada paso añade biología entre el oxidante y la lectura final.
Las enzimas antioxidantes impulsadas por Nrf2 y la biogénesis mitocondrial pertenecen al segundo nivel. Son programas adaptativos que un pulso leve de peróxido puede activar, y los autores del estudio de protección de mitocondrias cerebrales proponen exactamente ese desencadenante de estrés leve mientras señalan que la cadena causal mediante Nrf2 se basa en trabajos previos y no en una demostración completa propia. La protección que llega horas después mediante nuevas proteínas no significa que la química inicial fuera antioxidante. Significa que un pequeño evento prooxidante adquirió una defensa mayor. Los límites para interpretar estas afirmaciones, incluidos los límites de los ensayos y las diferencias entre preparaciones, son el tema de la guía para leer investigaciones sobre azul de metileno.
Por qué los ensayos no coinciden
Una sonda general como dihidrofluoresceína informa oxidación amplia de la sonda, no una concentración de peróxido. Depende de química con peroxidasas y hemo y puede no detectar un aumento de peróxido que un ensayo Amplex calibrado sí detecta. El estudio de mitocondrias cerebrales observó un aumento marcado de peróxido sin una señal correspondiente de superóxido, una advertencia contra citar cualquier afirmación antioxidante basada en un único colorante. La superposición óptica es una pregunta legítima de control porque el colorante absorbe luz visible cerca de bandas comunes de excitación y emisión, pero el estudio cuidadoso calibró contra peróxido conocido, redujo la exposición de excitación con poco cambio en la señal y confirmó una eliminación más lenta de peróxido con un electrodo separado. La interferencia es un control que debe realizarse, no un rechazo automático.
El resultado del calcio ilustra la misma necesidad de precisión. El colorante agudo no cambió la carga total de calcio antes de la transición de permeabilidad en el estudio cardíaco, pero mejoró la velocidad de captación de calcio en mitocondrias cerebrales bloqueadas en el estudio de mitocondrias cardíacas centrado en diabetes. Diferentes puntos finales, diferentes sistemas, ninguna contradicción.
Lista de comprobación antes de confiar en una conclusión
Trata cada conclusión antioxidante o prooxidante como un informe sobre un sistema y formula cinco preguntas. ¿A qué concentración y en qué compartimento? ¿Con qué donante de electrones y qué aceptor competidor? ¿Con luz u oscuridad, y con qué longitud de onda y dosis? ¿Con qué metales disponibles y qué reservas de combustible y antioxidantes financiadas? ¿Y con qué ensayo, midiendo flujo de oxidantes, daño o respuesta adaptativa? Cambia cualquiera de estas respuestas y la misma molécula puede desplazarse por la matriz de protectora a dañina sin ninguna paradoja.