Article
El blau de metilè com a antioxidant i prooxidant: què en canvia el resultat?
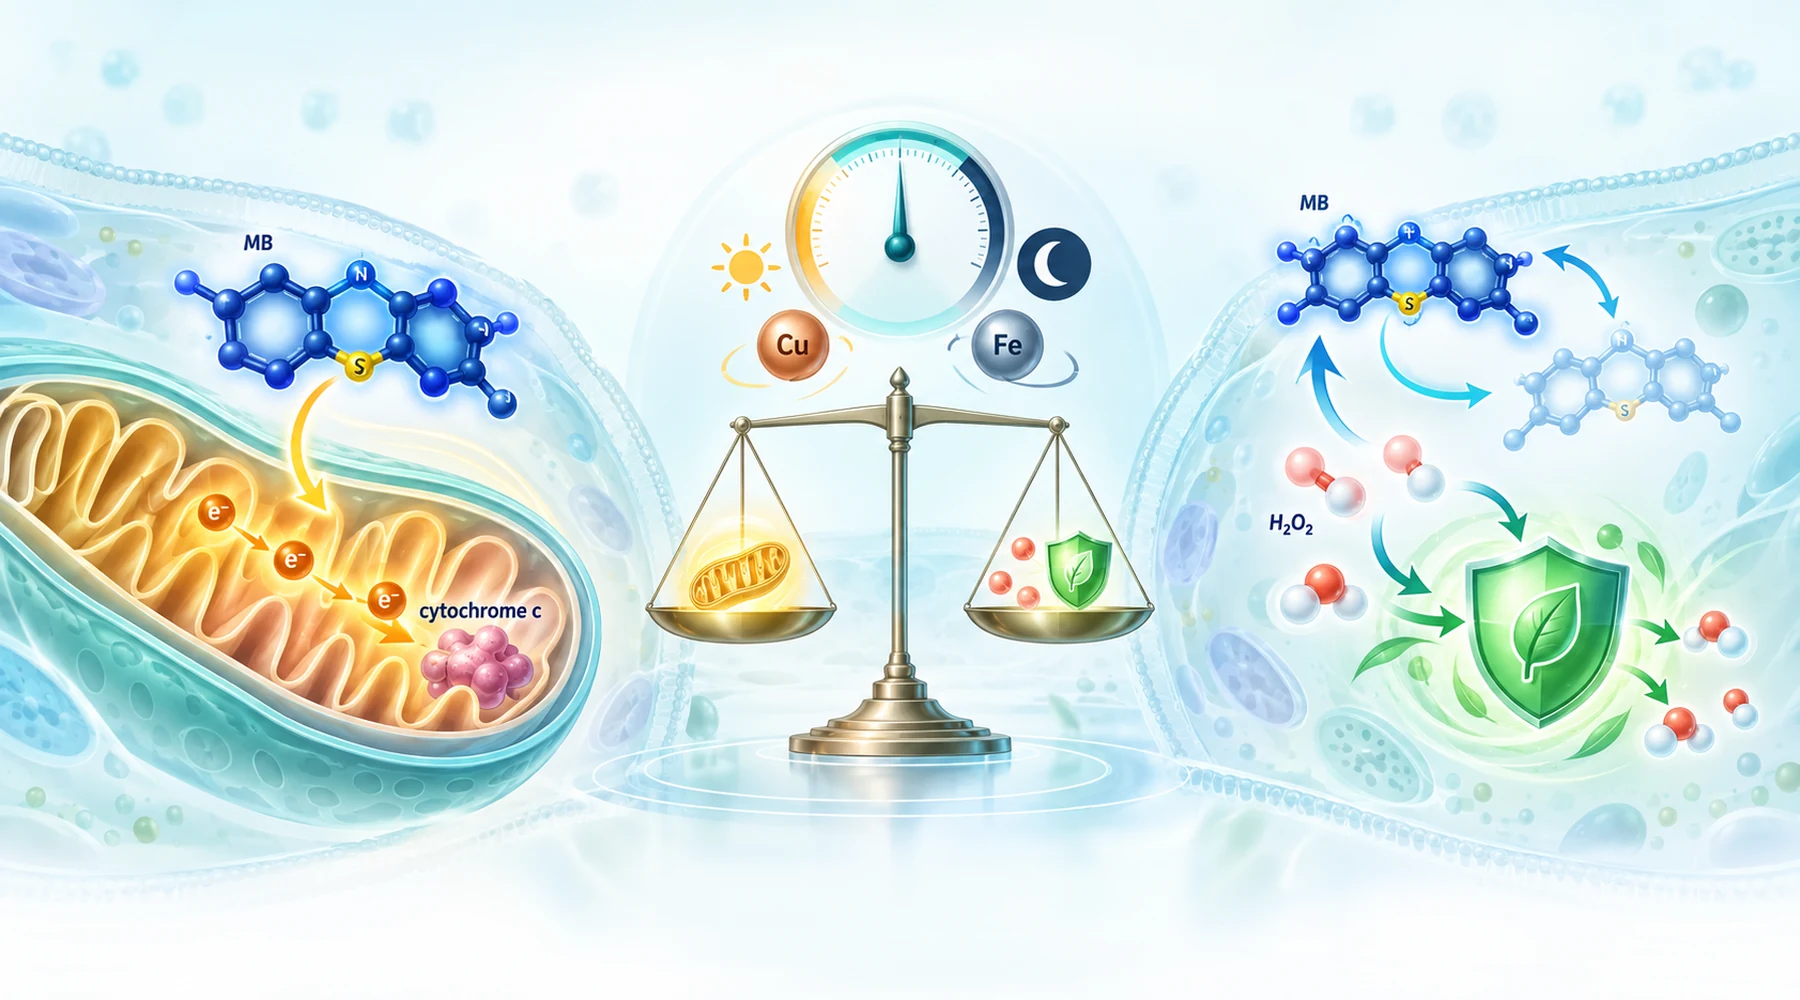
Suposem que dos laboratoris proven el mateix colorant blau i comuniquen resultats oposats. En el primer, els mitocondris cerebrals aïllats respiren millor i produeixen més ATP. En el segon, la mateixa preparació allibera molt més peròxid d'hidrogen. Tots dos informes són correctes. Descriuen el mateix cicle vist des de dos extrems, i la confusió comença quan els lectors prenen un extrem per la història sencera.
L'error és preguntar quina etiqueta correspon a la molècula. El blau de metilè actua com a intermediari en la transferència d'electrons, tal com mostra el mapa de les seves dianes en biologia cel·lular en un context més ampli. El colorant oxidat accepta electrons i es converteix en leucoMB incolor. El leucoMB cedeix aquests electrons i torna a ser blau. El que s'observa depèn de qui dona els electrons, qui els rep i si el sistema pot eliminar el peròxid d'hidrogen que es produeix pel camí. La pregunta que val la pena fer no és mai si el colorant és un antioxidant. És què permeten les condicions que faci aquest intermediari.
El cicle que produeix totes dues cares
A les fosques, el cicle bàsic és curt. El NADH, el NADPH o els transportadors de la cadena respiratòria redueixen el colorant. El colorant reduït té aleshores vies de sortida que competeixen entre si. Pot transferir electrons al citocrom c i afavorir un flux que esquivi un complex danyat, cosa que explica per què la respiració i el potencial de membrana es recuperen parcialment quan es bloqueja el complex I o III. O pot transferir electrons directament a l'oxigen, fet que regenera la forma blava i produeix peròxid d'hidrogen. Com que el colorant es regenera, una petita quantitat pot repetir aquest cicle moltes vegades, consumint de manera sostinguda equivalents reductors i produint peròxid de manera sostinguda.
Dues branques addicionals canvien completament la química. El coure o el ferro lliures converteixen aquest peròxid difusible en oxidants locals molt més destructius mitjançant reaccions de tipus Fenton. La llum vermella obre una branca fotoquímica separada en què el colorant excitat transfereix energia a l'oxigen i produeix oxigen singlet, una espècie que es tracta detalladament a l'explicació de la fotoquímica de tipus I i tipus II. El cicle redox a les fosques, el dany amplificat pels metalls i el dany fotodinàmic són tres mecanismes diferents que comparteixen una mateixa molècula de partida.
Matriu de condicions i resultats
La taula següent és el recurs que convé conservar. Cada fila presenta una variable, la direcció en què empeny el resultat i l'experiment que la sustenta. Positiu vol dir un resultat protector o millorat. Advers vol dir més oxidants, més esgotament o més dany.
| Condició | Direcció del resultat | Què va mostrar l'experiment |
|---|---|---|
| Concentració baixa, de 0.1 a 1 uM, mitocondris aïllats | Bioenergètica positiva amb més peròxid | 0.1 uM va millorar el consum d'oxigen en mitocondris cardíacs de rates sanes i diabètiques; de 100 nM a 1 uM es van restablir parcialment l'ATP, el potencial de membrana i la captació de calci en mitocondris cerebrals bloquejats, mentre que l'alliberament de peròxid va augmentar en totes les condicions |
| Concentració més alta, superior a 5 uM, cèl·lules privades de glucosa | Senyal oxidant advers | Les cèl·lules endotelials van oxidar una sonda general de ROS i van perdre glutatió reduït per sobre de 5 uM quan no hi havia glucosa; afegir glucosa va evitar tots dos efectes |
| Substrats del complex I (glutamat més malat) | Més peròxid | Tant els estudis amb mitocondris cerebrals com els que empraven mitocondris cardíacs van detectar més alliberament de peròxid amb substrats vinculats al NADH |
| Succinat més rotenona, mitocondris cardíacs, 0.1 uM | Menys peròxid en aquell protocol | L'únic resultat de peròxid clarament antioxidant del conjunt; cal tenir en compte que el protocol incloïa rotenona i un teixit diferent, de manera que el substrat per si sol no l'explica |
| Llum vermella, 20 uM més 630 nm | Dany advers a l'ADN | Cap lesió significativa de l'ADN mitocondrial a les fosques amb 20 uM; la mateixa concentració amb llum vermella va danyar tots els fragments analitzats |
| Concentració molt alta a les fosques, 100 uM | Dany advers selectiu a l'ADN | Lesions selectives de l'ADN mitocondrial en seqüències riques en purines, un canvi de nivell respecte del senyal de peròxid a concentracions nanomolars |
| Coure o ferro més NADH, ADN en un sistema acel·lular | Lesions oxidatives adverses | El coure va dirigir el dany a una seqüència de p53 amb alta freqüència de mutació; el ferro-EDTA va causar dany generalitzat; la catalasa i els quelants de metalls van bloquejar les vies respectives; va augmentar la guanina oxidada |
| Glucosa present, cèl·lules intactes | Amortiment protector malgrat un cicle més ràpid | La glucosa va augmentar la reducció del colorant però va disminuir l'estrès net, un resultat coherent amb l'aportació de NADPH de la via de les pentoses fosfat per al reciclatge antioxidant |
| Cèl·lules carregades d'ascorbat | Mixt: consum d'ascorbat, senyal de la sonda esmorteït | El colorant va oxidar progressivament l'ascorbat intracel·lular fins i tot amb glucosa present, mentre que va suprimir parcialment l'oxidació de la sonda; la reserva defensiva en va assumir el cost |
| Animals pretractats amb rotenona, colorant administrat primer | Resultat tissular positiu | El pretractament amb colorant va reduir les lesions de l'ADN mitocondrial induïdes per la rotenona al mesencèfal de ratolins, malgrat augmentar el peròxid en mitocondris aïllats |
La clau és el patró que es dibuixa entre les files. La producció de peròxid i la protecció biològica són eixos separats. Un tractament pot donar un resultat advers en el primer i positiu en el segon alhora.
Per què la mateixa dosi dona respostes diferents
La concentració determina la capacitat de transferència, no el destí. L'alliberament de peròxid dels mitocondris cerebrals va augmentar de manera detectable a partir de 50 nM en un estudi sobre mitocondris cerebrals intactes, mentre que el dany manifest a l'ADN mitocondrial va requerir 100 uM a les fosques. Això representa una diferència d'aproximadament dues mil vegades entre el primer senyal i la genotoxicitat, però no és un marge de seguretat. Els paràmetres avaluats, els compartiments i els temps d'exposició són diferents, de manera que les xifres assenyalen fenòmens diferents i no punts d'una mateixa corba. L'anàlisi de la resposta a la dosi situa aquest tipus de diferència entre un senyal a concentracions baixes i el dany a concentracions altes dins del context més ampli de l'hormesi.
El substrat decideix per on entren els electrons. Els combustibles vinculats al NADH proporcionen al colorant equivalents reductors abundants tant per a la via alternativa útil com per a la reacció improductiva amb l'oxigen. El resum sovint citat segons el qual el succinat fa que el colorant sigui antioxidant mentre que el glutamat el fa prooxidant va més enllà del que permeten les dades, perquè la condició amb succinat emprada per mesurar el peròxid en l'estudi cardíac també contenia rotenona i utilitzava un teixit i una dosi diferents dels de l'estudi cerebral que va detectar més peròxid amb tots els substrats i estats respiratoris.
La llum canvia el mecanisme, no només la magnitud. El contrast més clar del conjunt és el de 20 uM a les fosques, sense cap efecte detectable sobre els fragments d'ADN mitocondrial, i 20 uM amb llum vermella, que els danyava tots. Qui compara un experiment amb llum amb un de fet a les fosques està comparant fotoquímica amb un cicle redox.
Els metalls transformen l'oxidant. Sense metalls, el cicle del colorant a les fosques produeix peròxid, una molècula difusible que les cèl·lules també utilitzen com a senyal. Amb coure o ferro accessibles, el colorant reduït pel NADH alimenta la reducció del metall, i el metall reduït activa el peròxid per formar espècies de tipus hidroxil o de peròxid de coure al costat de l'ADN. Així és com els estudis acel·lulars amb NADH i ions metàl·lics van produir tant dany selectiu en punts amb alta freqüència de mutació com dany generalitzat a l'ADN a partir del mateix colorant. La gestió dels metalls dins del compartiment, i no el colorant per si sol, decideix si aquesta branca és rellevant.
La disponibilitat de combustible decideix si la cèl·lula pot assumir el cost. En cèl·lules endotelials exposades a entre 2 i 20 uM de colorant, la retirada de glucosa va fer visible el cost oxidant, mentre que l'aportació de glucosa el va eliminar, tot i que la glucosa també accelerava la reducció del colorant. Un cicle més ràpid amb defenses proveïdes de recursos supera un cicle més lent amb defenses esgotades. Cal considerar incompleta qualsevol afirmació sobre oxidants que ometi la disponibilitat de glucosa o NADPH.
El teixit determina la maquinària. Les cèl·lules endotelials regeneren NADPH mitjançant el metabolisme de la glucosa i disposen de reserves antioxidants citosòliques. Els mitocondris aïllats no disposen de res d'això. L'ADN purificat ni tan sols disposa de reparació. Un resultat en una preparació permet predir ben poca cosa sobre les altres, i per això l'article previst sobre respostes específiques de cada teixit haurà de mantenir aquests sistemes separats.
La mesura directa no és la defensa posterior
Molts textos fusionen dos nivells que els experiments mantenen separats. Un nivell pregunta quants oxidants han aparegut. L'altre pregunta com ha respost la cèl·lula.
Els assaigs de peròxid de tipus Amplex són els més propers al primer nivell, i fins i tot aquests indiquen el flux net, és a dir, la producció menys la destrucció menys l'exportació. L'estudi de mitocondris cerebrals va trobar canvis en tots dos vessants: es formava més peròxid i s'eliminava més lentament una quantitat de peròxid afegida de cop. Més endavant en la cadena hi ha l'oxidació del glutatió, el consum d'ascorbat, la guanina oxidada i les lesions de l'ADN que bloquegen la polimerasa. Cada pas afegeix processos biològics entre l'oxidant i el resultat mesurat.
Els enzims antioxidants regulats per Nrf2 i la biogènesi mitocondrial se situen en el segon nivell. Són programes adaptatius que un pols lleu de peròxid pot activar, i els autors de l'estudi de protecció dels mitocondris cerebrals proposen precisament aquest desencadenant d'estrès lleu, tot assenyalant que la cadena causal a través de Nrf2 es basa en estudis previs i no en una demostració completa pròpia. Una protecció que arriba hores més tard gràcies a noves proteïnes no vol dir que la química inicial fos antioxidant. Vol dir que un petit esdeveniment prooxidant ha procurat una defensa més gran. Les precaucions per interpretar aquestes afirmacions, incloses les limitacions dels assaigs i les diferències entre preparacions, són el tema de la guia per llegir la recerca sobre el blau de metilè.
Per què els assaigs discrepen entre si
Una sonda general com la dihidrofluoresceïna indica l'oxidació global de la sonda, no una concentració de peròxid. Depèn de la química de les peroxidases i del grup hemo, i pot no detectar un augment de peròxid que un assaig Amplex calibrat sí que detecta. L'estudi de mitocondris cerebrals va observar un augment pronunciat del peròxid sense un senyal de superòxid corresponent, cosa que adverteix contra citar qualsevol afirmació antioxidant basada en un únic colorant. El solapament òptic és una qüestió legítima que cal controlar, ja que el colorant absorbeix llum visible prop de les bandes habituals d'excitació i emissió, però l'estudi rigorós va calibrar les mesures amb quantitats conegudes de peròxid, va reduir l'exposició a l'excitació amb poc canvi en el senyal i va confirmar una eliminació més lenta del peròxid amb un elèctrode independent. La interferència és una possibilitat que cal comprovar amb un control, no un motiu de descart automàtic.
El resultat del calci il·lustra la mateixa necessitat de precisió. L'exposició aguda al colorant no va canviar la càrrega total de calci abans de la transició de permeabilitat en l'estudi cardíac, però sí que va millorar la velocitat de captació de calci en mitocondris cerebrals bloquejats en l'estudi de mitocondris cardíacs centrat en la diabetis. Paràmetres diferents, sistemes diferents, cap contradicció.
Una llista de comprovació abans de confiar en un veredicte
Considereu cada veredicte antioxidant o prooxidant com un informe sobre un sistema, i feu-vos cinc preguntes. A quina concentració i en quin compartiment? Amb quin donador d'electrons i quin acceptor que hi competeixi? Amb llum o a les fosques, i amb quina longitud d'ona i dosi? Amb quins metalls disponibles i amb quins recursos per al combustible i les reserves antioxidants? I amb quin assaig, que mesuri el flux d'oxidants, el dany o la resposta adaptativa? Canvieu qualsevol d'aquestes respostes i la mateixa molècula pot passar dins de la matriu de protectora a perjudicial sense cap paradoxa.