
مقال
كيف يدخل الميثيلين الأزرق إلى الخلايا: الاختزال، إعادة الأكسدة، وتقسيم الغشاء
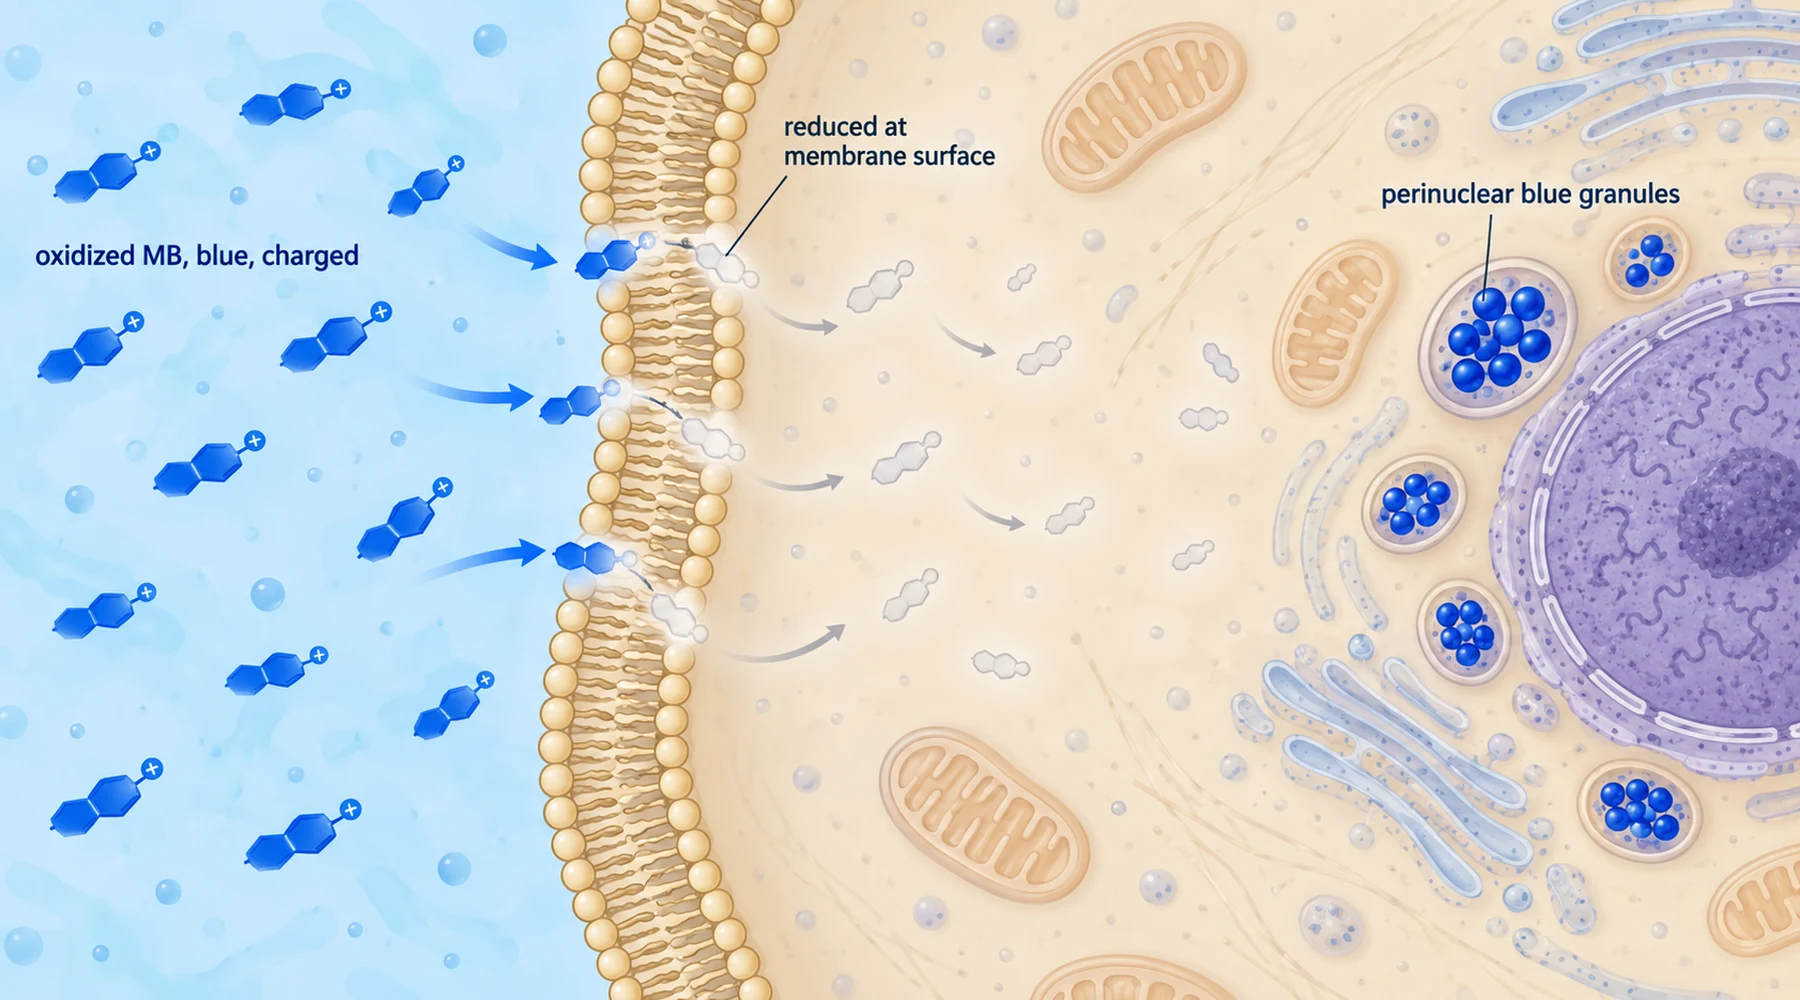
عند مشاهدة طبق من الخلايا البطانية وهي تمتص الميثيلين الأزرق، يكون التفسير الظاهر أيضًا هو التفسير الخاطئ. يفقد الوسط لونه الأزرق، وتكتسب الخلايا حبيبات زرقاء، لذا يبدو أن الصبغة قد عبرت الغشاء في صورة الجزيء الأزرق. لكن التجارب تقول خلاف ذلك. فالشكل الأزرق يعبر بصعوبة بالغة. أما الذي يعبر فهو الشكل عديم اللون، واللون الأزرق الذي تراه داخل الخلية يتكون داخلها بعد الوصول.
هذا الانعكاس مهم لأنه يحدد ما يمكن للتلوين أن يخبرنا به وما لا يمكنه ذلك. فالحبيبات الزرقاء تشير إلى صبغة مؤكسدة أعيدت أكسدتها واحتُجزت في العُضيّات. لكنها لا تشير إلى إجمالي الصبغة في الخلية، ولا تقيس المخزون المختزل، ولا تقيس التأثير البيولوجي. لفهم السبب، اتبع الخطوات الثلاث: الاختزال عند السطح، انتشار الشكل المختزل، ثم إعادة الأكسدة والاحتجاز داخل الخلية.
يتصرف الشكلان كأنهما جزيئان مختلفان
الميثيلين الأزرق المؤكسد هو نظام حلقي مسطح موجب الشحنة. يذوب في الماء، ويمتص الضوء بقوة حول 600 إلى 700 نانومتر، ويبدو أزرق. الشحنة هي النقطة الأساسية هنا. فالجزيء المشحون المحب للماء لا ينزلق عبر الغشاء الدهني بسهولة، لذلك فإن العبارة الدقيقة المستخدمة في الأدبيات هي "منخفض النفاذية نسبيًا عبر الغشاء" وليس "غير نافذ".
الميثيلين الأزرق المختزل، المعروف باسم لوكوميثيلين أزرق، عديم اللون، غير مشحون، وقابل للذوبان في الدهون. عند إزالة الشحنة يتوقف الغشاء عن كونه حاجزًا. ينتشر الجزيء المختزل عبر الغشاء بسهولة، وبمجرد دخوله إلى حجرة أكثر أكسدة يمكنه فقد الإلكترونات مرة أخرى والعودة إلى الشكل الأزرق المشحون المحتجز. لذلك فإن كيمياء الأكسدة والاختزال للصبغة هي أيضًا آلية نقلها. تغيير عدد الإلكترونات يغير النفاذية.
تأتي إلكترونات الخطوة الأولى من الخلية نفسها. تقوم خلايا الثدييات بنقل الإلكترونات عبر الغشاء البلازمي، حيث تنقل مكافئات الاختزال من المتبرعين داخل الخلية إلى المستقبلات عند السطح. هذا النشاط عبر غشاء البلازما هو وظيفة خلوية طبيعية، موجودة في معظم أنواع الخلايا، ويتميز مختزل السطح البطاني الذي يتعامل مع أصباغ الثيازِين بصفة مهمة مثل غيره: فهو يستمر في العمل بوجود السيانيد والأزيد بجرعات توقف الخطوات اللاحقة. هذا الفصل هو محور القصة بأكملها.
بدأ التقسيم أولًا، وكاد أن يفسر الامتصاص
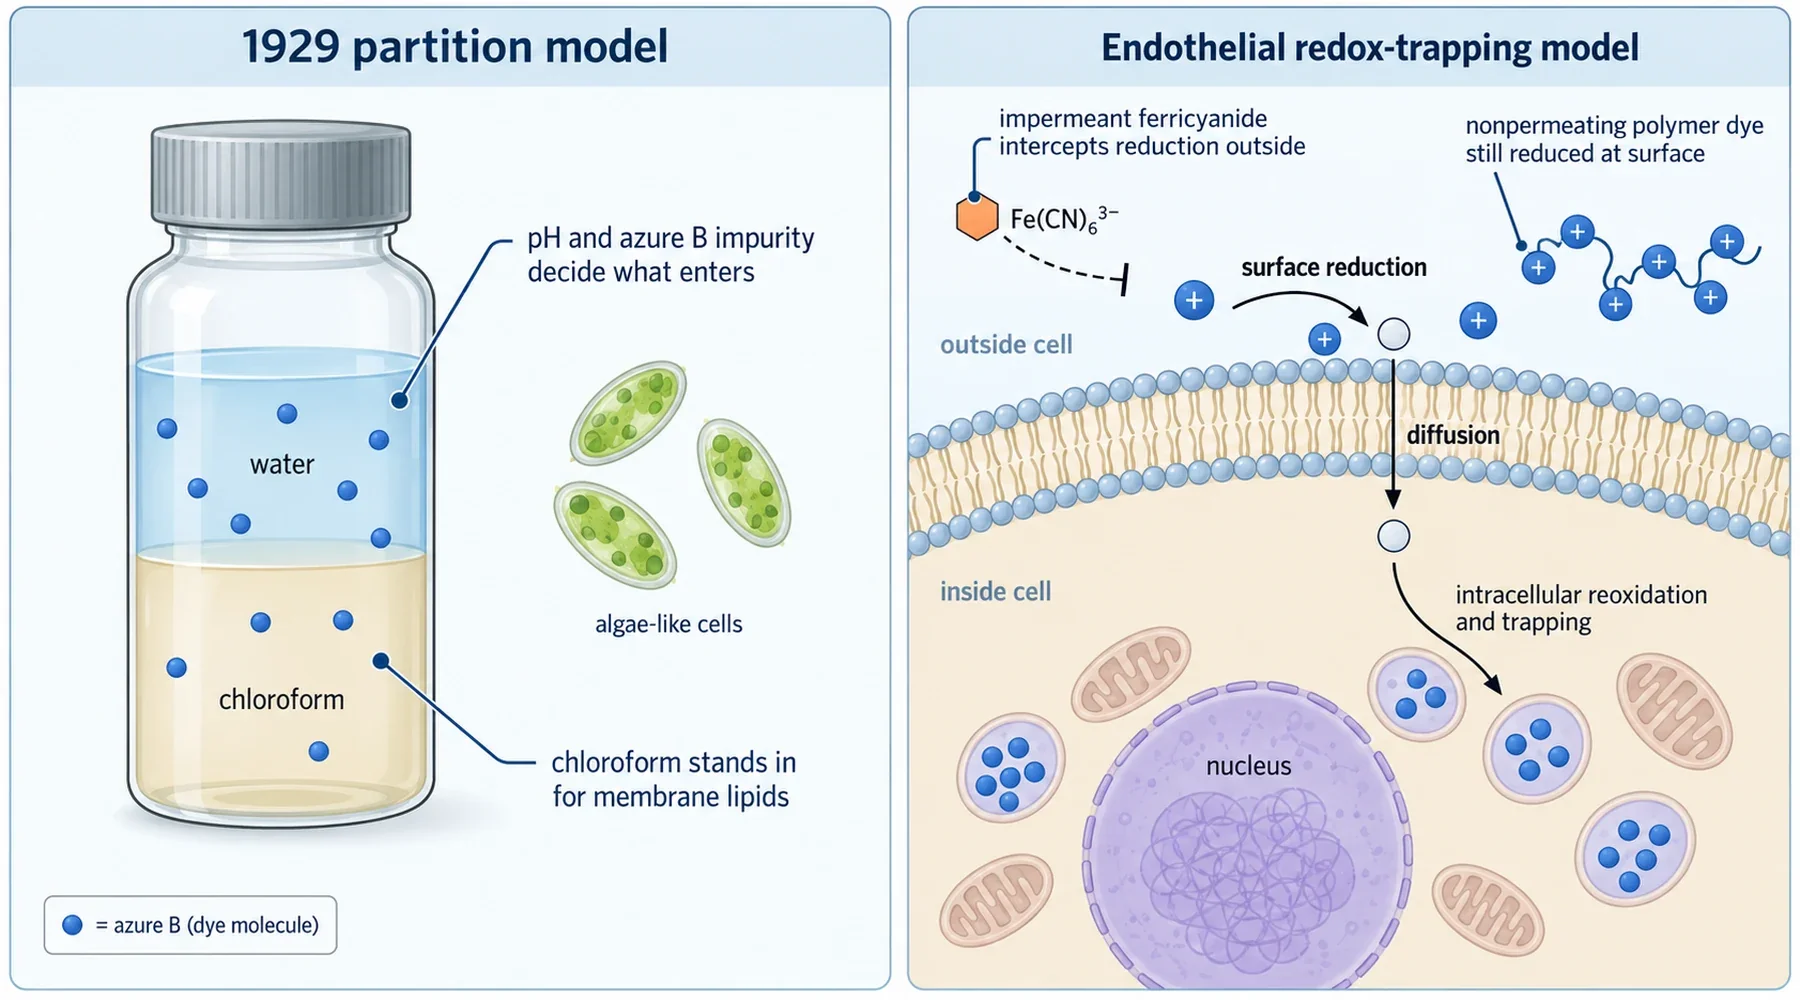
في عام 1929، طرحت ماريان إروين في معهد روكفلر سؤالًا أبسط. ربما يكون دخول الصبغة مجرد تقسيم بين الماء والطبقات الدهنية في الخلية، ويمكن لطبقة الكلوروفورم أن تمثل تلك الطبقات الدهنية في المختبر. قامت دراسات الاختراق الطيفي الضوئي (https://pubmed.ncbi.nlm.nih.gov/19872469/) برجّ محاليل الصبغة المائية مع الكلوروفورم وقارنت ما انتقل إلى الطور العضوي بما دخل خلايا الطحالب الحية.
ما زالت نتيجتان من ذلك العمل تستحقان الانتباه. أولًا، احتوت محاليل الميثيلين الأزرق التجارية على ثلاثي ميثيل ثيونين، المعروف الآن باسم azure B، وكانت الشائبة تخترق أسرع من الميثيلين الأزرق نفسه، خصوصًا عند الرقم الهيدروجيني القلوي حيث يسود شكل القاعدة الحرة القابلة للذوبان في الدهون. كان بعض الدخول الظاهري للميثيلين الأزرق في الحقيقة دخولًا انتقائيًا لـ azure B. ثانيًا، حدد الرقم الهيدروجيني النتيجة عبر تحديد حالة التأين، كما أن الخلايا المتضررة سمحت بدخول صبغة أكثر بكثير من الخلايا السليمة. تحكمت معاملات التقسيم وحالة الشحنة فيما امتصه كل من النظام الاصطناعي والخلية الحية، ودعم التشابه بين الاثنين فكرة وجود طبقات غير مائية في حدود الخلية.
كان النموذج متقدمًا في فهمه للدهون والتأين، لكنه لم يستطع التمييز بين صبغة تنقسم كما هي وبين صبغة تتحول كيميائيًا عند السطح، وتعبر في صورة مختلفة، ثم تتحول مرة أخرى داخل الخلية. احتاج هذا التمييز إلى تجربة مختلفة، وجاء بعد سبعين عامًا في بطانة الرئة.
الاختزال خارج الخلية، والاحتجاز داخلها
عمل ميركر وزملاؤه على خلايا بطانية مستزرعة من الشريان الرئوي البقري، واقترحوا تسلسلًا من ثلاث خطوات: تُختزل الصبغة المؤكسدة على سطح الخلية إلى شكلها عديم اللون المحب للدهون، وينتشر الشكل المختزل إلى الداخل، ثم تعيد الأكسدة داخل الخلية تكوين الشكل المؤكسد غير النافذ عبر الغشاء، والذي يتراكم. ثم اختبرت دراسة امتصاص الثيازِين البطانية هذا التسلسل بمحاولة تعطيله في مواضع محددة.
كانت الأداة الأولى هي الفيريسيانيد، وهو مستقبل إلكترونات لا يستطيع دخول الخلية. عندما تختزل الإنزيمات السطحية الصبغة الزرقاء إلى شكلها عديم اللون خارج الخلية، يستطيع الفيريسيانيد سرقة تلك الإلكترونات وإعادة تكوين الصبغة الزرقاء في الوسط قبل أن تعبر. طالما كان الفيريسيانيد موجودًا بزيادة (10 ميكرومولار من الصبغة مقابل 50 إلى 500 ميكرومولار من الفيريسيانيد)، توقف امتصاص الصبغة تقريبًا، ولم يعد الامتصاص إلى معدله الطبيعي إلا بعد استهلاك الفيريسيانيد. أظهرت الحركية القصة نفسها بطريقة ثانية. اختفى الفيريسيانيد بمعدل ثابت تقريبًا، بما يتوافق مع تدفق اختزال سطحي ثابت يغذي وسيطًا قابلًا لإعادة التدوير، بينما اختفت الصبغة خارج الخلية بشكل أُسّي مع استنزاف مخزونها. يعني التدفق الثابت مع المخزون المستنزف أن إشارة الفيريسيانيد تعكس اختزالًا مستمرًا، وليس جزيئات صبغة تغادر المحلول.
أزالت الأداة الثانية خطوة العبور بالكامل. ربطت المجموعة صبغة toluidine blue O، وهي قريبة من الثيازِين، بسلسلة كبيرة من بولي أكريلاميد لا يمكنها دخول الخلية في أي من حالتي الأكسدة. استمرت الخلايا في اختزال الصبغة المرتبطة. لذلك لا يحتاج الاختزال إلى وصول داخل الخلية. فالآلية موجودة عند السطح أو مرتبطة به كهربائيًا.
ثم جاء الفصل الذي يعطي البحث عنوانه. أدى السيانيد والأزيد بتركيز 2 مليمولار إلى تثبيط قوي لتراكم الصبغة، وتحت المجهر اختفت تقريبًا التضمينات الزرقاء الداكنة والبنفسجية التي تحيط عادة بالنواة. ومع ذلك، لم يبطئ أي من المثبطين الاختزال خارج الخلية: استمر تدوير الفيريسيانيد دون انخفاض، كما استمر اختزال الصبغة البوليمرية غير النافذة. كان موضع التوقف في الخطوة اللاحقة. فقد أوقف السيانيد والأزيد إعادة الأكسدة والاحتجاز داخل الخلية، وليس الاختزال السطحي. دعمت اختبارات الحيوية هذا التفسير، إذ احتفظت الخلايا بإنزيمها السيتوزولي الدال، لاكتات ديهيدروجيناز، خلال هذه المعالجات، لذلك لم يكن فقدان الامتصاص مجرد تسمم أو تمزق للغشاء.
يبقى تحذير واحد من البحث ذا صلة. كانت التضمينات الزرقاء موجودة حول النواة وليس داخلها، بما يتوافق مع الأكسدة داخل عُضيّات خلوية فرعية، لكن الدراسة لم تحدد أي عُضيّات. وقد وُصفت أنماط مشابهة في أنواع أخرى من الخلايا بأنها ليسوزومية بناءً على أدلة محدودة. اعتبر الاحتجاز مثبتًا، أما الموقع الدقيق فاعتبره مؤقتًا. يمكن للقراء الذين يتابعون مسار الإلكترونات التالي الانتقال إلى النقل الإلكتروني الميتوكوندري والتعامل مع الأكسدة والاختزال وإلى الصورة الأوسع لـ الامتصاص والتوزيع حسب المسار.
التلوين ليس هو التعرض
تُظهر دراسة ثالثة ما يحدث عندما يلتقي منطق الامتصاص هذا مع قراءة بيولوجية. وجد سكوت وزملاؤه أن ميثيل بيتا سيكلودكسترين، وهو حلقة سكرية على شكل طوق، يرتبط مباشرة بالميثيلين الأزرق، مع ثابت ارتباط يقارب 310 لكل مولاري لمعقد الاحتواء مقابل نحو 5846 لكل مولاري لتثنّي الصبغة. في الخلايا الليفية L929 أدى هذا الارتباط إلى منع كل من تلوين الخلايا وتحفيز امتصاص الغلوكوز: فقد منع الحضان المسبق مع السيكلودكسترين التلوين الأزرق، كما أدى إضافته بعد ذلك إلى تسريع زوال اللون. ومع خروج الإشارة الزرقاء الضوئية من الخلايا، تلاشى نقل الغلوكوز المنشط بالتوازي الوثيق.
فسر المؤلفون هذا الارتباط بأنه يدعم تفاعلًا مباشرًا بين الصبغة وبروتين في مسار تنشيط ناقل الغلوكوز بدلًا من آلية طويلة الأمد للإجهاد التأكسدي. هذا الاستنتاج معقول لكنه محدود. فالتجربة لا تحدد البروتين، ولا تُظهر ارتباطًا بالناقل نفسه، كما أن الترابط بين زوال اللون وفقدان التأثير لا يستبعد كل مسار بوساطة الأكسدة والاختزال.
الدرس الدائم يتعلق بالقياس. فالتلوين الضوئي يعكس الصبغة المرتبطة بالخلية والمرئية والمؤكسدة. لكنه يتجاهل بالكامل المخزون المختزل عديم اللون، لذلك قد تحتوي خلية باهتة على مكافئات صبغة، كما أن الخلية شديدة التلوين تعكس صبغة مؤكسدة محتجزة وليس إجمالي التعرض النسيجي أو حجم التأثير. وينطبق التحذير نفسه على نطاق أوسع: مقارنة التلوين بين أنواع الخلايا، أو اعتبار مقطع نسيجي داكن دليلًا على تعرض أعلى، يكرر الخطأ الأصلي في الطبق. فالامتصاص عبارة عن دورة من الاختزال والانتشار وإعادة الأكسدة، وأي لقطة واحدة للشكل الأزرق ترى جزءًا واحدًا فقط منها. تنتج الآثار العملية على التلوين المخبري والتعامل معه وعلى تفسير ادعاءات الجرعة والتعرض مباشرة من ذلك.