
文章
亚甲蓝如何进入细胞:还原、再氧化和膜分配
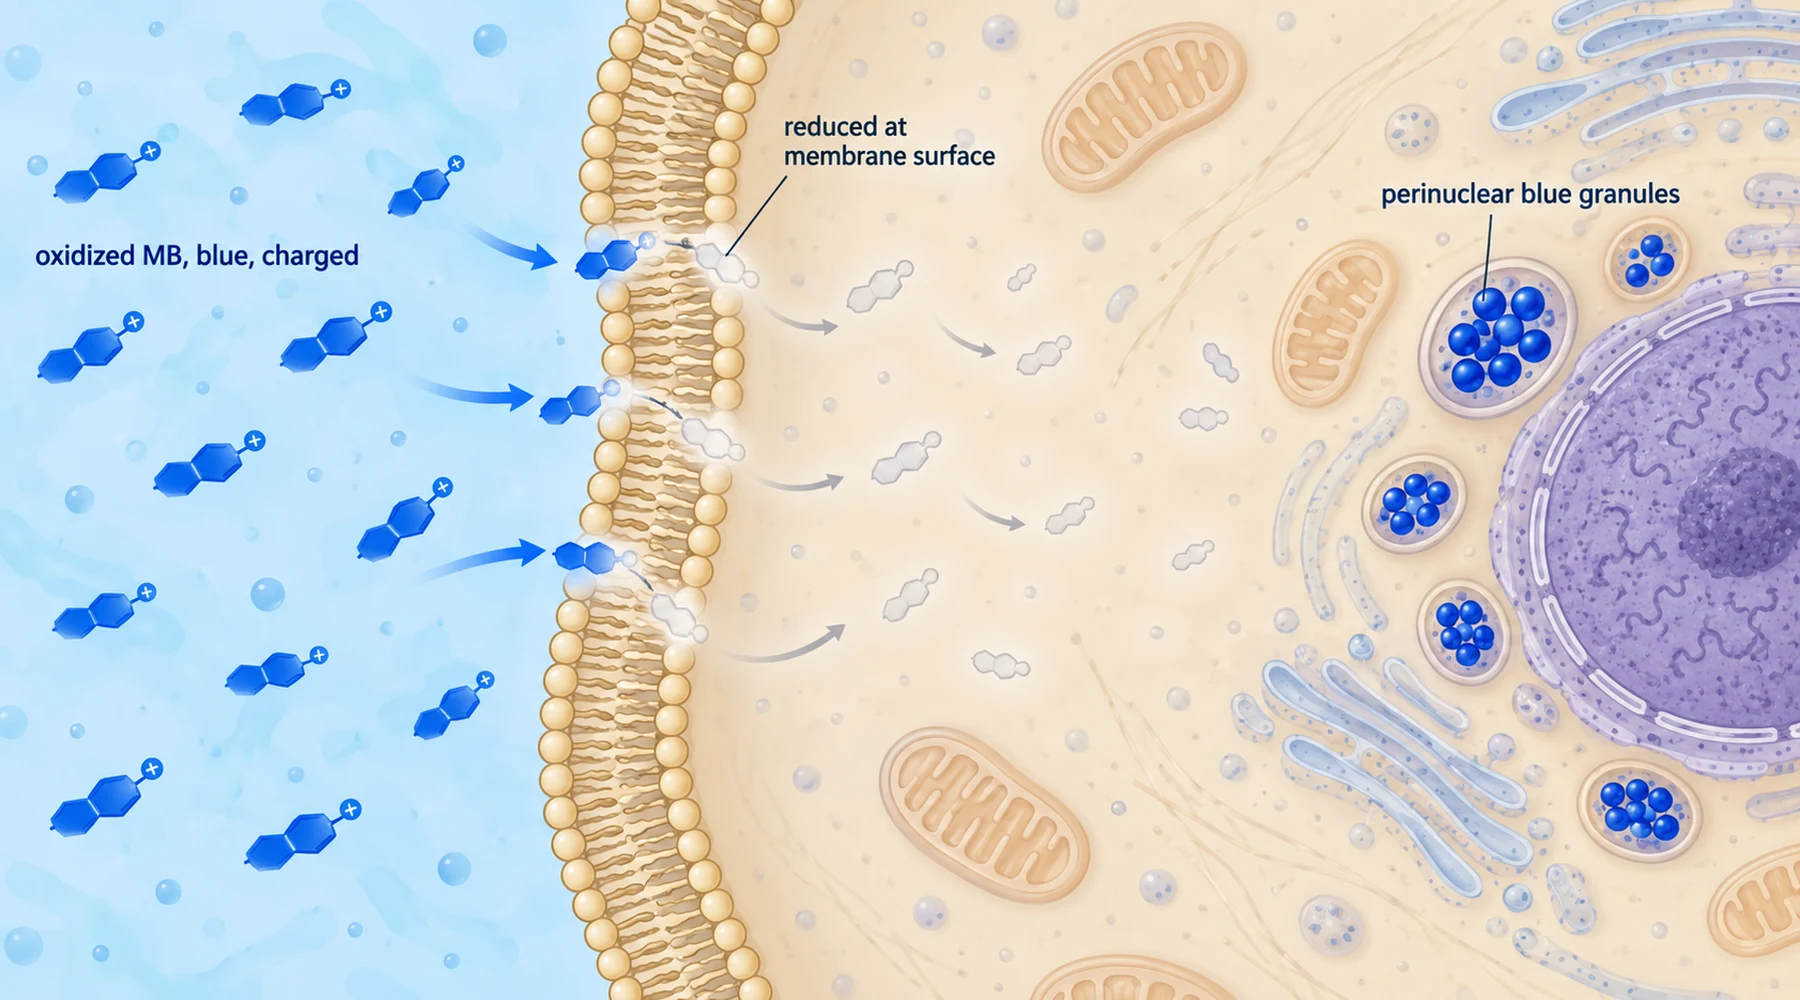
观察一皿内皮细胞摄取亚甲蓝时,最直观的解读也是错误的解读。培养液失去蓝色,细胞获得蓝色颗粒,因此染料似乎是以蓝色分子形式穿过膜。实验结果并非如此。蓝色形式几乎无法穿过。真正穿过的是无色形式,而你在细胞内看到的蓝色是在进入之后于细胞内部形成的。
这种逆转很重要,因为它决定了染色能够告诉我们什么以及不能告诉我们什么。蓝色颗粒代表已经再氧化并被困在细胞器中的氧化态染料。它们不代表细胞内染料总量,不代表还原态储备,也不能衡量生物效应。要理解原因,需要跟随三个步骤:表面还原、还原形式扩散、内部再氧化与捕获。
两种形式表现得像不同分子
氧化态亚甲蓝是一种平面带正电的环状体系。它可溶于水,在约600至700纳米处强烈吸收光线,并呈现蓝色。关键在于电荷。带电且亲水的分子不会轻易穿过脂质膜,因此文献中更严谨的说法是相对膜不透过,而不是完全不透过。
还原态亚甲蓝称为隐亚甲蓝(leucomethylene blue),无色、不带电,并且具有脂溶性。去除电荷后,膜不再成为阻挡层。还原分子可以容易扩散通过膜,而一旦进入更具氧化性的区室,它可以再次失去电子,恢复为蓝色、带电并被困住的形式。染料的氧化还原化学因此也是其运输机制。改变电子数量,就改变了通透性。
第一步所需的电子来自细胞自身。哺乳动物细胞通过质膜进行电子传递,将还原当量从细胞内供体移动到表面受体。这种跨质膜活动是大多数细胞类型中的正常细胞功能,而处理噻嗪类染料的内皮表面还原酶具有一个关键特点:在能关闭后续步骤的氰化物和叠氮化物剂量下,它仍能继续工作。这种分离正是整个机制的核心。
膜分配首先出现,并几乎解释了摄取现象
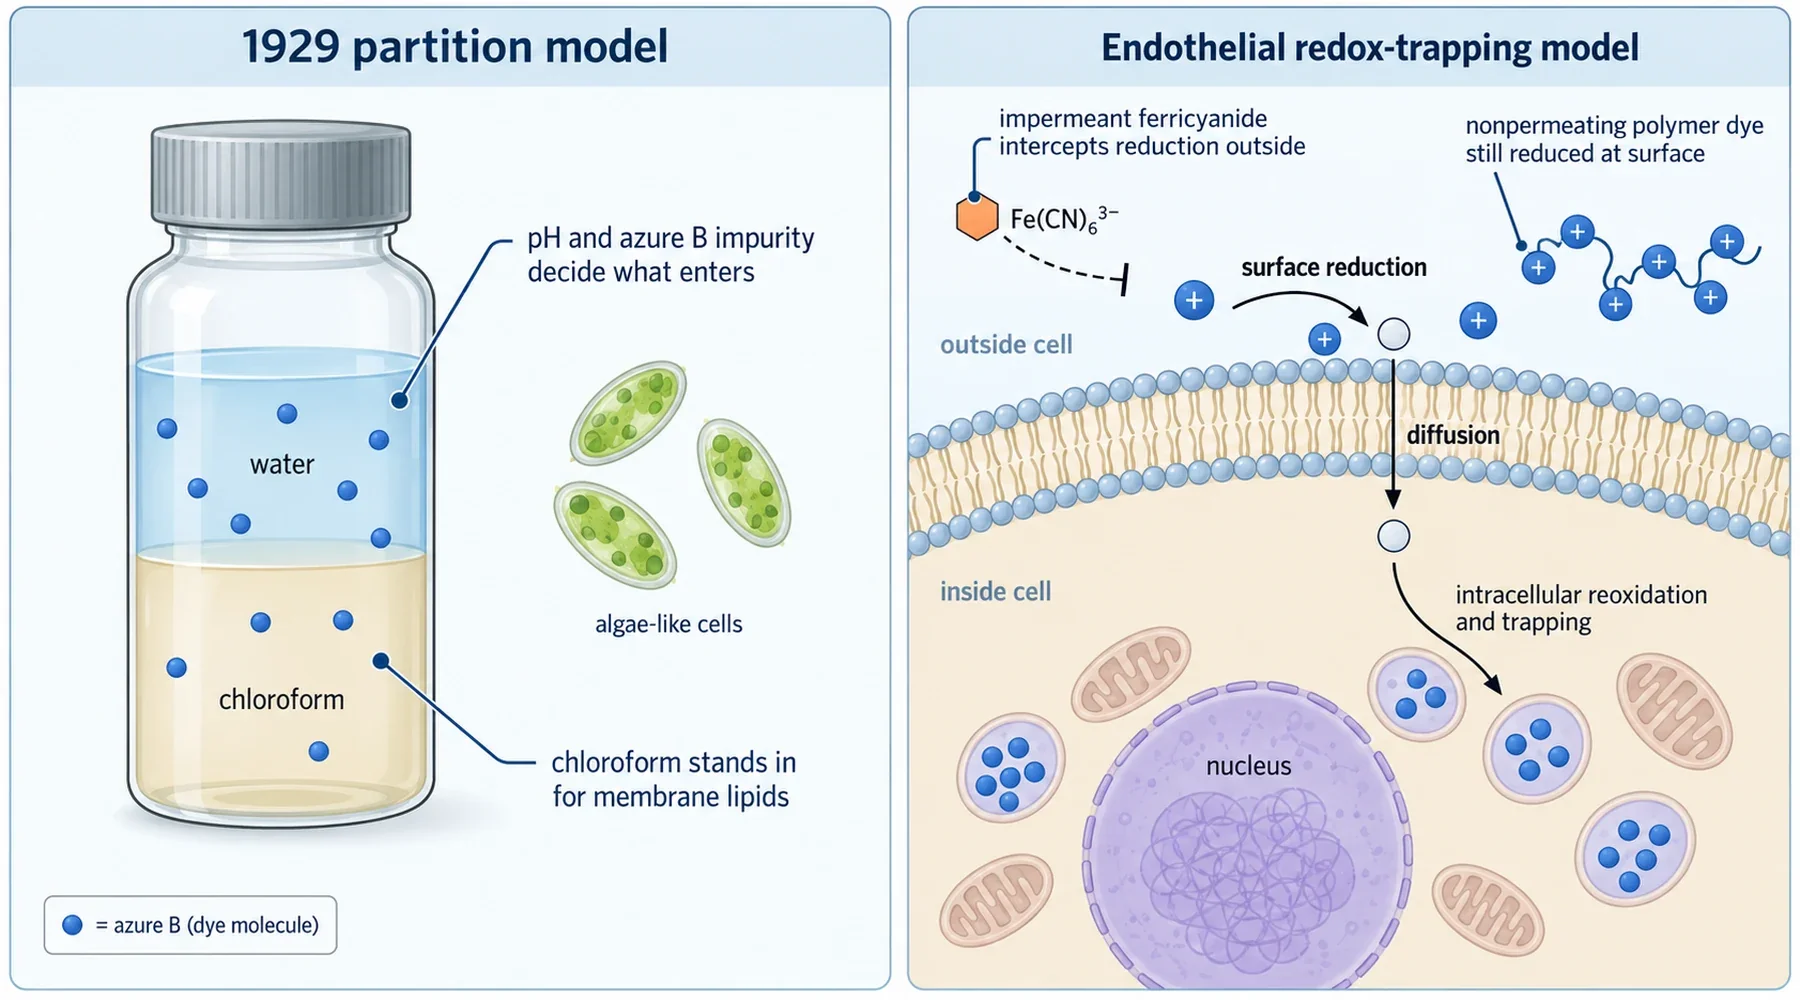
1929年,洛克菲勒研究所的Marian Irwin提出了一个更简单的问题。也许染料进入只是水相与细胞脂质层之间的分配过程,而氯仿层可以在实验室中模拟这些脂质层。她的分光光度穿透研究将水性染料溶液与氯仿混合,并比较进入有机相的部分与进入活藻细胞的部分。
这项工作中的两个发现至今仍值得关注。首先,商业亚甲蓝溶液含有三甲基硫堇,也就是现在所称的Azure B,而这种杂质的渗透速度比亚甲蓝本身更快,尤其是在碱性pH下,此时脂溶性的游离碱形式占主导。一些表面上的亚甲蓝进入实际上是Azure B的选择性进入。其次,pH通过决定电离状态控制结果,而受损细胞吸收的染料远多于完整细胞。分配系数和电荷状态决定了人工系统和活细胞各自吸收的内容,而两者之间的相似性支持了细胞边界存在非水层的观点。
该模型准确预见了脂质和电离作用的重要性,但它无法区分两种情况:一种是染料以自身形式进行分配;另一种是染料在表面发生化学转化,以伪装形式穿过,然后在内部重新转化。这一区别需要不同的实验,而七十年后,这一实验在肺内皮细胞中出现。
外部还原,内部捕获
Merker及其同事使用培养的牛肺动脉内皮细胞,并提出了三个步骤的过程:氧化态染料在细胞表面被还原为无色脂溶性形式,还原形式扩散进入细胞,随后细胞内再氧化重新生成膜不透过的氧化态形式并积累。他们随后通过试图在特定位置破坏这一过程,对其内皮噻嗪染料摄取研究进行了验证。
第一个工具是铁氰化物,一种无法进入细胞的电子受体。当表面酶在细胞外将蓝色染料还原为无色形式时,铁氰化物可以夺回这些电子,在染料进入细胞之前重新生成培养液中的蓝色染料。当铁氰化物过量存在时(10微摩尔染料对应50至500微摩尔铁氰化物),染料摄取几乎停止;只有在铁氰化物被消耗后,摄取才恢复正常速度。动力学也以第二种方式支持这一结论。铁氰化物以大致恒定速率消失,符合稳定表面还原通量驱动可循环介质的情况,而细胞外染料则随着其储备减少呈指数下降。恒定通量加上消耗中的储备池意味着铁氰化物信号反映的是持续还原,而不是染料分子离开溶液。
第二个工具完全去除了跨膜步骤。研究组将甲苯胺蓝O(一种接近的噻嗪类化合物)连接到一个大型聚丙烯酰胺链上,使其在任何氧化状态下都无法进入细胞。细胞仍然能够还原这种连接后的染料。因此,还原过程并不需要染料进入细胞内部。相关机制位于表面,或与表面存在电耦合。
随后出现了赋予论文标题意义的分离结果。浓度为2毫摩尔的氰化物和叠氮化物强烈抑制染料积累,在显微镜下,通常围绕细胞核分布的深蓝色和紫色包涵体几乎消失。然而,两种抑制剂都没有减慢细胞外还原:铁氰化物循环仍未降低,无法透过膜的聚合物染料仍然被还原。阻断发生在下游。氰化物和叠氮化物阻止的是细胞内再氧化和隔离,而不是表面还原。活性检测支持这一解释,因为经过这些处理后,细胞仍保留细胞质标志酶乳酸脱氢酶,因此摄取减少并非单纯由中毒或膜破裂造成。
论文中的一个注意事项仍然适用。蓝色包涵体位于细胞核周围但不在细胞核内部,这与细胞器内发生氧化的解释一致,但该研究没有确定具体是哪类细胞器。其他细胞类型中的类似模式曾在证据不足的情况下被称为溶酶体定位。应将捕获机制视为已建立,而具体位置视为暂定。希望追踪电子下一步去向的读者,可以继续阅读线粒体电子传递和氧化还原处理以及更广泛的按途径划分的吸收和分布。
染色不等于暴露量
第三项研究展示了这种摄取逻辑与生物读数结合时会发生什么。Scott及其同事发现,甲基β环糊精(一种环形糖类结构)可直接结合亚甲蓝,其包合物的结合常数约为每摩尔310,而染料二聚化约为每摩尔5846。在L929成纤维细胞中,这种结合阻止了细胞染色和葡萄糖摄取刺激:预先与环糊精孵育会阻止蓝色染色,而之后加入环糊精则会加速去染色。当细胞中的蓝色光学信号消失时,被激活的葡萄糖转运也同步减弱。
作者认为,这种相关性更支持染料与葡萄糖转运激活途径中的某种蛋白质发生直接相互作用,而不是长期氧化应激机制。这一推断合理但存在边界。实验没有指出具体蛋白,没有证明染料直接结合转运蛋白本身,并且去染色与效应丧失之间的相关性不能排除所有氧化还原介导途径。
持久的经验在于测量方式。光学染色反映的是可见的、氧化态、与细胞相关的染料。它完全忽略无色还原池,因此颜色较浅的细胞仍可能包含染料当量,而强烈染色的细胞反映的是被捕获的氧化态染料,而不是总组织暴露量或效应大小。同样的警示也适用于更大尺度:比较不同细胞类型之间的染色,或将深色组织切片视为更高暴露量的证明,重复了最初观察培养皿时的错误。摄取是还原、扩散和再氧化组成的循环,而任何单一时刻的蓝色形式快照只能看到其中一部分。实验室染色和处理以及解释剂量和暴露相关声明的实际影响也由此直接延伸。