
Članak
Metilensko plavo kao antioksidans i prooksidans: šta menja ishod?
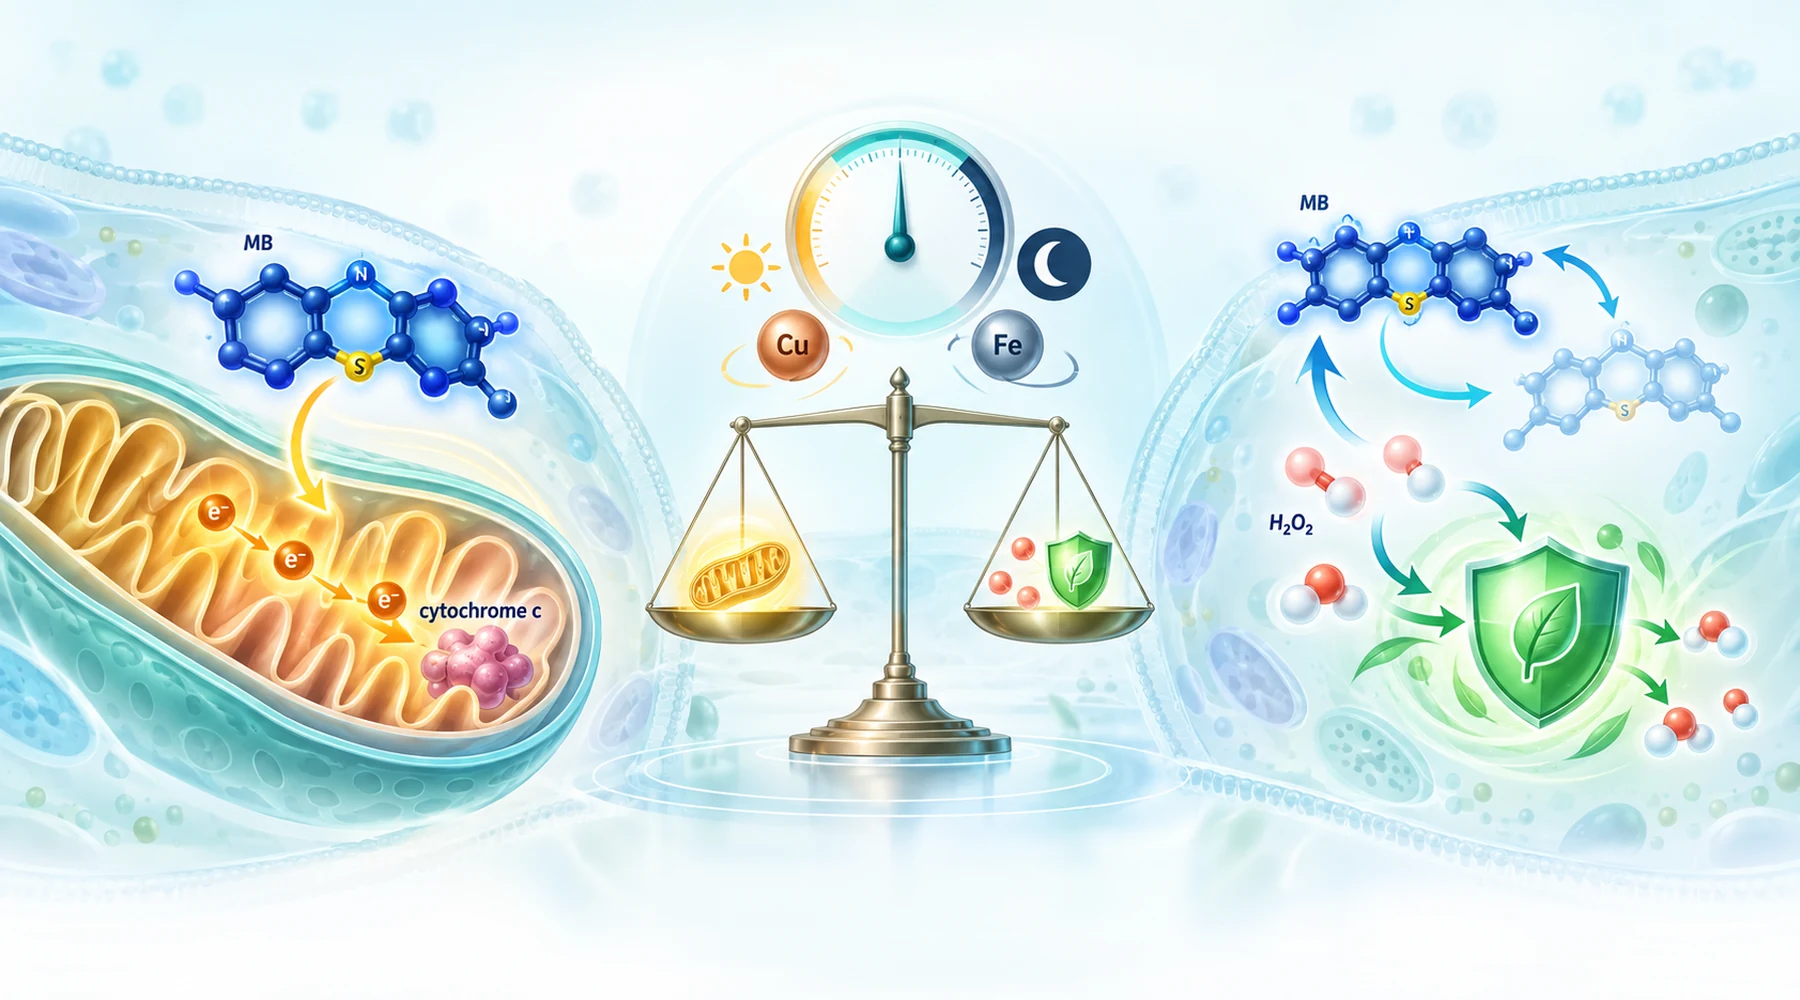
Pretpostavimo da dve laboratorije ispituju istu plavu boju i prijavljuju suprotne rezultate. U prvoj, izolovane mitohondrije mozga bolje respiriraju i proizvode više ATP-a. U drugoj, isti preparat oslobađa znatno više vodonik-peroksida. Oba izveštaja su tačna. Opisuju isti ciklus posmatran sa dva kraja, a zabuna nastaje kada čitaoci jedan kraj shvate kao celu priču.
Greška je u pitanju koja oznaka odgovara molekulu. Metilensko plavo je posrednik u prenosu elektrona, što mapa njegovih meta u ćelijskoj biologiji prikazuje u širem kontekstu. Oksidovana boja prihvata elektrone i postaje bezbojni leukoMB. LeukoMB predaje te elektrone dalje i ponovo postaje plav. Ono što opažate zavisi od toga ko daje elektrone, ko ih prima i da li sistem može da ukloni vodonik-peroksid nastao usput. Pitanje koje vredi postaviti nikada nije da li je boja antioksidans. Pitanje je šta uslovi omogućavaju tom posredniku da uradi.
Ciklus koji stvara obe strane
U mraku je osnovni ciklus kratak. NADH, NADPH ili prenosioci u respiratornom lancu redukuju boju. Redukovana boja zatim ima konkurentne puteve. Može da preda elektrone citohromu c i podrži tok mimo oštećenog kompleksa, zbog čega se respiracija i membranski potencijal delimično oporavljaju pri blokadi kompleksa I ili III. Ili može da preda elektrone direktno kiseoniku, čime se obnavlja plavi oblik i nastaje vodonik-peroksid. Pošto se boja obnavlja, mala količina može mnogo puta da ponovi ovaj ciklus, neprekidno trošeći redukcione ekvivalente i neprekidno stvarajući peroksid.
Još dve grane potpuno menjaju hemiju. Slobodni bakar ili gvožđe pretvaraju taj difuzibilni peroksid u mnogo razornije lokalne oksidanse kroz reakcije Fentonovog tipa. Crvena svetlost otvara zasebnu fotohemijsku granu u kojoj pobuđena boja prenosi energiju kiseoniku i stvara singletni kiseonik, vrstu detaljno obrađenu u objašnjenju fotohemije tipa I i tipa II. Redoks ciklus u mraku, oštećenje pojačano metalima i fotodinamičko oštećenje tri su različita mehanizma kojima je zajednički samo početni molekul.
Matrica uslova i ishoda
Tabela u nastavku je pregled koji vredi sačuvati. Svaki red prikazuje jednu promenljivu, smer u kojem ona usmerava ishod i eksperiment koji to potkrepljuje. Pozitivno znači zaštitni efekat ili poboljšan mereni pokazatelj. Nepovoljno znači više oksidansa, veće iscrpljivanje zaliha ili veće oštećenje.
| Uslov | Smer ishoda | Šta je eksperiment pokazao |
|---|---|---|
| Niska koncentracija, 0.1 do 1 uM, izolovane mitohondrije | Pozitivni bioenergetski efekti uz više peroksida | 0.1 uM poboljšalo je potrošnju kiseonika u mitohondrijama srca zdravih pacova i pacova sa dijabetesom; 100 nM do 1 uM delimično je obnovilo ATP, membranski potencijal i preuzimanje kalcijuma u mitohondrijama mozga sa blokiranim respiratornim lancem, dok je oslobađanje peroksida poraslo u svim uslovima |
| Viša koncentracija, iznad 5 uM, ćelije lišene glukoze | Nepovoljan oksidativni signal | Endotelne ćelije oksidovale su opštu ROS sondu i gubile redukovani glutation iznad 5 uM kada glukoza nije bila prisutna; dodavanje glukoze sprečilo je oba efekta |
| Supstrati kompleksa I (glutamat plus malat) | Više peroksida | Istraživanja mitohondrija mozga i srca utvrdila su povećano oslobađanje peroksida uz supstrate povezane sa NADH |
| Sukcinat plus rotenon, mitohondrije srca, 0.1 uM | Manje peroksida u tom protokolu | Jedini jasno antioksidativni rezultat merenja peroksida u ovom skupu; treba imati u vidu da je protokol uključivao rotenon i drugo tkivo, pa ga sam supstrat ne objašnjava |
| Crvena svetlost, 20 uM plus 630 nm | Nepovoljno oštećenje DNK | Nije bilo značajnih lezija mitohondrijske DNK u mraku pri 20 uM; ista koncentracija uz crvenu svetlost oštetila je svaki ispitani fragment |
| Veoma visoka koncentracija u mraku, 100 uM | Nepovoljno selektivno oštećenje DNK | Selektivne lezije mitohondrijske DNK na sekvencama bogatim purinima, kvalitativna promena u odnosu na peroksidni signal pri nanomolarnim koncentracijama |
| Bakar ili gvožđe plus NADH, DNK u sistemu bez ćelija | Nepovoljne oksidativne lezije | Bakar je usmeravao oštećenje na sekvencu p53 sklonu mutacijama; gvožđe-EDTA izazvalo je široko rasprostranjeno oštećenje; katalaza i helatori metala blokirali su odgovarajuće puteve; oksidovani guanin se povećao |
| Glukoza prisutna, intaktne ćelije | Zaštitno ublažavanje uprkos bržem ciklusu | Glukoza je povećala redukciju boje, ali smanjila neto stres, što je u skladu sa obezbeđivanjem NADPH pentozno-fosfatnim putem za obnavljanje antioksidanasa |
| Ćelije sa povećanim sadržajem askorbata | Mešovito: askorbat se troši, signal sonde se ublažava | Boja je postepeno oksidovala unutarćelijski askorbat čak i uz prisutnu glukozu, istovremeno delimično suzbijajući oksidaciju sonde; cenu su platile odbrambene zalihe |
| Životinje prethodno tretirane rotenonom, boja data prva | Pozitivan ishod u tkivu | Prethodni tretman bojom smanjio je lezije mitohondrijske DNK izazvane rotenonom u srednjem mozgu miša uprkos povećanju peroksida u izolovanim mitohondrijama |
Suština je u obrascu koji se vidi kroz redove. Stvaranje peroksida i biološka zaštita zasebne su ose. Tretman može istovremeno imati nepovoljan rezultat na prvoj, a pozitivan na drugoj.
Zašto ista doza daje različite odgovore
Koncentracija određuje kapacitet prenosa, a ne ishod. Oslobađanje peroksida iz mitohondrija mozga merljivo je raslo od 50 nM naviše u istraživanju intaktnih mitohondrija mozga, dok je za jasno oštećenje mitohondrijske DNK u mraku bilo potrebno 100 uM. To je približno dve hiljade puta veća koncentracija između prvog signala i genotoksičnosti, ali nije margina bezbednosti. Krajnji pokazatelji, kompartmenti i trajanje izlaganja razlikuju se, pa brojevi označavaju različite pojave, a ne tačke na jednoj krivoj. Razmatranje odnosa doze i odgovora smešta ovu vrstu razlike između signala pri niskoj koncentraciji i oštećenja pri visokoj koncentraciji u širi kontekst hormeze.
Supstrat određuje gde elektroni ulaze. Izvori energije povezani sa NADH obezbeđuju boji obilje redukcionih ekvivalenata i za koristan zaobilazni put i za rasipnu reakciju sa kiseonikom. Često citirani zaključak da sukcinat čini boju antioksidansom, a glutamat prooksidansom, izvodi iz podataka više nego što oni pokazuju, jer je uslov merenja peroksida sa sukcinatom u studiji srca takođe sadržao rotenon, a korišćeni su drugačije tkivo i doza nego u istraživanju mozga koje je utvrdilo povećan peroksid uz svaki supstrat i u svakom stanju respiracije.
Svetlost menja mehanizam, a ne samo intenzitet. Najjasnije poređenje u ovom skupu jeste da 20 uM u mraku ne izaziva ništa merljivo na fragmentima mitohondrijske DNK, dok 20 uM pod crvenom svetlošću oštećuje sve njih. Svako ko poredi eksperiment pod svetlošću sa eksperimentom u mraku poredi fotohemiju sa redoks ciklusom.
Metali pretvaraju oksidans u drugi oblik. Bez metala, ciklus boje u mraku stvara peroksid, difuzibilni molekul koji ćelije koriste i kao signal. Uz dostupan bakar ili gvožđe, boja redukovana pomoću NADH podstiče redukciju metala, a redukovani metal aktivira peroksid u vrste hidroksilnog tipa ili bakar-peroksidne vrste uz DNK. Tako je istraživanje u sistemu bez ćelija sa NADH i jonima metala proizvelo i selektivno oštećenje na mestima sklonim mutacijama i široko rasprostranjeno oštećenje DNK od iste početne boje. Način na koji kompartment reguliše metale, a ne samo boja, određuje da li je ova grana značajna.
Raspoloživost izvora energije određuje da li ćelija može da plati cenu. U endotelnim ćelijama izloženim koncentracijama boje od 2 do 20 uM, uklanjanje glukoze otkrilo je oksidativnu cenu, dok ju je obezbeđivanje glukoze izbrisalo, iako je glukoza ujedno ubrzavala redukciju boje. Brži ciklus uz snabdevene odbrambene mehanizme bolji je od sporijeg ciklusa uz iscrpljene odbrambene zalihe. Svaku tvrdnju o oksidansima koja izostavlja status glukoze ili NADPH smatrajte nepotpunom.
Tkivo određuje raspoloživu opremu. Endotelne ćelije obnavljaju NADPH metabolizmom glukoze i imaju citosolne zalihe antioksidanasa. Izolovane mitohondrije nemaju ništa od toga. Prečišćena DNK nema čak ni mehanizme popravke. Rezultat u jednom preparatu malo govori o ostalima, zbog čega će planirani tekst o odgovorima specifičnim za tkiva morati jasno da razdvoji ove sisteme.
Direktno merenje nije naknadna odbrana
Mnogi tekstovi spajaju dva nivoa koja eksperimenti razdvajaju. Jedan nivo postavlja pitanje koliko se oksidansa pojavilo. Drugi pita kako je ćelija odgovorila.
Testovi peroksida tipa Amplex najbliži su prvom nivou, ali čak i oni prikazuju neto tok, odnosno stvaranje umanjeno za razgradnju i izvoz. Studija mitohondrija mozga utvrdila je promene na obe strane: stvaralo se više peroksida, a uklanjanje dodate jednokratne količine peroksida bilo je sporije. Dalje niz tok nalaze se oksidacija glutationa, potrošnja askorbata, oksidovani guanin i lezije DNK koje blokiraju polimerazu. Svaki korak dodaje biološke procese između oksidansa i merenog pokazatelja.
Antioksidativni enzimi čiju ekspresiju pokreće Nrf2 i mitohondrijska biogeneza pripadaju drugom nivou. To su adaptivni programi koje blag peroksidni impuls može da pokrene, a autori studije zaštite mitohondrija mozga predlažu upravo takav okidač u vidu blagog stresa, uz napomenu da se uzročni lanac preko Nrf2 oslanja na prethodna istraživanja, a ne na njihovo sopstveno potpuno dokazivanje. Zaštita koja nastupa satima kasnije zahvaljujući novim proteinima ne znači da je početna hemija bila antioksidativna. Znači da je mali prooksidativni događaj obezbedio veću odbranu. Smernice za tumačenje takvih tvrdnji, uključujući ograničenja testova i razlike među preparatima, tema su vodiča za čitanje istraživanja o metilenskom plavom.
Zašto se testovi međusobno ne slažu
Opšta sonda poput dihidrofluoresceina pokazuje oksidaciju sonde izazvanu širokim spektrom oksidansa, a ne koncentraciju peroksida. Zavisi od hemije peroksidaze i hema i može propustiti porast peroksida koji kalibrisan Amplex test registruje. Studija mitohondrija mozga utvrdila je naglo povećanje peroksida bez odgovarajućeg signala superoksida, što je upozorenje da se ne treba oslanjati na pojedinačnu tvrdnju o antioksidativnom dejstvu zasnovanu na testu sa bojom. Optičko preklapanje jeste opravdano pitanje za kontrolu, jer boja apsorbuje vidljivu svetlost blizu uobičajenih opsega ekscitacije i emisije. Ipak, pažljivo sprovedena studija kalibrisala je merenje prema poznatim količinama peroksida, skratila izlaganje ekscitacionoj svetlosti uz malu promenu signala i zasebnom elektrodom potvrdila sporije uklanjanje peroksida. Interferenciju treba proveriti kontrolnim eksperimentom, a ne automatski odbaciti rezultat.
Rezultat za kalcijum pokazuje istu potrebu za preciznošću. Akutna primena boje nije promenila ukupno opterećenje kalcijumom pre prelaza permeabilnosti u studiji srca, ali je poboljšala brzinu preuzimanja kalcijuma u mitohondrijama mozga sa blokiranim respiratornim lancem u studiji mitohondrija srca usmerenoj na dijabetes. Različiti krajnji pokazatelji, različiti sistemi, bez protivrečnosti.
Kontrolna lista pre prihvatanja zaključka
Svaki zaključak o antioksidativnom ili prooksidativnom dejstvu posmatrajte kao izveštaj o određenom sistemu i postavite pet pitanja. Pri kojoj koncentraciji i u kom kompartmentu? Sa kojim donorom elektrona i kojim konkurentnim akceptorom? Pod svetlošću ili u mraku, i pri kojoj talasnoj dužini i dozi? Uz koje dostupne metale i kakvu snabdevenost izvorima energije i zalihama antioksidanasa? I kojim testom, koji meri tok oksidansa, oštećenje ili adaptivni odgovor? Promenite bilo koji odgovor i isti molekul može se u matrici pomeriti od zaštitnog do štetnog, bez ikakvog paradoksa.