
Artigo
Azul de metileno e NAD+/NADH: interpretar o equilíbrio redox celular
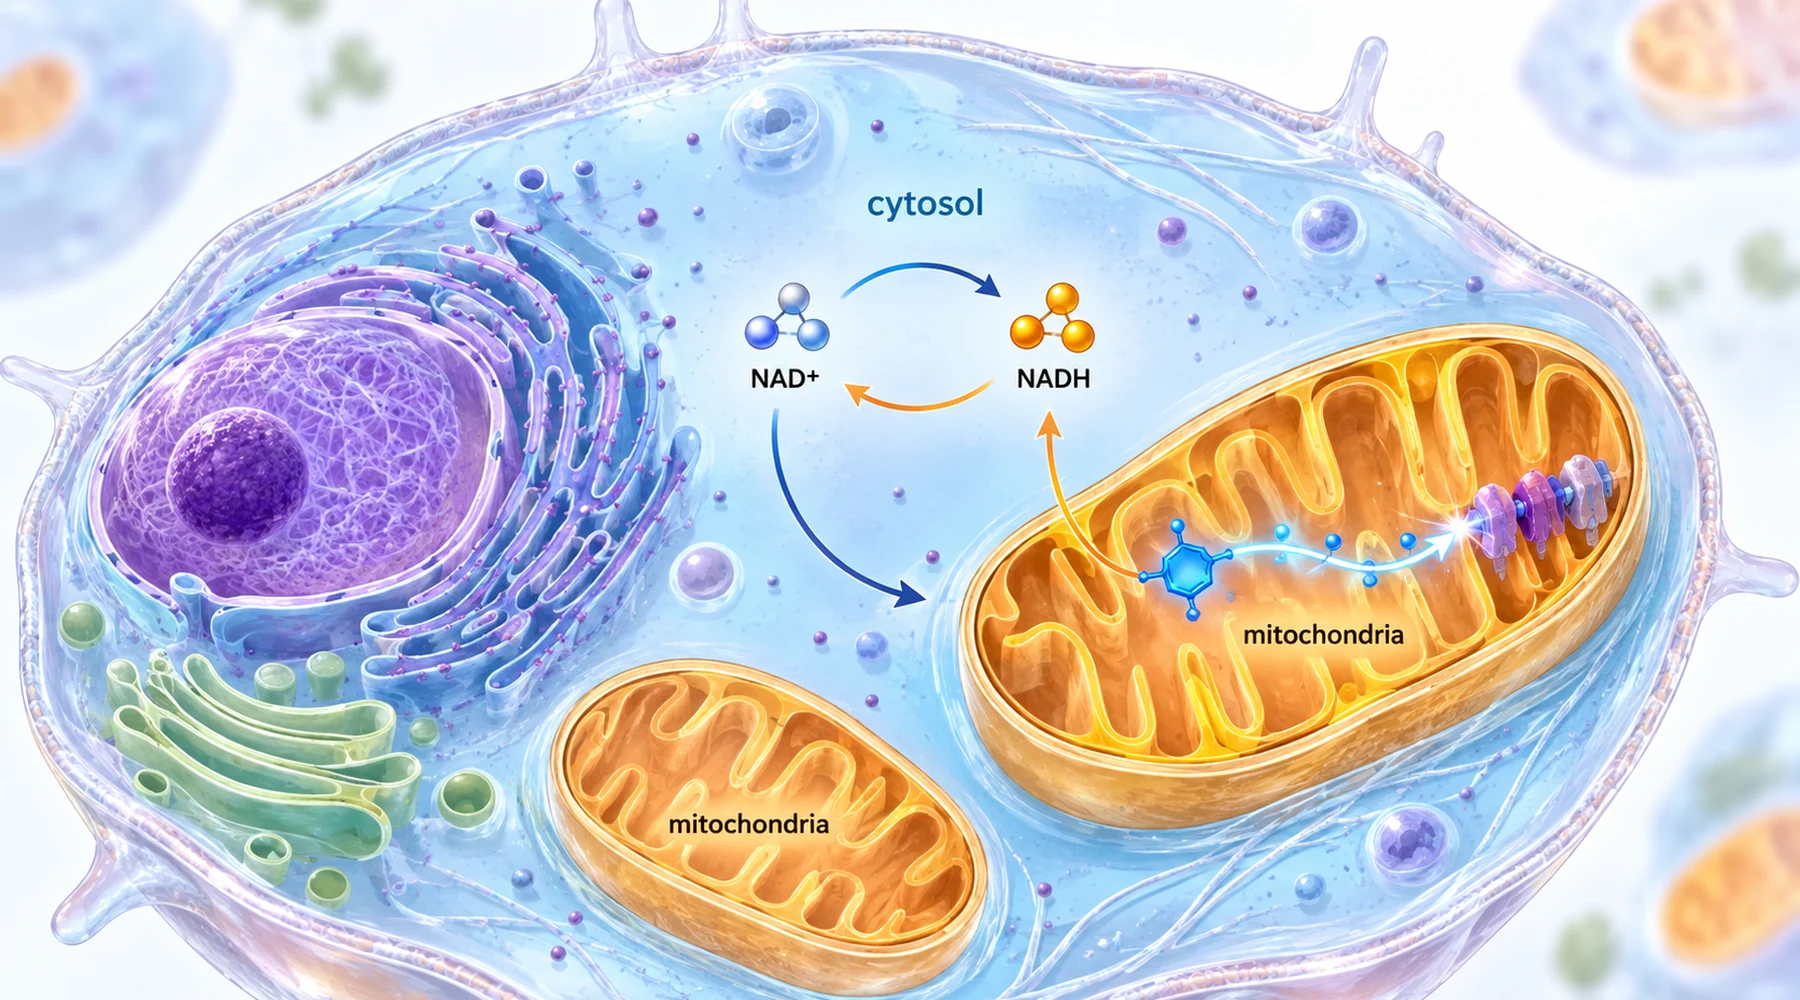
Os relatos sobre azul de metileno e NAD+ tendem a confundir três afirmações diferentes numa só. A primeira é que a razão entre NAD+ e NADH se deslocou no sentido do estado oxidado. A segunda é que a célula contém mais NAD total. A terceira é que a produção de energia recuperou. Estas afirmações parecem formar uma única história sobre a restauração do metabolismo. Nas experiências, porém, separam-se com frequência, e os resultados mais interessantes são precisamente os casos em que divergem.
A confusão é compreensível porque as três grandezas partilham o mesmo vocabulário. O NAD+ aceita eletrões em reações metabólicas e transforma-se em NADH; depois, as mitocôndrias oxidam o NADH de volta a NAD+ no complexo I e utilizam a energia libertada para alimentar a síntese de ATP. Uma explicação mais completa deste percurso dos eletrões encontra-se em a explicação sobre a cadeia de transporte de eletrões mitocondrial, e a vertente energética em ATP e metabolismo energético. Mas uma razão e uma quantidade total são objetos diferentes. A razão indica como a frota existente de transportadores se distribui entre estados carregados e descarregados. A quantidade total indica quantas moléculas transportadoras existem. Uma razão melhor com a mesma quantidade total significa redistribuição, não produção.
Dois compartimentos, dois indicadores
Há uma segunda distinção que provoca interpretações erradas mais subtis. As reservas citosólicas e mitocondriais de NAD estão amplamente separadas pela membrana mitocondrial interna, pelo que cada compartimento pode manter-se relativamente oxidado ou reduzido de forma independente. Um único valor para toda a célula oculta esta diferença.

A investigação no fígado tornou possível medir esta separação entre compartimentos. O equilíbrio entre lactato e piruvato indica a razão citosólica NAD+ para NADH, porque a lactato desidrogenase liga estes dois pares. O equilíbrio entre 3-hidroxibutirato e acetoacetato indica a razão mitocondrial através de um acoplamento semelhante. Quando ambos os pares são medidos em tecido rapidamente congelado, como no estudo de alimentação crónica com etanol em ratos, o resultado são duas leituras redox do mesmo fígado, e um composto pode alterar uma mais do que a outra.
O azul de metileno atua neste sistema como transportador de eletrões, e não como combustível. Aceita eletrões do NADH junto do complexo I, ficando reduzido, e depois transfere-os para transportadores a jusante, como o citocromo c. O efeito líquido é a oxidação do NADH sem passagem por toda a via normal. Este mecanismo explica tanto o seu interesse como o seu limite: pode aliviar um bloqueio redutor, mas não reconstrói um complexo danificado nem sintetiza novas moléculas de NAD.
Cinco estudos, um padrão de resultados divergentes
A tabela abaixo organiza os cinco estudos por tecido, parâmetro redox, parâmetro energético e o que efetivamente recuperou. Leia as duas últimas colunas em conjunto. Essa relação é o tema deste artigo.
| Tecido e agressão | Parâmetro redox com azul de metileno | Parâmetro energético e de sinalização | Resultado funcional |
|---|---|---|---|
| Fígado de rato, dieta crónica com etanol | Razões citosólica e mitocondrial NAD+/NADH amplamente restauradas; glicerol 3-fosfato normalizado | ATP inalterado pelo etanol ou pelo tratamento; ligeira descida do ATP com o corante no ponto temporal tardio | Infiltração gordurosa inalterada; lípidos e triacilglicerol permaneceram elevados |
| Hepatócitos e fígado de ratinho com dieta rica em gordura | Razão NAD+/NADH e teor de NAD+ aumentados nas células e no fígado | SIRT1 aumentada, PGC-1alpha desacetilada, DNA mitocondrial e utilização de oxigénio aumentados, ativação de AMPK dependente de SIRT1 | Acumulação de gordura hepática e esteato-hepatite reduzidas |
| Coração de rato diabético | Razão NADH/NAD+ reduzida durante a oxidação de substratos em mitocôndrias isoladas | Atividade de SIRT3 aumentada; menor acetilação da lisina em 83 locais de 34 proteínas | Volumes cardíacos e fração de ejeção melhorados; o próprio defeito do complexo I não foi corrigido |
| Retina de ratinho com deficiência de AIF e células fotorrecetoras tratadas com rotenona | Razão NADH/NAD+ normalizada nas células; stress oxidativo reduzido | Défice de ATP não corrigido nas células; vias de stress mitocondrial atenuadas | Espessura da retina e marcadores de fotorrecetores preservados; sobrevivência celular melhorada |
| Tendão de Aquiles humano e de rato, lesão por oxidante e colagenase | Equilíbrio de NAD+ e química do NAD total restaurados no sentido do controlo | ATP aumentado e ROS reduzidas nos casos em que ocorreu recuperação | Marcadores da matriz melhorados, exceto sob bloqueio direto do complexo I, em que a química se alterou mas o tecido não |
Quando a correção redox não recuperou o tecido
O estudo mais antigo do conjunto continua a ser o aviso mais claro. Ratos alimentados com etanol correspondente a 36 por cento da energia desenvolveram razões NAD+/NADH citosólicas e mitocondriais mais baixas, medidas através de ambos os pares indicadores, e o azul de metileno, a cerca de 42 mg por kg por dia na dieta, preveniu em grande medida essas alterações. No entanto, o triacilglicerol hepático aproximadamente triplicou no ponto temporal tardio, quer o corante estivesse presente quer não, e a histologia mostrou a mesma acumulação centrolobular de gordura. Os autores retiraram diretamente a conclusão desconfortável: a alteração redox que acompanha a oxidação do etanol não é, por si só, aquilo que produz o fígado gordo. Um leitor que interprete uma razão corrigida como um órgão corrigido apresentaria este artigo de forma incorreta. O desenho completo, incluindo controlos pair-fed e amostragem à meia-noite no pico de intoxicação, é descrito no estudo do etanol no fígado.
Compare-se isto com o trabalho sobre fígado sob dieta rica em gordura, em que o mesmo tipo de alteração da razão coincidiu com uma melhoria real do tecido. Em hepatócitos e no fígado de ratinho após administração oral, o azul de metileno aumentou a razão NAD+/NADH, e a cadeia de sinalização foi acompanhada passo a passo: SIRT1 aumentada, PGC-1alpha desacetilada, marcadores de biogénese mitocondrial e consumo de oxigénio mais elevados, seguindo-se o envolvimento de AMPK, CPT-1 e PPARalpha, tendo sido demonstrado que a ativação de AMPK dependia de SIRT1. Os ratinhos sujeitos à dieta rica em gordura acumularam menos gordura hepática. A lógica proposta é que, neste caso, a alteração redox desbloqueou um eixo de regulação génica em vez de apenas reequilibrar a química, como detalhado no estudo de SIRT1 e AMPK no fígado. A mesma família de medições do estudo com etanol, mas um resultado oposto no tecido. A diferença está na via a jusante, não apenas na razão.
Coração e retina: sirtuínas, acetilação e recuperação sem restauração do ATP
O estudo do coração diabético liga a alteração redox à acetilação de proteínas através de uma sirtuína diferente. As mitocôndrias diabéticas apresentam acetilação excessiva de lisina em enzimas metabólicas, associada a inflexibilidade na utilização de substratos. O azul de metileno a 10 mg por kg por dia facilitou a oxidação de NADH de forma dependente da dose entre 6 e 18 micromolar em mitocôndrias isoladas, aumentou a atividade de SIRT3 e reduziu amplamente a acetilação, enquanto os volumes cardíacos e a fração de ejeção melhoraram apesar de a alteração subjacente do complexo I se manter. O artigo é explícito quanto ao comportamento dependente da dose descrito noutros trabalhos: concentrações baixas favorecem a função de transporte redutor, enquanto concentrações mais elevadas podem redirecionar eletrões de forma improdutiva, pelo que o efeito é hormético e não monotónico. O levantamento proteómico e as medições cardíacas são apresentados no estudo da acetilação no coração diabético. O enquadramento deste mecanismo em termos de stress oxidativo insere-se no controlo do stress oxidativo e das ROS.
O estudo da retina leva esta separação ainda mais longe. Em ratinhos Harlequin com deficiência de AIF, um defeito de montagem do complexo I, o azul de metileno preservou a espessura da retina, os segmentos externos dos fotorrecetores e os marcadores de bastonetes, cones, células de Muller e células ganglionares. Em células fotorrecetoras 661W tratadas com rotenona, o corante normalizou a razão NADH para NAD+ e reduziu as espécies reativas de oxigénio a 15 micromolar, mas o ATP permaneceu reduzido nas concentrações que promoveram a sobrevivência. A estrutura e a sobrevivência foram preservadas sem recuperação energética, juntamente com uma atenuação da resposta a proteínas mal dobradas mitocondriais e da mitofagia. Este resultado reenquadra o corante como um agente que alivia o stress redutor e oxidativo, e não como um restaurador de energia, conforme documentado no estudo de proteção dos fotorrecetores da retina.
Tendão: a experiência em que a química mudou e o tecido não
O trabalho sobre o tendão de Aquiles contém os dois padrões no mesmo artigo e merece uma leitura cuidadosa. A análise completa, ramo a ramo, encontra-se em a análise de 2026 sobre tendinopatia de Aquiles. O tendão doente apresentou depleção de NAD+, uma razão NAD+ para NADH baixa, marcadores fracos do complexo I, ATP baixo e colagénio desorganizado. O azul de metileno restaurou a química do NAD e o ATP e melhorou os marcadores da matriz em preparações de rato, explantes humanos e células.
Seguiram-se então duas perturbações. Sob bloqueio do complexo I por rotenona, o corante continuou a proteger a química do NAD+ e os parâmetros relacionados com ATP, mas não conseguiu aliviar a carga oxidante, restaurar o equilíbrio do colagénio nem preservar a viabilidade. Sob knockdown de AIF, em que a maquinaria do complexo I estava insuficientemente formada em vez de farmacologicamente bloqueada, o corante produziu uma recuperação ampla: equilíbrio do NAD, stress oxidativo, potencial de membrana e marcadores de colagénio. A conclusão é precisa. Um valor de NAD melhor pode ser mantido mesmo quando o complexo I está bloqueado, mas a recuperação do tecido nesta preparação dependia de uma via funcional do complexo I. Nesta história, a alteração da razão é necessária sem ser suficiente, um ponto desenvolvido adicionalmente no estudo redox do tendão.
Como interpretar a próxima afirmação sobre redox
Três verificações evitam a maioria das interpretações erradas. Primeiro, pergunte a que compartimento pertence a razão e qual o par indicador que a produziu. Um resultado citosólico de lactato para piruvato não diz diretamente nada sobre a matriz mitocondrial. Segundo, verifique se o artigo relata uma alteração da razão, uma quantidade total maior ou recuperação do ATP, e trate cada uma como uma conclusão distinta. Terceiro, pergunte o que permaneceu comprometido: gordura não corrigida, um defeito do complexo I não corrigido ou um défice de ATP não corrigido surgem todos nestes artigos ao lado de melhorias redox reais.
Nada disto constitui um guia de dosagem. Os cinco estudos utilizam animais, células ou preparações de tecido submetidos a agressões controladas: dietas líquidas com etanol, diabetes induzida por estreptozotocina, defeitos genéticos do complexo I, rotenona, peróxido e colagenase. As concentrações utilizadas em cultura não se convertem diretamente em doses orais, e nenhum ser humano nestes artigos tomou azul de metileno para equilibrar o estado redox. O fio condutor para a farmacologia e dosagem redox é mais limitado e mais útil do que qualquer protocolo: o azul de metileno oxida NADH e altera a razão medida, as sirtuínas traduzem essa alteração em desacetilação e reprogramação metabólica em alguns tecidos, e a resposta do tecido depende de maquinaria que o corante não consegue substituir.