
Artigo
Azul de metileno para coloração de DNA e RNA: aplicações em géis e membranas
Um estudante corre um gel de agarose, cora-o com azul de metileno e não vê nada onde esperava uma banda intensa. Na bancada ao lado, um investigador de pós-doutoramento cora uma membrana de Northern com o mesmo frasco azul e obtém bandas ribossomais nítidas em três minutos. O estudante conclui que o gel falhou. O gel não falhou. As duas tarefas eram diferentes, e o mesmo corante responde a cada uma com sensibilidade diferente, fundo diferente e regras diferentes para o que acontece a seguir.
A coloração de DNA com azul de metileno e a coloração de RNA com azul de metileno partilham a mesma química, mas não a mesma finalidade. Num gel, o corante revela a quantidade de ácido nucleico presente numa matriz porosa. Numa membrana, revela se a transferência funcionou e se as pistas foram carregadas de forma uniforme. Quando esta distinção fica clara, os protocolos, os limites de deteção e os limites de compatibilidade tornam-se fáceis de enquadrar.
A resposta curta
O azul de metileno é um corante catiónico planar que se liga aos ácidos nucleicos de forma não covalente e reversível, através de uma combinação de atração eletrostática pelo fosfato, intercalação entre pares de bases e associação ao sulco menor. Essa reversibilidade é precisamente o ponto. As bandas podem ser coradas e observadas com luz visível, documentadas e, em seguida, descoradas ou purificadas para clonagem, hibridação ou nova sondagem.
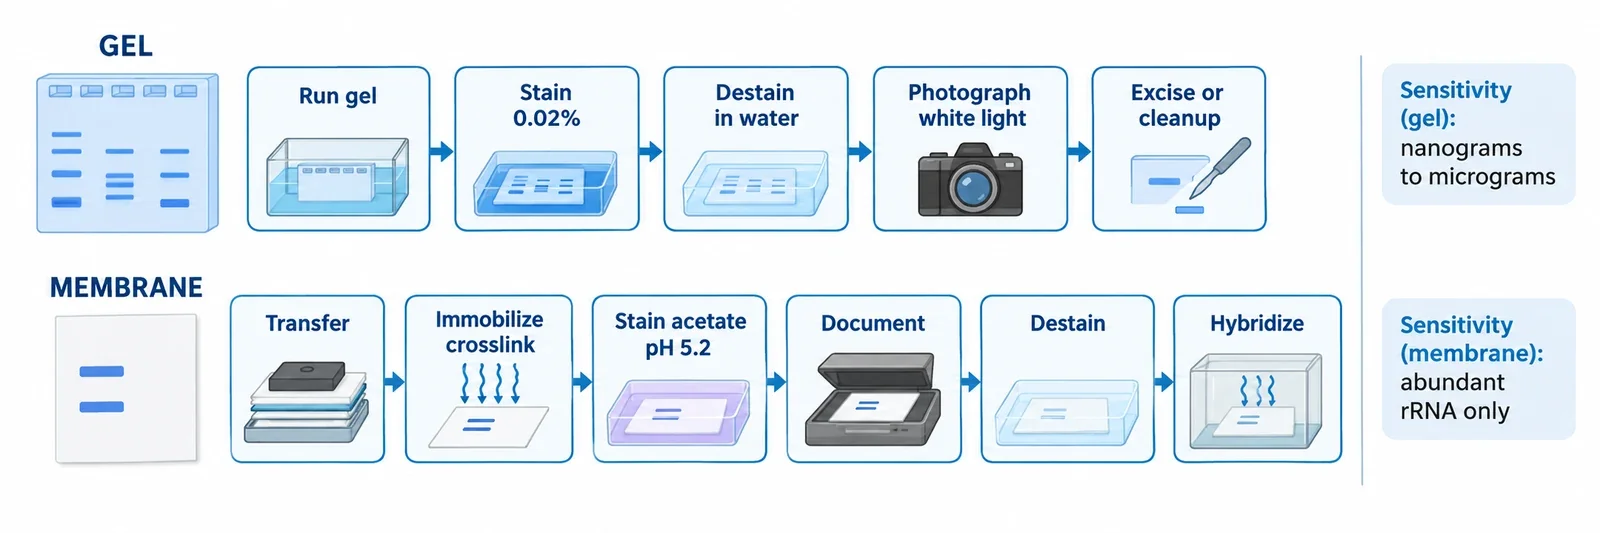
Para a coloração com azul de metileno de DNA de cadeia dupla em gel de agarose, a receita rápida padrão é 0.02 percent w/v (200 micrograms per mL) em água, com cerca de 15 minutes de coloração mais cerca de 15 minutes de descoloração em água, observando-se numa caixa de luz branca. Para membranas, a receita clássica de Northern blot utiliza 0.02 to 0.04 percent de corante em acetato de sódio próximo de pH 5.2, vários minutos de coloração após a transferência e imobilização, seguidos de lavagem com água e descoloração completa antes da hibridação. A sensibilidade é modesta: dezenas a centenas de nanograms por banda de gel em boas condições, e guias conservadores indicam 0.5 to 1 microgram. Isto está várias ordens de grandeza acima dos valores do brometo de etídio e dos corantes SYBR. Em membranas, não existe um único limite de deteção útil para transcritos porque a coloração mostra sobretudo RNA ribossomal abundante e o material total carregado. Não substitua nenhuma destas receitas por uma solução de suplemento de venda a retalho. Os métodos validados pressupõem corante de grau analítico, tampões definidos e manipulação isenta de RNase quando está envolvido RNA.
Como funciona a ligação e onde pode induzir em erro
O modelo útil tem três partes. Primeiro, o sistema de anéis com carga positiva é atraído pela cadeia principal de fosfato com carga negativa. Trabalhos espectroscópicos mostram que este componente eletrostático é dominante em baixa concentração salina, enquanto a modelação e a dinâmica molecular mantêm a intercalação e a ligação ao sulco menor como modos estáveis para DNA de cadeia dupla, conforme resumido em um estudo espectroscópico sobre a ligação do azul de metileno ao DNA. Segundo, existe alguma preferência por GC, com modelos a favorecerem passos CpG e GpC e experiências a relatarem associação preferencial a dúplex ricos em GC em trabalhos sobre preferências de intercalação do azul de metileno, mas os dúplex AT também se ligam. A coloração de rotina não é específica de sequência. Terceiro, o DNA de cadeia simples e o RNA ligam-se sobretudo através de interações eletrostáticas e empilhamento com bases acessíveis e regiões dúplex, razão pela qual a intensidade da coloração varia com o comprimento, a sequência e a estrutura secundária.
Daqui resultam duas consequências. Como a ligação é não covalente, o corante sai durante a lavagem. As bandas de poliacrilamida desvanecem rapidamente, a menos que sejam deliberadamente fixadas, e existe uma variante específica de fixação permanente precisamente porque a coloração normal é temporária, tal como descrito por Soto e Draper para géis PAGE. Como o corante é um fotossensibilizador, a iluminação intensa e prolongada de DNA corado na presença de oxigénio pode oxidar a guanina e, eventualmente, provocar quebras nas cadeias, mecanismo detalhado em trabalhos sobre oxidação da guanina sensibilizada por azul de metileno. Uma observação breve sob luz branca evita os conhecidos danos por UV dos fluxos de trabalho clássicos com brometo de etídio, e essa vantagem é real na recuperação preparativa. A luz visível é menos agressiva, não inofensiva. Mantenha a iluminação curta quando o DNA se destinar a clonagem. Para compreender a fotoquímica mais ampla subjacente a esta precaução, consulte as duas vias da fotoquímica do azul de metileno. Para o par redox e os estados de carga que explicam por que motivo a forma oxidada se liga e a forma reduzida não, consulte a química da estrutura e das propriedades do azul de metileno.
Tarefa um: coloração dentro de géis
A coloração em gel responde a uma pergunta: existe ácido nucleico suficiente nesta banda para ser visto a olho nu. O caso mais bem caracterizado é o DNA de cadeia dupla em agarose. O método original de gel com azul de metileno de Flores e colaboradores validou o protocolo rápido de 0.02 percent em agarose a 1 percent e demonstrou posteriormente recuperação e clonagem bem-sucedidas. O mesmo protocolo do fornecedor aparece na página do produto azul de metileno da IBI Scientific, que apresenta lado a lado a receita de 0.04 percent para membranas e a variante rápida para gel.
Fluxo de trabalho prático:
- Corra o gel normalmente. Faça a coloração após a eletroforese, não durante, a menos que a transferência ou a resolução tenham sido validadas para um método modificado.
- Mergulhe em 0.02 percent w/v de azul de metileno em água destilada, com agitação suave, durante cerca de 15 minutes.
- Descore em várias mudanças de água, durante cerca de 15 minutes no total, até o fundo da matriz diminuir e as bandas se destacarem.
- Fotografe de imediato num iluminador de luz branca.
A agarose e a poliacrilamida comportam-se de forma diferente. A agarose retém corante na matriz, pelo que a descoloração é a etapa lenta. Os géis finos de poliacrilamida coram rapidamente, mas também perdem o corante depressa, o que ajuda na excisão preparativa e prejudica os registos de arquivo. Oligonucleótidos sintéticos em poliacrilamida podem ser localizados com a mesma receita de 0.02 percent em 20 to 30 minutes, com lavagens repetidas em água, seguindo métodos PAGE estabelecidos ao estilo de Current Protocols. Foram descritas variantes muito diluídas, próximas de 0.0002 percent em TBE diluído, para oligos preparativos ao longo de várias horas, mas a base de evidência é mais fraca.
A diferença entre DNA e RNA é relevante. O DNA de cadeia dupla apresenta a ligação estruturada mais forte. O RNA e o DNA de cadeia simples também coram, mas de forma mais fraca e menos previsível. Para géis de RNA em agarose com formaldeído, a maioria dos laboratórios evita a coloração azul no próprio gel e transfere primeiro o RNA para uma membrana, corando-o depois nessa superfície. Esta abordagem troca um sinal fraco no gel por um sinal mais nítido na membrana, além de fornecer um registo do carregamento.
Tarefa dois: coloração em membranas
A coloração em membrana responde a outra pergunta: a transferência funcionou e as pistas são comparáveis. A aplicação clássica é a coloração reversível para Northern blot de Herrin e Schmidt, originalmente com 0.04 percent de corante em 50 mM de acetato de sódio a pH 5.0 durante 2 to 3 minutes, seguida de lavagem com água, podendo o corante ser removido com SDS diluído em SSPE antes da hibridação.
A variante moderna amplamente utilizada é a seguinte:
- Transfira RNA ou DNA desnaturado para nylon ou nitrocelulose e, em seguida, imobilize por reticulação UV ou por aquecimento, para que a amostra não se perca durante a coloração.
- Opcional, mas comum: humedeça a membrana em 5 percent de ácido acético durante cerca de 15 minutes.
- Core durante 5 to 10 minutes em 0.02 to 0.04 percent de azul de metileno em 0.3 to 0.5 M de acetato de sódio, próximo de pH 5.2.
- Lave e descore em água durante 5 to 15 minutes, documente e, depois, remova o corante residual antes da hibridação.
O nylon com carga positiva domina o trabalho de Northern. A nitrocelulose também funciona com o mesmo fluxo de trabalho de ácido acético mais acetato. A imagem é utilizada para confirmar a transferência, comparar as bandas 28S e 18S (ou 23S e 16S para RNA bacteriano), marcar ladders e padrões e manter um registo aproximado para normalização do RNA total. Métodos de Northern publicados quantificam bandas ribossomais coradas para verificar o carregamento, incluindo trabalhos em ciência dos lacticínios que utilizaram bandas ribossomais coradas com azul de metileno para normalização. As membranas de Southern podem ser visualizadas da mesma forma, mas o corante está muito mais estabelecido como verificação de carregamento e transferência em Northern, e o DNA de Southern é desnaturado antes da transferência, pelo que os valores de sensibilidade em gel não são diretamente aplicáveis.
Limites de deteção e fundo: onde o azul perde
A comparação abaixo é deliberadamente aproximada. O desempenho da coloração depende da percentagem do gel, da largura da banda, da óptica e do rigor da descoloração. Considere cada número como uma ordem de grandeza, não como uma especificação.
| Corante e formato | Deteção aproximada por banda | Interpretação |
|---|---|---|
| Azul de metileno, dsDNA em agarose | 40 to 250 ng otimizado; 0.5 to 1 microgram conservador | Suficiente para cargas preparativas e géis didáticos. Fraco para bandas vestigiais. |
| Azul de metileno, ssDNA curto ou RNA ou oligos em PAGE | Roughly 0.1 to 0.5 microgram | Dependente do comprimento e da estrutura. Sem limite universal. |
| Brometo de etídio, dsDNA em agarose | About 1 to 10 ng | Cerca de quatro vezes mais sensível do que o azul otimizado na comparação de Flores. Requer UV. |
| SYBR Green I, dsDNA | About 60 pg | Requer imagiologia por fluorescência. |
| SYBR Gold, DNA e RNA | About 25 pg | Mais de dez vezes mais sensível do que o brometo de etídio em vários formatos. |
| Coloração com prata, ácidos nucleicos em PAGE | About 0.3 to 0.9 ng; 100 pg RNA reported in an optimized blue to silver sequence | Muito sensível, mas quimicamente mais complexa e pouco adequada para recuperação. |
| Azul de toluidina, RNA e oligos em PAGE | Hundreds of ng working amounts, about 250 ng documented | Luz visível, tal como o azul de metileno, mas sem um limite padronizado comparável às especificações SYBR. |
O controlo do fundo determina se o sinal modesto é utilizável. O corante livre apresenta uma cor intensa, pelo que o contraste resulta da remoção do corante não ligado sem retirar o corante ligado. Uma coloração mais concentrada raramente aumenta a sensibilidade. Na maioria dos casos, apenas aumenta o tempo de descoloração. Faça uma série de diluições no gel, membrana e câmara exatos que pretende utilizar, e use apenas o intervalo em que a densidade integrada se mantém proporcional à quantidade introduzida. O azul de metileno permite uma normalização semiquantitativa do carregamento. Não é um ensaio quantitativo de elevada gama dinâmica, porque a capacidade da membrana, a eficiência de transferência, a saturação e a descoloração variam de pista para pista.
Limites de compatibilidade: o que sobrevive à coloração
A clonagem após coloração azul está demonstrada. Flores e colaboradores excisaram bandas de agarose coradas, recuperaram o DNA e procederam à ligação e transformação, relatando melhor clonagem do que após brometo de etídio com UV. A explicação provável é uma menor fotolesão, não um benefício do próprio corante. Mantenha breve a exposição à luz branca e passe o DNA recuperado por uma purificação normal de extração em gel.
A evidência para PCR e sequenciação é mais limitada. O corante residual liga-se aos ácidos nucleicos, pelo que deve descorar e purificar antes de etapas enzimáticas. É expectável que DNA devidamente purificado de um gel azul funcione, mas a tolerância à transferência direta de resíduos entre diferentes polimerases e químicas de sequenciação não está bem quantificada. Não a presuma.
A hibridação em blot é compatível quando a ordem é rigorosa: transferência, imobilização, coloração, documentação, descoloração, hibridação. Essa sequência corresponde ao desenho de Herrin e Schmidt. Corar antes da transferência ou omitir a descoloração constitui um método diferente e exige validação própria. Após a remoção do corante, a remoção padrão da sonda e a nova sondagem podem decorrer normalmente. Para coloração ao nível celular com a mesma família de corantes e para perceber por que razão a lógica de películas fixadas não se transfere para métodos com células vivas, consulte o atlas de coloração para microscopia.
A excisão de bandas funciona em agarose preparativa e para oligos em PAGE localizados com azul, desde que se evite a variante de fixação permanente. A eletroeluição após descoloração é quimicamente plausível para um ligando reversível, mas os dados controlados sobre rendimento específicos do azul de metileno são escassos. Dessalinize ou precipite após a eluição.
Falhas recorrentes
Bandas fracas no gel significam normalmente que existe massa insuficiente para um corante colorimétrico, sobretudo em alvos curtos de cadeia simples ou de RNA. Carregue mais, utilize corante fresco, prolongue a coloração antes de aumentar a concentração e termine a descoloração mais cedo. Um gel uniformemente azul e sem contraste significa geralmente coloração excessiva ou poucas mudanças de água. O desvanecimento das bandas em PAGE é um comportamento químico esperado, não uma falha da coloração. Fotografe rapidamente. Um fundo irregular na membrana aponta para dobras, bolhas, impressões digitais, agitação irregular ou transferência não uniforme. Não interprete isso como carregamento desigual sem um controlo de hibridação. Um padrão ribossomal esbatido e fraco pode indicar degradação, mas também transferência incompleta, RNA total insuficiente (as pistas típicas transportam vários a dezenas de micrograms) ou descoloração excessiva. O corante revela RNA ribossomal abundante. Não revela um transcrito específico. Essa função cabe à sonda.
Segurança e manuseamento sem exageros
O azul de metileno é mais simples de manusear do que o brometo de etídio, mas não é inócuo. Uma ficha de dados de segurança atual da MilliporeSigma classifica o corante como toxicidade oral aguda Category 4, nocivo por ingestão, devendo a eliminação ser efetuada através de uma via de resíduos aprovada, conforme indicado na SDS do azul de metileno da Sigma-Aldrich. O brometo de etídio apresenta advertências mais fortes de genotoxicidade, incluindo suspeita de efeitos nas células germinativas na respetiva SDS do brometo de etídio da Sigma-Aldrich, e os seus géis e soluções são normalmente segregados como resíduos químicos perigosos, conforme indicado no guia de corantes para ácidos nucleicos da Thermo Fisher. Siga a SDS e as regras institucionais para ambos. Mantenha o corante seco bem fechado e seco, reutilize a solução de coloração apenas quando o protocolo o permitir, armazene membranas coradas secas entre folhas de filtro e fotografe os géis antes de as bandas se difundirem.
Retenha a frase de bancada. Os géis testam a visibilidade com cargas elevadas sob luz branca. As membranas testam a transferência e o carregamento antes de a sonda realizar o trabalho de elevada sensibilidade. Um único corante serve ambos os fins, com sensibilidade modesta, ligação reversível e uma ordem de operações rigorosa.