
記事
メチレンブルーとミトコンドリア:電子伝達とエビデンス
2つの調製液を並べて想像してみてください。どちらも呼吸鎖のComplex Iを遮断する化学物質ロテノンで障害された脳ミトコンドリアを含んでいます。一方には実験者がマイクロモル濃度のメチレンブルーを加えます。酸素消費は部分的に回復します。膜電位も部分的に戻ります。少量のATP合成が再開します。隣のキュベットでは、過酸化物センサーが別の側面を示します。試したすべての用量、すべての基質条件で、過酸化水素産生は数倍に増加しました。
どちらの測定も正しいものです。メチレンブルーは損傷した呼吸鎖の一部を迂回して電子の流れを維持できる電子シャトルであり、その同じシャトルはその過程で過酸化物という代償を発生させます。この2つの事実を同時に保持すると、メチレンブルーのミトコンドリア機能に関する文献は理解可能になります。一方だけを見ると、最初に読んだ論文によって奇跡にも脅威にも見えてしまいます。
シャトルを簡潔に説明する
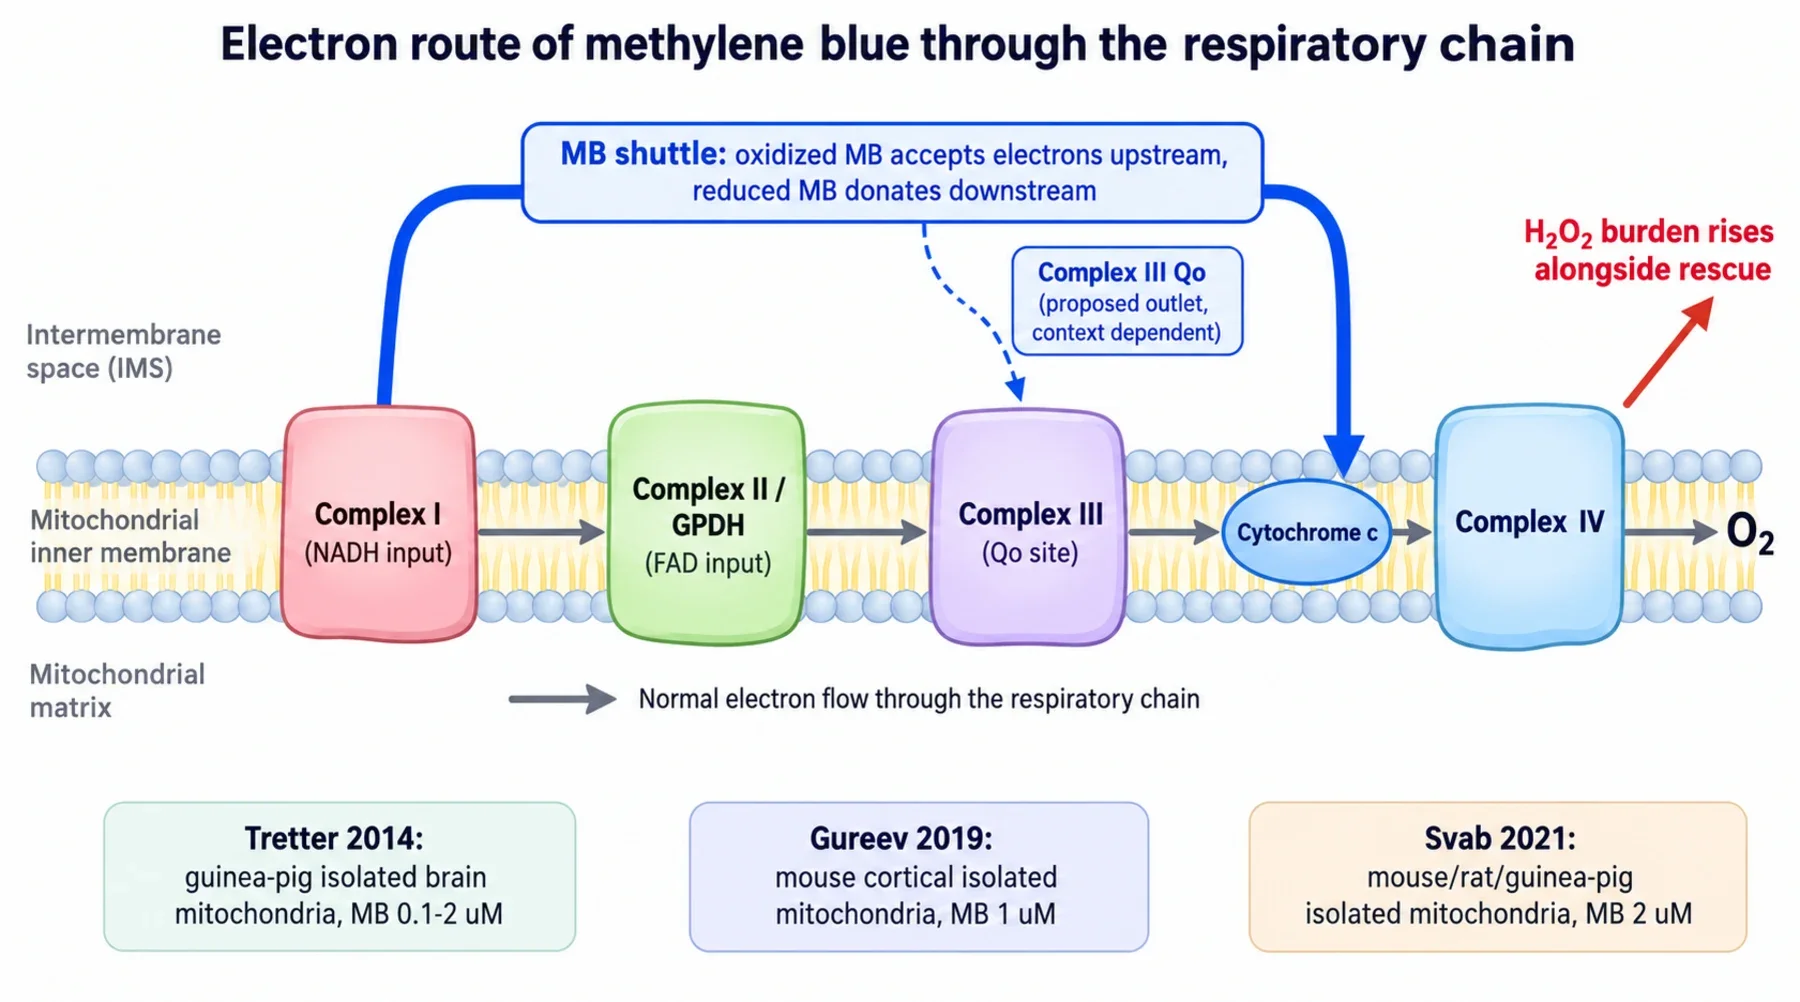
呼吸鎖はリレーラインです。電子はComplex I(NADH由来)またはComplex IIや関連するフラビン酵素(コハク酸などの供与体由来)から入り、Complex III、移動性キャリアであるシトクロムcを経てComplex IVから酸素へ渡されます。各受け渡しは内膜を越えたプロトン移動を起こし、その勾配がATP合成を駆動します。どこかの中継点を遮断すると、上流の流れは停止します。
メチレンブルーは並列の運搬役として入り込みます。酸化型は上流のキャリアから電子を受け取り、無色の還元型であるロイコメチレンブルーになります。その後電子を下流へ渡して青色の形に戻ります。2つの形態については酸化還元対の説明で説明され、より広いシャトル挙動は一般的なメカニズム解説で扱っています。問題はシャトルがどこで再び電子伝達系に入るかです。Complex IIIのキノール結合部位であるQo部位なのか、シトクロムcへ直接渡すのかです。どちらが優勢になるかは条件によって変化し、Complex IIIバイパス分析で詳しく説明されています。
3つのげっ歯類研究が実際に測定したもの
3つの研究はいずれも単離脳ミトコンドリアを使用しています。つまり細胞から取り出され、定義された緩衝液中に置かれた細胞小器官です。完全な細胞、投与された動物、人間の被験者ではありません。濃度は細胞小器官周囲の環境を示すもので、人間への経口投与量ではありません。この前提を維持すると数値は明確になります。
最初の研究は100ナノモルから2マイクロモル濃度の単離モルモット脳ミトコンドリアで、効果とコストを同じ調製系で測定しました。健常ミトコンドリアでは色素は安静時酸素消費を増加させましたが、ADP刺激呼吸は変化せず、結合したATP産生は改善しませんでした。Complex I遮断下では、2マイクロモルでATP合成は通常値約1109に対し、毎分・ミリグラムあたり46から93ナノモルへ回復しました。Complex III遮断では同じ用量で約46から63へ回復しました。膜電位とカルシウム取り込みも部分的に回復しました。Complex IVのシアン化物遮断は迂回できず、有効な電子出口が機能するComplex IVの上流にあることを示しました。
2番目の研究は約1マイクロモル濃度のマウス皮質ミトコンドリアで、Complex Iバイパスを確認し、Complex IIIで境界を示しました。ロテノンにより呼吸は毎分・ミリグラムあたり約121から2未満へ低下し、色素により約21まで上昇しました。しかしComplex III遮断後は呼吸も膜電位も回復せず、遮断により色素依存性の過酸化物シグナルも抑制されました。
3番目の研究は主に2マイクロモル濃度のマウス、ラット、モルモット脳ミトコンドリアで、意見の違いを直接検証し、Complex III遮断でも橋渡しが可能であることを示しました。Qo部位阻害剤ミキソチアゾールにより基礎呼吸が88%低下した状態で、色素は酸素利用を遮断前の約62%まで回復させました。しかし回復した呼吸は正常ではありませんでした。ADP添加で酸素消費が増えるのではなく低下し、ATP合成阻害で呼吸が刺激されました。膜電位の再分極も部分的でした。高い酸素利用と逆転した結合は正常なエネルギー産生ではありません。
研究室間の不一致の理由と、それを決める要素
種の違いによる説明は最初に崩れます。第3グループは3種類のげっ歯類で同じ質的バイパスを確認しました。違いは濃度(1対2マイクロモル)、阻害剤量、緩衝液、単離方法、そして比較されるエネルギー状態です。正確な図は条件依存の2つの出口を示します。1つはQo部位、もう1つはシトクロムcです。シャトルは局所化学条件が許す場所へ電子を届けます。
過酸化物という代償
コスト側は回復側と同じほど一貫しています。モルモット研究では、色素は安静時、ATP合成時、化学的障害時、3種類すべての基質条件で過酸化物放出を増加させました。ATP合成中、出力は1マイクロモルで毎分・ミリグラムあたり約148から1500ピコモル超へ上昇し、100ナノモルでもシグナルは4倍以上になりました。また色素は過酸化物処理速度を約2.6倍低下させました。
マウス研究ではさらに複雑な結果が示されました。過酸化物は用量とともに急増しましたが、Complex III遮断により色素依存成分は抑制されました。つまり過酸化物は単純に還元型色素と酸素の反応だけではなく、呼吸鎖も関与しています。抗酸化・促酸化レビューはこの二面性を広い文脈で扱い、酸素対ATP分析は酸素値だけではエネルギー主張を決められない理由を説明しています。
回復は修復ではない
「メチレンブルーはミトコンドリアを修復するのか」という表現は修正が必要です。修復とは持続的な補正を意味します。複合体の再構築、薬物除去後も続く結合回復、完全な細胞での回復、そして生体での機能改善です。3つの論文はいずれもそれを示していません。
示されているのは、人工的な化学遮断下の新鮮な単離細胞小器官での急性電子経路変更です。ロテノンやアンチマイシンは実験ツールであり、老化や人間のミトコンドリア疾患モデルではありません。健常者のエネルギー増加を示すものでもありません。これは別のエビデンス問題です。
3つの境界線が結論を保守的にします。第一に、浴液濃度は投与量ではありません。単離細胞小器官周囲の0.1〜2マイクロモルは、人間の脳ミトコンドリアで同じ自由濃度を生む経口量を示しません。第二に、酸素はエネルギーではありません。色素は酸素利用を増加させても、それが必ずしもATP産生を意味するわけではありません。第三に、利益と負担は同じ実験内に存在します。過酸化物増加を無視した電位やATP回復の記述は実験結果を不正確に表します。
関連する条件としてNAD酸化還元バランス、用量反応形状、アッセイ選択ガイドがあります。
実用上の補足として、このシャトル特性は正確な分子に依存します。Azure Bのような脱メチル化類縁体も酸化還元活性を持ちますが、挙動は異なります。したがって分解した溶液は完全な色素とは別の実験になります。
この限定的な主張は維持されます。メチレンブルーは、損傷した単離ミトコンドリアで条件依存的な電子運搬役として働き、過酸化物という代償を伴いながら電子流を部分的に維持できます。それを超えるエネルギー、長寿命、修復という主張には、この研究が設計されていなかった種類の証拠が必要です。